2.4 神经元形态学建模
2.4 神经元形态学建模
前两节的模型都把神经元压成一个点。可皮层锥体细胞的树突树展开上千微米、带有数百个分支,视觉信息在基树突上整合,注意信号从顶树突远程抵达——形状不可能与计算无关。本节把点模型升级为多室模型:把整棵树突树切成小段,每段一个电学单元,段间用轴向电阻连接。这是 2.1 节电缆方程的落地形态,也是"形状即计算"命题的技术载体。
区室化:把电缆方程钉到形态上
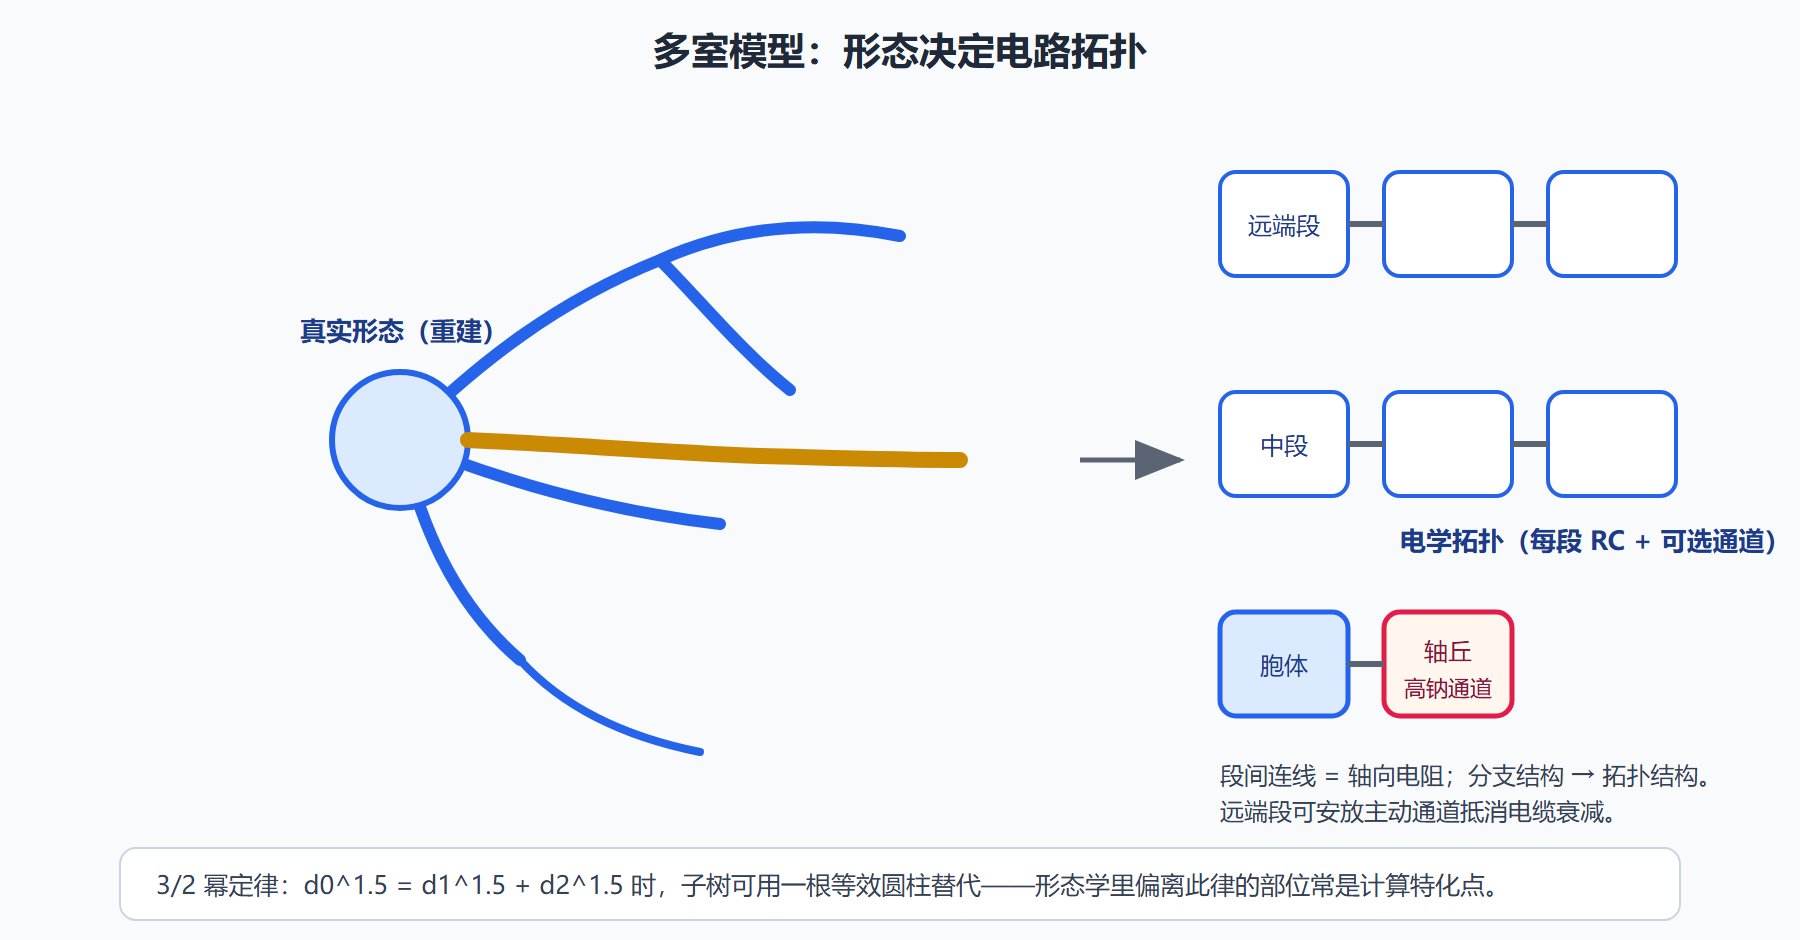
做法直白:用重建数据(形态学数据库里可下载的真实神经元三维重建)把树突切成若干圆柱段。每段有自己的膜面积(决定电容与漏电导)与直径、长度(决定轴向电阻),各段上可安放不同密度、不同种类的离子通道。相邻段之间用 2.1 节的耦合项连接,整棵树就是一组耦合的 ODE——段数几百时,就是几百个联立的 HH 式方程。
两个经典结果值得先记住。一是 λ 随直径变:λ = √(d·Rm/(4·Ri)),细分支的信号衰减远快于主干,所以同等距离下,细远端突触的"话语权"被双重削弱。二是 3/2 幂定律(Rall 定律):若母分支直径 d0 满足 d0^(3/2) = d1^(3/2) + d2^(3/2),则两个子分支的电学性质与一根等效圆柱完全一致——这意味着真实树突树常可被大幅等效压缩,也是"等效圆柱"简化法的依据。形态学重建里偏离 3/2 定律的分支点,往往正是电学上被特殊使用的地方。
图:从树突形态到多室模型——每段膜一个电路,段间电阻相连
主动树突:形状如何变成算子
多室框架的价值在于能往不同区室里装不同的"发动机"。三个代表性发现,都只有靠多室模型与实验对账才立得住:
钙峰与分支与门。 顶树突远端富集钙通道,同分支上多个输入协同激活可触发局部钙峰。它有两个计算后果:一是让远端信号绕过电缆衰减直通胞体;二是使分支成为"与门"——只有本分支协同充分才触发。单个神经元因此具备二层逻辑结构:分支内做协同检测,胞体做全局整合。
反向传播的脉冲。 胞体轴丘发出的脉冲会反向侵入树突,回传的脉冲与突触输入的相对时序决定树突上哪些突触被强化——这正是第 3 章 STDP 规则的生理载体之一。没有多室模型,"脉冲回传"这个可塑性机制根本无法被计算研究。
通道分布即身份。 同一形态下,把钾通道密度提高数倍,细胞从"易爆"变成"稳定积分器"。不同脑区神经元表达不同的通道组合(如快放电中间神经元富集高阈值钾通道),形态加通道分布共同定义了细胞的计算性格——这把 2.2 节的"参数即性格"推广到了空间维度。
成本账:何时值得上多室
多室模型的成本是硬的:几百个耦合 ODE,计算量比 LIF 高四个数量级以上,且通道密度、分布这些参数在具体细胞上大多测不准——参数空间大而数据稀疏,容易"调"出看似合理实则虚构的行为。工程上的理性路径是三级台阶:先跑点模型确认现象不需要空间(能用 LIF 解释的网络现象,不要动用多室);现象确实依赖位置(树突计算、树突棘可塑性、脉冲回传)再上双室或多室;要精细对账实验时,才把真实重建形态与实测通道密度都放进去。研究上还有一个务实技巧:先在等效圆柱(按 3/2 定律压缩)上把机理跑通,再换回真实形态验证结论是否依赖具体形状——依赖了,说明形状本身参与计算,这本身就是发现。
概念代码:双室模型的"远程投票"
import numpy as np # 最小双室:树突室(s)经耦合电导 gc 投票到胞体室(m),各带被动 RC tau, gc, dt, T = 20.0, 0.05, 0.05, 200.0 Vs, Vm = -65.0, -65.0 trace_m = [] for k in range(int(T/dt)): t = k*dt Is = 6.0*np.exp(-0.5*((t-60)/4)**2) # 突触电流打进树突室 dVs = (- (Vs + 65.0) + Is) / tau - gc*(Vs - Vm)/tau dVm = (- (Vm + 65.0)) / tau + gc*(Vs - Vm)/tau Vs += dt*dVs; Vm += dt*dVm trace_m.append(Vm) peak = max(trace_m) # 把 gc 从 0.05 调到 0.5:胞体峰值明显抬升——耦合强度即远程话语权 print("胞体峰值 mV:", round(peak, 2))
这个双室玩具抓住了多室模型的灵魂:远端事件对胞体的影响完全由耦合强度 gc(由两室间的轴向电阻决定,即形态)调制。真实多室模型只是把两室换成几百室、把被动膜换成带通道的膜。
⚠️ 常见坑:多室模型的节文件里最常见的自欺是"参数能调出目标行为就等于解释了"。通道密度组合空间巨大,必须留出验证集行为(模型没调过的现象)做检验——这是 HH 当年立下的规矩。
本节要点回顾
- 要点一:多室模型把电缆方程钉到真实形态上,每段膜一个电学单元。
- 要点二:λ 随直径变化,3/2 幂定律给出等效压缩的判据。
- 要点三:主动树突让分支做局部与门计算,脉冲回传连接到 STDP。
- 要点四:形态加通道分布共同定义细胞计算性格。
- 要点五:点模型、双室、多室三级台阶,按问题需要逐级付出成本。
至此单细胞的故事讲完。下一章把镜头切到细胞之间:脉冲抵达终末后,信号如何跨过 20 纳米的间隙,又如何留下学习的痕迹。
案例:一根顶树突的两层账
把多室模型的用法走成一个完整案例。皮层锥体细胞的顶树突远端(距胞体数百微米)接受反馈性输入,近端基树突接受前馈感觉输入。若用点模型,两类输入只能相加;用双室模型立刻看出格局——远端输入被电缆衰减压到很小,除非远端膜带主动通道。实验事实正是如此:顶树突远端富集钙通道,强输入触发局部钙峰,把远端信号整流成"全或无"的通报直达胞体。于是同一个细胞里并存两条通路:近端输入走分级整合(模拟量),远端输入走再生通报(数字量)。这个"两层账"格局是多室建模最漂亮的对账案例——2.1 的衰减算术、2.2 的正反馈机制、本节的空间结构在一次实验里同时兑现。
问题:树突棘要不要单独建模?
看研究问题。每个锥体细胞有一万上下树突棘,全显式建模成本高;但棘头与棘颈的电学隔离带来两个独特性质——局部钙区室化(棘内钙信号可达胞体的百倍浓度当量,是学习规则的局部开关)与棘颈电阻对权重表达的调制(颈电阻变化等效改变突触权重)。研究突触学习与存储就必须显式建模棘;只关心群体发放率则可以把棘并入所在区室的电导。判据依旧:现象是否需要那个空间尺度上的独立变量。