6.2 氧化磷酸化与光合磷酸化:能量转换的终端
6.2 氧化磷酸化与光合磷酸化:能量转换的终端
本节摘要:氧化磷酸化在线粒体内膜上将NADH和FADH2携带的电子通过呼吸链传递给氧气,释放的能量用于建立跨膜质子梯度,驱动ATP合酶合成ATP。光合作用在叶绿体的类囊体膜上利用光能驱动电子传递,同样通过质子梯度合成ATP,并在基质中通过Calvin循环固定CO2合成有机物。
你吸进去的氧气,最终去了哪里
呼吸的终点不是肺,而是线粒体内膜。你吸入的每一个氧气分子,最终都会在线粒体内膜上接受电子、与质子结合变成水。这个过程看起来简单,却是细胞能量代谢的"总装线":电子沿着呼吸链逐级传递,能量被用来建立质子梯度,质子回流驱动ATP合酶转动。理解了这条流水线,就理解了氧化磷酸化的全部要点。
学习目标
阅读完本章,你应当能够:
- 按顺序列出呼吸链的四个蛋白复合物及其电子传递方向
- 解释化学渗透假说的核心原理
- 描述ATP合酶的旋转催化机制
- 比较氧化磷酸化和光合磷酸化在电子供体和驱动力上的差异
呼吸链:四步接力
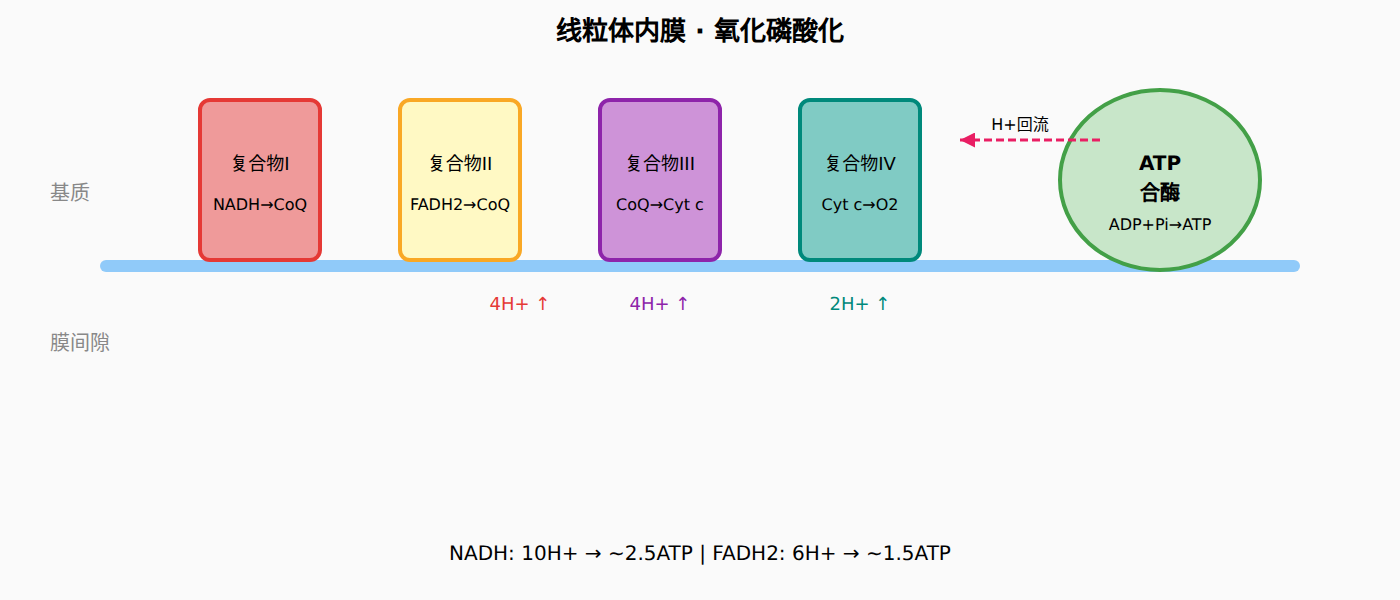
NADH和FADH2携带的电子通过线粒体内膜上的四个蛋白复合物传递给最终电子受体——氧气。
复合物I(NADH脱氢酶)。接受NADH的电子,传递给辅酶Q(泛醌),同时泵出4个质子。NADH在此被氧化为NAD+。
复合物II(琥珀酸脱氢酶)。接受来自TCA循环中琥珀酸→延胡索酸步骤的电子(FADH2),传递给辅酶Q。注意:复合物II不泵质子,所以FADH2产生的能量效率低于NADH。
复合物III(细胞色素bc1复合物)。接受来自辅酶Q的电子,传递给细胞色素c,同时泵出4个质子。
复合物IV(细胞色素c氧化酶)。接受细胞色素c的电子,传递给氧气(最终电子受体),将氧气还原为水。此步骤泵出2个质子。
整个过程中,1个NADH驱动泵出10个质子(复合物I 4 + 复合物III 4 + 复合物IV 2),1个FADH2驱动泵出6个质子(复合物II 0 + 复合物III 4 + 复合物IV 2)。
化学渗透与ATP合酶
Mitchell在1961年提出的化学渗透假说认为:电子传递释放的能量不是直接用于合成ATP,而是先转化为跨膜质子梯度(质子动力势),然后质子梯度驱动ATP合成。
质子动力势(pmf)由两部分组成:ΔpH(浓度差)和Δψ(膜电位)。质子通过ATP合酶从膜间隙回流到基质时,释放的能量驱动ADP和Pi合成ATP。
ATP合酶是一个精密的分子机器,由两个主要部分组成:
- F0部分:嵌在内膜中的质子通道。质子流过F0时驱动转子旋转。
- F1部分:凸入基质的催化部分。转子的旋转带动三个β亚基依次改变构象(松弛态→紧密结合态→开放态),每转一圈合成3个ATP。
合成1个ATP约需要3-4个质子通过ATP合酶。加上质子跨膜运输本身的消耗(磷酸/ADP的共运输),NADH产生的ATP约为2.5个,FADH2约为1.5个。
光合作用:光能到化学能
光合作用分为两个阶段:
光反应(在类囊体膜上)。光子被光系统II和光系统I的叶绿素吸收,激发的电子通过电子传递链移动,最终用于还原NADP+为NADPH。电子传递过程中释放的能量用于建立跨类囊体膜的质子梯度,驱动ATP合酶合成ATP。水的光解提供替代电子,同时释放氧气。
暗反应/Calvin循环(在叶绿体基质中)。不直接需要光。利用光反应产生的ATP和NADPH,通过Calvin循环将CO2固定为有机物(3-磷酸甘油醛)。Calvin循环的关键酶是RuBisCO——地球上最丰富的蛋白质,催化CO2与核酮糖-1,5-二磷酸的缩合反应。
氧化磷酸化和光合磷酸化的化学渗透原理是一样的——都是电子传递建立质子梯度驱动ATP合成——但方向相反:氧化磷酸化分解有机物产生ATP,光合磷酸化利用光能合成有机物。
图:氧化磷酸化工作原理
呼吸链的"阶梯"逻辑
呼吸链的四个复合物不是随意排列的,而是按照氧化还原电位从低到高排列:NADH的电位最负(最容易失去电子),氧气最正(最容易接受电子)。电子在链上流动,就像水从高处流向低处——每经过一个复合物,电位降低一档,释放的能量就被用来泵出质子。这就是为什么复合物II不泵质子:FADH2把电子交给辅酶Q时的电位差太小,没有足够能量泵质子。记住这个"电位阶梯"的思路,四个复合物谁泵质子、谁不泵,就都不用背了。
可以用代码比较NADH和FADH2的产ATP效率:
# 质子泵出与ATP产出对照 nadh_protons = 4 + 4 + 2 # 复合物I+III+IV fadh2_protons = 0 + 4 + 2 # 复合物II不泵,III+IV atp_per_4_protons = 1 # 约4个质子合成1个ATP print(f"NADH约产 {nadh_protons/4:.1f} ATP") # 约2.5 print(f"FADH2约产 {fadh2_protons/4:.1f} ATP") # 约1.5
这个差异解释了为什么FADH2的产率低于NADH——电子进入呼吸链的位置越靠后,可利用的能量越少。
光合磷酸化的两种模式
光合作用的电子传递有两种模式。线性电子流:电子从水出发,经过光系统II、细胞色素b6f、光系统I,最终交给NADP+生成NADPH——同时建立质子梯度合成ATP。环式电子流:电子只经过光系统I,绕一圈回到细胞色素b6f,只泵质子合成ATP,不产生NADPH也不释放氧气。细胞在需要更多ATP时(比如Calvin循环固定CO2需要大量ATP)会切换到环式电子流。两种模式的配合,让叶绿体能够按需调节ATP与NADPH的比例。
要点回顾
- 呼吸链四步:复合物I(NADH→CoQ)→II(FADH2→CoQ)→III(CoQ→Cyt c)→IV(Cyt c→O2)
- 化学渗透:电子传递能量→质子梯度→ATP合酶旋转催化→ATP
- ATP合酶每转一圈合成3个ATP,1个NADH约产生2.5个ATP
- 光合作用:光反应(类囊体膜上产生ATP+NADPH+O2)+暗反应(基质中Calvin循环固定CO2)