1.3 个体边界与暗物质真菌:真菌学的认知赤字
1.3 个体边界与暗物质真菌:真菌学的认知赤字
本节摘要:真菌学有两大未解的本体论难题:其一,"个体"概念失效——蜜环菌单个菌落可覆盖 9 平方公里、年龄逾千年,采下一朵蘑菇只是触到了地下巨物的一根"指尖";其二,"物种"清单严重残缺——全球真菌估计 220 万至 380 万种,已描述者不足 15 万,大量"暗物质真菌"只以环境序列片段存在。这两道裂缝不只是学术趣谈,它们直接拖累碳循环模型的精度,也让现行保护法律几乎对真菌失效。
你能学到什么
阅读完本节,你应当能够:
- 用蜜环菌的案例解释真菌"个体"概念为何流动
- 说出"暗物质真菌"的含义及其对地球系统模型的影响
- 分析 CITES 等保护框架对真菌失效的制度根源
- 列举填补认知赤字的几条技术路线及其局限
一、问题与直觉:一枚蘑菇是一个生命吗
先看一个数字:美国俄勒冈州的一株奥氏蜜环菌单个菌落覆盖面积约 9 平方公里,估计年龄超过两千四百岁。按面积算,它是地球上已知最大的生命体之一;按我们的常识算,它根本不像"一个个体"。
问题不止于尺寸。一个蜜环菌菌落的菌丝网络内基因型未必一致——体细胞突变不断积累,细胞核在菌丝中迁移,不同交配型的菌丝还会发生融合。你在森林里采下一朵蘑菇,收获的究竟是一个独立生命,还是某个庞大地下有机体偶然探出的"手指"?橡树有清晰的边界与生命周期,狮子有明确的躯体与世代更替,而真菌的"个体"是一个流动的概念。
这个看似哲学的问题,后果非常实际。保护生物学需要回答:我们该保护"物种"、"基因型",还是"功能菌落"?现行濒危物种贸易公约几乎未涵盖任何真菌,根源正是法律定义无法适配真菌的生物学现实——一部为可计数个体设计的法律,遇到了一个以网络为单位存在的类群。
二、个体边界为什么模糊:三个生物学机制
体细胞突变与核多样性。 一个持续生长数百年的菌丝网络,其不同区段积累了彼此不同的突变。菌落前端与中心可能已在遗传上分道扬镳,但仍在同一个菌丝网络内共享资源。这相当于一个"体内"容纳了多个渐行渐远的谱系。
菌丝融合与遗传交换。 许多担子菌的菌丝可以在接触点发生融合,若交配型兼容,两个原本独立的个体便交换细胞核,形成异核体。个体边界由此被反复改写——今天相遇的两团菌丝,明天可能共用一套细胞质。
繁殖与营养的解耦。 动物的繁殖周期就是个体生命周期,而真菌的子实体只是菌丝体在特定季节推出的繁殖结构。营养体常年潜伏于基质之内,地上部分的出现与否取决于温湿度窗口,这让"以子实体计数个体"的做法彻底失效。
个体概念的对照
| 维度 | 一棵橡树 | 一个蜜环菌菌落 |
|---|---|---|
| 空间边界 | 树干树冠清晰可辨 | 菌丝在土壤中无限延展,边界靠基因型推断 |
| 时间边界 | 种子到死亡 | 同一菌落可延续数千百年 |
| 遗传一致性 | 细胞均来自同一合子 | 体细胞突变与核迁移造成内部异质 |
| 繁殖结构 | 个体本身 | 菌丝体推出的一次性子实体 |
| 计数方法 | 直接清点 | 只能靠分子取样间接估计 |
三、暗物质真菌:九成以上的类群从未被命名
如果说个体边界的模糊是精确定义的困难,那么暗物质真菌暴露的就是纯粹的规模性无知。
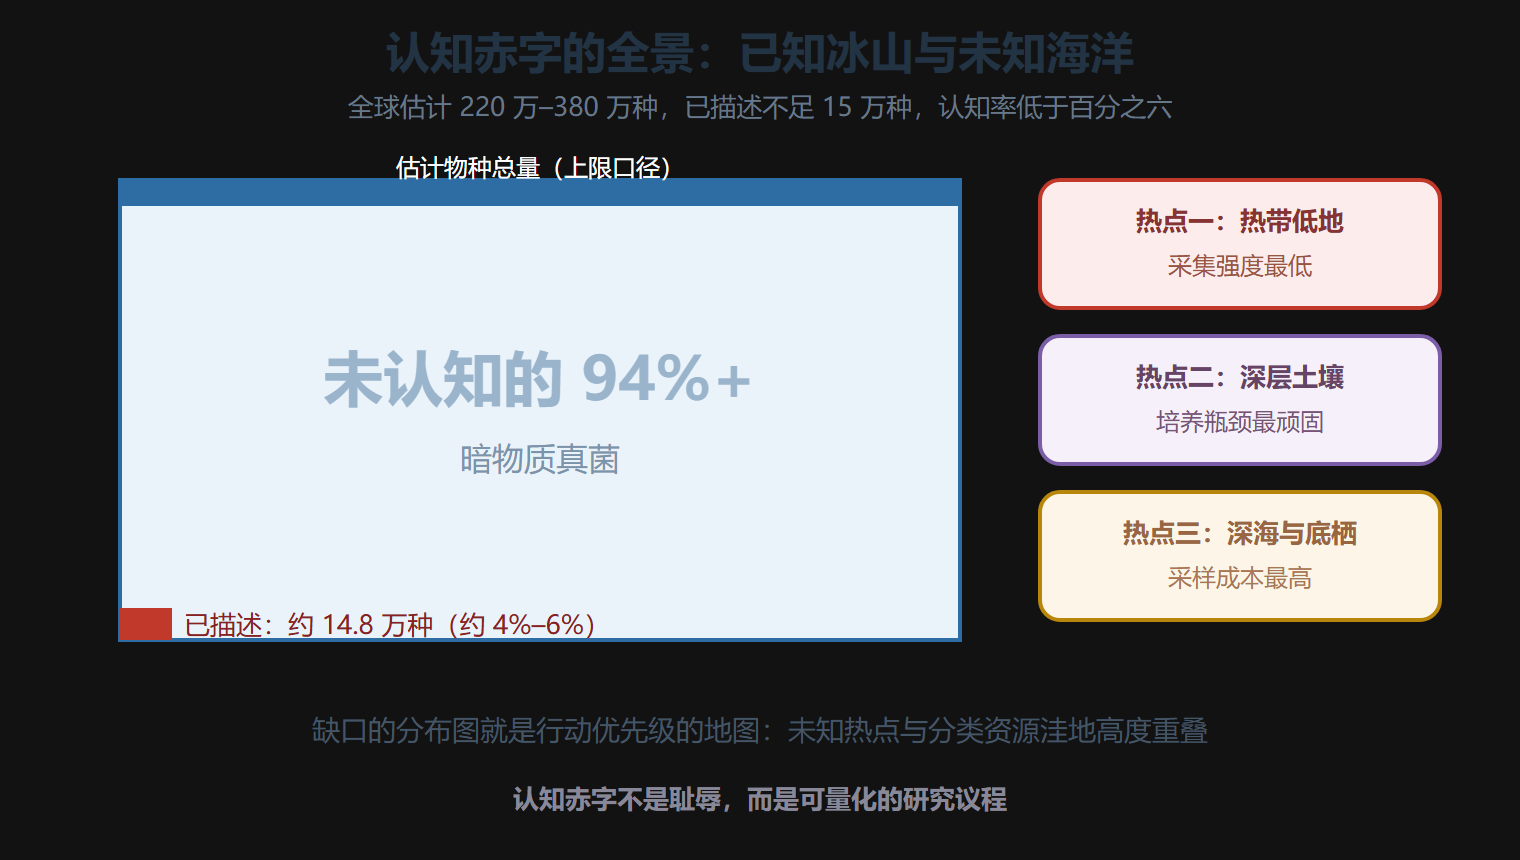
据 2023 年《自然·微生物学》的综述,全球已正式描述的真菌约 15 万种,仅占预估总数(220 万至 380 万种)的 3% 到 6%。在热带雨林土壤、深海沉积物、冰川融水甚至平流层气溶胶中,海量未知真菌只以环境基因组序列片段的形式存在——无法培养、无法做表型界定、无法被安放进演化树。亚马逊雨林一克表层腐殖土中可检出超过两百种隐存担子菌系,其中绝大多数从未被培养或命名。
这块空白直接拖累了全球尺度的科学预测。当前主流地球系统模型中,真菌驱动的有机质分解速率仍依赖少数模式种(如粗糙脉孢菌)推演的简化参数,误差可达数倍。真菌是陆地碳循环的核心引擎之一,而我们对引擎里九成以上的"零件"连名字都不知道——这就是"数据洪流、知识干旱"的窘境:序列数量指数增长,功能注释严重滞后。
培养悖论让窘境雪上加霜:已描述真菌中可稳定培养的不足一成,而环境样本揭示的多样性里,超过九成八的序列变异单元没有参考基因组。实验室的培养条件——均质琼脂、恒定温湿、单一碳源——本质上是对自然生态位的暴力简化:把新生隐球球菌从鸟粪微环境移入常规培养基,其荚膜多糖合成通路的修饰模式会发生系统性偏移,这已经不是"失真",而是"失格"。换句话说,暗物质真菌不进培养皿,不只是技术问题,而是我们用错了提问方式:它们需要的可能不是更丰富的培养基,而是共生伴侣、梯度环境与时间。
暗物质真菌的三种存在状态
⚠️ 常见误判:把"检测到的序列数"当成"物种数的上限"。测序深度、引物偏好和数据库偏差都会系统性扭曲检出结果——富含 AT 的类群检出率偏低是已知的技术盲区。
💡 关键直觉:认知赤字本身是信息。未知真菌的分布热点(热带低地、深层土壤、深海)恰恰指向采集与分类资源最稀缺的地区——缺口的地图就是行动优先级的地图。
认知赤字的全景图
四、补缺口的四条路线及其局限
路线一:环境 DNA 宏条形码。 直接从土壤、水体提取 DNA 做高通量测序,绕过培养瓶颈。它贡献了近年来物种估计数从百万级跃升至 220 万以上的主要证据,但只能告诉你"谁在那里",答不了"它在做什么"。
路线二:单细胞基因组学。 从环境样品中挑出单个真菌细胞或孢子做全基因组扩增,为暗物质类群建立参考基因组。瓶颈在于分离技术与覆盖度,目前仍属高成本手段,但它给出的每一条参考基因组,都是后续宏条形码数据得以"对号入座"的锚点——没有参考的序列永远只是序列,有了参考才谈得上功能推断。
路线三:培养组学攻坚。 用模拟原生境的培养基(特定碳源、低养分、共培养伴侣菌)唤醒"不可培养"类群。慢,但每成功一株就补上一段表型数据——这是把序列还原为生物体的唯一途径。
路线四:分布式分类力量。 公民科学平台的子实体图像识别、热带国家的本地分类学能力建设。分类学权威机构高度集中于北美、西欧与东亚少数国家,而多样性热点在热带与南半球——基础设施的地理错配本身就是认知赤字的成因之一。
这四条路线没有哪条能单独解决问题,它们的组合才构成补缺口的完整策略:测序给出广度,单细胞与培养给出深度,分布式力量给出可持续性。补缺口的技术前沿也已经在换代:单细胞真菌基因组学正尝试破译菌丝尖端细胞的实时转录组,看它在复杂基质里如何导航与决策;空间代谢组学在微米尺度原位绘制菌丝与根际界面的化学对话图谱;人工智能驱动的形态生成模型则从海量子实体图像中学习形态演化规律,甚至反向预测未知类群的生态位偏好。这些工具的共同方向,是把暗物质真菌从"序列幽灵"还原为"可对话的功能实体"——补缺口不只是数清有多少种,更是让每一种都重新变得可提问。
五、赤字背后:一个悬而未决的"个体"哲学
回到开头的问题。蜜环菌式的个体边界模糊与暗物质式的物种空白,其实是同一个事实的两面:真菌的生物学现实走在了人类的概念工具前面。我们为"可计数的个体""可培养的物种"建立的科学与法律框架,面对一个以网络存在、以序列现身的类群,处处漏风。
这不是绝望的理由。恰恰相反,它标定了未来十年真菌学最有产出的问题域:什么样的"个体"定义能同时安放菌丝网络的功能完整性与遗传异质性?物种名录之外,我们还需要哪些维度的清单——功能群清单、代谢潜能清单、共生关系清单?这些问题的答案,将直接决定第 5 章讨论的保护实践能否落地。
核心回顾
- 个体失效:体细胞突变、菌丝融合、繁殖与营养解耦三个机制让"个体"成为流动概念,蜜环菌 9 平方公里的菌落是最极端的注脚
- 法律失灵:为可计数个体设计的保护框架几乎未涵盖真菌,制度根源在生物学现实与法律定义的错配
- 规模性无知:已描述种不足预估的百分之六,暗物质真菌只以环境序列形式存在
- 模型代价:地球系统模型的分解速率参数依赖少数模式种,误差可达数倍
- 补缺策略:宏条形码给广度、单细胞基因组给深度、培养组学还原表型、分布式力量给可持续性
- 赤字即路标:未知类群的分布热点指向资源最稀缺的地区,缺口地图就是优先级地图
"个体"概念在真菌中的失效清单 ───────────────────────────────────────────── 经典标准 真菌现实 反例样本 ───────────────────────────────────────────── 遗传同一 同一菌落可含多核 异核现象 基因型 基因型不同的核 (heterokaryosis) 物理连续 菌丝融合形成嵌合 蜜环菌"同一 体、边界可渗透 个体"跨千亩 独立代谢 营养交换横跨菌丝 外生菌根 网络、共享碳库 共同体 世代分离 同一基质上多代 孢子库与 孢子库同时活动 营养体并存 ───────────────────────────────────────────── 结论:需要以"遗传个体 + 生理单元 + 进化谱系"三层概念替代单一"个体"
环境 DNA 揭示暗物质真菌的标准流程 ───────────────────────────────────────────── 步骤 操作 质控要点 ───────────────────────────────────────────── 采样 土壤/水样冻存 现场阴性对照 提取 珠磨法破壁 加孢子模拟 回收率对照 扩增 ITS1F/ITS4 引物 PCR 空白对照 测序 高通量双端 稀释曲线饱和 聚类 97% OTU / ASV 单例去噪 注释 UNITE 数据库比对 置信阈值 ≥ 80% ───────────────────────────────────────────── 典型产出:已知物种仅占 OTU 总数的 约 3%–7%,其余即"暗物质"候选
下一章进入全书的主战场:当 DNA 序列开始逐一清算两百年的表型分类,真菌学的范式革命是如何爆发、又是如何被共识与争议共同推着前进的。