3.4 双引擎对决:子囊菌与担子菌的功能分工
3.4 双引擎对决:子囊菌与担子菌的功能分工
本节摘要:子囊菌与担子菌合计占已描述真菌物种的九成半,但二者的关系不是竞争而是分工——子囊菌是"分子精度引擎",以调控语法复杂度取胜;担子菌是"宏观建构引擎",以结构整合能力见长。本节用朽木分解的时序接力、碳氮循环的功能分账、木质素降解的酶系交接三个具体场景,把这场持续数亿年的"对决"拆解成一张分工表,最后落到"生态过程处方"这一未来应用范式:不再问"某地有什么真菌",而问"某过程由哪些真菌协同完成"。
学习目标
阅读完本节,你应当能够:
- 用"分子精度引擎 vs 宏观建构引擎"概括两大门类的功能分工
- 复述木材变色环上三类真菌的时序接力机制
- 说明担子菌为何垄断木质素深度降解而子囊菌专精半纤维素
- 描述"生态过程处方"范式的具体内容与应用价值
一、问题与直觉:为什么必须对比着看
前两节分别解剖了两位主角,但单独看任何一方都会产生错觉——看子囊菌觉得担子菌"粗糙",看担子菌觉得子囊菌"小家子气"。把两大门类放进同一个生态过程,才能看清它们各自占据了哪段不可替代的赛道。对决的裁判是朽木。温带森林中一根倒木的分解全程,就是两大引擎的交接仪式:谁先进入、谁做主力、谁负责收尾,秩序井然得像一份排班表——而排班的依据不是谁更强壮,而是谁的酶系参数恰好匹配当前微环境的化学条件。理解这份排班表,等于理解了陆地生态系统的碳氮流水线。
二、场景一:朽木变色环上的时序接力
朽木表面常呈现规律性紫褐色环带,传统解释归因于不同真菌的侵染时序。三位一体的分析揭示出更深逻辑——这些环带是木质素降解酶系活性的空间指纹,一场按酸碱度与氧气梯度排布的接力赛。
靠近树皮的外圈,微环境偏酸、氧气充足,子囊类的长喙壳属真菌凭借酸稳定性漆酶率先启动脱木质素——它们的酸性胞外酶在低酸碱度下保持高效催化,且通过分泌有机酸进一步酸化微环境,形成自我强化的正反馈,巩固地盘。向内推进至中圈,酸碱度回升,锰离子浓度达到峰值,担子类的彩绒革盖菌的锰过氧化物酶被激活,执行木质素侧链的深度裂解——这类酶极度依赖二价阳离子作辅因子,而锰离子在偏酸土壤中易被固定,只有酸碱度回升后生物可利用性才解锁。最内圈缺氧、富集酚类抑制物,只有具备厌氧代谢能力的毛霉类能维持基础代谢,完成最后的残渣处理。
三个类群的结构差异(子囊菌的酸性酶区室化、担子菌的锰转运蛋白簇、接合菌的厌氧代谢基因岛)决定了各自的功能阈值,而阈值又严格对应木材微环境的物理化学梯度。生态位在这里不是"栖息地描述",而是可量化的结构—功能相容性函数。
朽木分解接力赛示意
三、场景二:碳循环的功能分账
把镜头从一根朽木拉到全球尺度,分工逻辑同样清晰。全球每年约 170 亿吨木质残体降解中,担子菌主导约四分之三以上——白腐菌的木质素过氧化物酶系是地球上唯一能大规模矿化木质素芳环结构的酶系统,褐色腐菌则改写纤维素化学完成"剥壳式"降解。
子囊菌的赛道在另一头:落叶层刚凋落的 48 小时内,子囊菌菌丝便已穿透角质层——它们是"分解先锋",专精于速效碳源与半纤维素这类低阻力底物;海洋子囊菌的耐盐漆酶则把木质素降解延伸至河口与近海,补上咸水环节的空白。一个直观的宏基因组证据:某红树林沉积物中子囊菌序列丰度仅占 12%,但其糖苷水解酶基因转录本却占总量的 63%——数量少而作用大,这正是"分子精度引擎"的账面特征。担子菌的账面则是另一种画风:靠持久菌丝体蹲守基质,单位时间的酶分泌速率未必惊人,但胜在连续、深度、彻底——两种记账方式对应两条生态策略,也对应碳在生态系统中"快循环"与"慢循环"的分流。
| 对比维度 | 子囊菌门 | 担子菌门 |
|---|---|---|
| 物种占比 | 约四分之三 | 约两成 |
| 核心结构 | 子囊:8 孢线性编程 | 担子加锁状联合 |
| 酶系特长 | 漆酶、酸性水解酶、半纤维素酶 | 木质素过氧化物酶、锰过氧化物酶 |
| 生态角色 | 分解先锋、地衣共生、叶际病原 | 木材主力降解、外生菌根网络 |
| 调控语法 | 启动子元件密度更高 | 形态建成基因模块更复杂 |
| 极端边界 | 洞穴化能自养、耐盐漆酶 | 干旱墙体、深海沉积物 |
| 应用名片 | 抗生素、发酵、酶制剂 | 食用菌、菌根制剂、菌丝材料 |
四、场景三:为什么担子菌垄断了木质素
木质素是地球最顽固的天然聚合物,其芳香环网络需要高电位氧化才能断裂。担子菌白腐类的木质素过氧化物酶拥有自然界最高的氧化还原电位之一,能直接夺取木质素酚羟基的电子;配合锰过氧化物酶与漆酶的接力,三者构成完整的"木质素解构流水线"。
子囊菌为什么没走这条路?答案藏在生态位选择上:木质素矿化需要长时间蹲守同一基质,而蹲守需要的大型持久菌丝体正是担子菌的结构强项(锁状联合保障的双核网络可以稳定扩张数年);子囊菌的快速繁殖策略(分生孢子"快闪部队"加子囊精准弹射)更适合追逐新鲜易分解底物。两套策略没有高下之分——先锋与主力的分工让整条流水线的周转率最大化。
⚠️ 建模陷阱:地球系统模型若把"真菌分解"当作单一参数处理,会同时错估先锋与主力两端的速率——分解启动靠子囊菌、深度矿化靠担子菌,两者的温度与湿度响应曲线并不相同。
💡 关键直觉:把两大门类的关系理解为流水线上的前后工序,而不是同一岗位的竞争者。气候变暖改变的是工序节拍,任何一环掉队都会重构碳的去向——从长期封存转向短期矿化,一升一降就是亿吨级的碳平衡倾斜。
五、对决的终点:生态过程处方
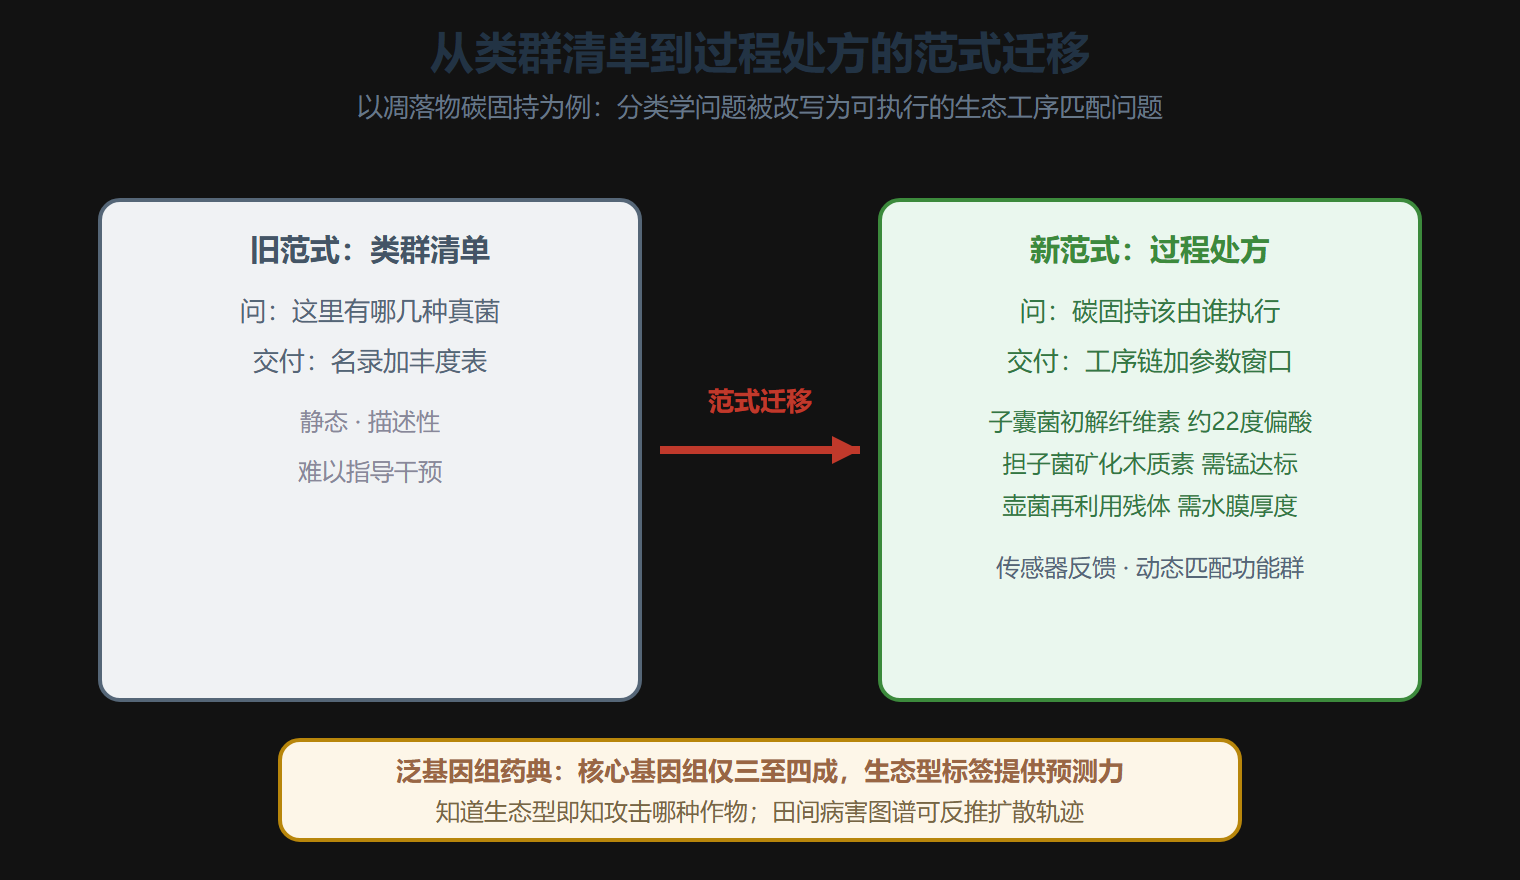
这场持续数亿年的分工对决,正催生应用层面的范式跃迁——从"类群中心"走向"过程中心"。我们不再问"某地有什么真菌",而聚焦"某过程由哪些真菌协同完成"。
先承认这条路眼前的尺度鸿沟:子囊的微米级弹射、菌根网络的百米级调度与全球碳氮循环效应,三者时间常数相差十二个数量级、空间跨度跨越十二个量级——当前没有任何技术能在同一实验体系里同步捕捉。能测出双孢蘑菇的全部基因,却答不出"菌盖展开速率如何响应二氧化碳浓度梯度"这种看似简单的问题。正因如此,过程中心的范式才显得必要:它不追求全景模拟,而是把过程拆解为参数明确的工序,让每道工序在各自的尺度上被单独约束、再耦合进整体模型。生态学长期定位观测站在这里扮演关键角色——对连续十余年土壤样本的转移概率分析,已能量化湿润期担子菌向干旱期子囊菌转变的临界阈值,这正是一道"工序"的参数。
以"凋落物碳固持"这一生态过程为例,它可被拆解为工序链:子囊菌启动的纤维素初解(最适约 22 摄氏度、偏酸条件)、担子菌主导的木质素矿化(需要锰离子浓度达标)、壶菌介导的微生物残体再利用(需要足够厚度的水膜)。每个子过程对应特定的结构—功能组合;环境传感器网络实时反馈参数后,模型可以动态匹配最优真菌功能群——这不再是分类学清单,而是可执行的"生态过程处方"。
泛基因组学正在给处方提供药典:同一真菌物种内核心基因组仅占三到四成,其余可变基因组中大量基因与特定生态位直接相关。未来分类单元或将标注生态型标签——番茄致病型与香蕉致病型的尖孢镰刀菌,区别不在核糖体序列,而在一段约 127 千碱基对、携带三个宿主特异性效应蛋白基因及配套分泌调控网络的水平转移染色体片段。分类学由此获得生态预测力:知道生态型,就知道了它将攻击哪种作物、需要哪种防控;反过来,田间出现的病害图谱也能反推生态型的扩散轨迹。
从类群清单到过程处方的范式迁移
本节速览
- 双引擎定性:子囊菌是分子精度引擎(调控语法复杂、周转快),担子菌是宏观建构引擎(结构整合强、蹲守久)
- 时序接力:朽木变色环是酶系活性的空间指纹——子囊菌酸区启动、担子菌锰区攻坚、毛霉类缺氧区收尾
- 碳循环分账:担子菌主导每年 170 亿吨木质残体降解的四分之三以上,子囊菌以 12% 丰度贡献 63% 糖苷水解酶转录本
- 木质素垄断的结构原因:木质素矿化需要持久菌丝体蹲守,恰是锁状联合网络的强项
- 建模警示:真菌分解不能当单一参数,两端工序的温度湿度响应曲线不同
- 过程处方:从类群清单到功能分工处方,是分类学获得生态预测力的出口
子囊菌 vs 担子菌:核心指标对撞表 ───────────────────────────────────────────── 指标 子囊菌门 担子菌门 ───────────────────────────────────────────── 已描述种 >64,000 >32,000 腐解策略 软腐/褐腐偏软 白腐/褐腐 降解组合 酶系更强 木质素主攻 漆酶+介体 过氧化物酶 体系 三剑客 孢子发生 内生(子囊内) 外生(担子上) 8 枚 4 枚 双核期 无(质配即核配 多年双核化 居多) (锁状联合) 基因组均值 ~37 Mb ~46 Mb ───────────────────────────────────────────── 分工结论:子囊菌擅"化学面"攻 略性降解,担子菌擅"结构面" 大宗拆解,陆地分解双轨制
碳氮循环分工测算(温带森林示意) ───────────────────────────────────────────── 环节 主导方 贡献估计 ───────────────────────────────────────────── 凋落叶早期破碎 子囊菌 约六成 木质素深度矿化 担子菌白腐 约七成 纤维素大宗分解 担子菌褐腐+ 平分 子囊菌软腐 枯木长期驻留 担子菌 周转以 数十年计 根际残体细粒化 子囊菌 周转以 月计 ───────────────────────────────────────────── 模型提示:任何只算单门的碳模型 都会系统性低估周转的异质性
下一章从静态分工转向动态博弈:物种如何形成、种群如何分布、多样性靠什么机制在扰动中自我维持。