2.2 突触:传导与可塑性的转账
2.2 突触:传导与可塑性的转账
本节摘要:本节讲神经元之间清账的接口——突触。先是突触怎么把一次放电传到下一个神经元(兴奋性或抑制性转账),再讲突触怎么"改账"(长期增强 LTP 与长期抑制 LTD),这正是记忆与学习在生物层的物质基础,也是第 3 章学习规则的来源。
上一节你认识了单个神经元这一笔账,这一节把它两个神经元之间连起来:一个神经元放完电,怎么影响下一个?答案是突触。突触是账与账之间的转账记录——既负责把账传过去,也负责在反复转账中改账。这是全册把"生物"和"学习"接上的关键一环,通向下节网络,也缓存到第 3 章的突触可塑性规则。
一、转账怎么发生
放电的信号沿轴突传到底部的突触末梢,末梢与下一个神经元树突之间存在一条约二十纳米宽的突触间隙。电信号到末梢后,触发释放化学递质(如谷氨酸、GABA),递质飘过间隙,与下游的受体结合,从而在下游打开离子通道、改变其膜电位。
账在这里有两种方向:兴奋性突触让下游膜电位抬升(往放电阈值方向拉),抑制性突触把下游往下压(往静息方向赶)。一个神经元收到的往往是成千上万笔这样的小额转账,方向有正有负,最终汇成它胞体里的表决——这就是上一节讲的"累积"。
二、改账:LTP 与 LTD
转账最迷人的部分是它能被"改账"。大脑记忆不是凭空开新账户,而是调整现有突触的转账汇率——用得多、时序合适的就能更强。这套"改账"在生物上对应两件事:
- 长期增强(LTP):某个突触被反复、高频地协同激活后,转账效率上升——下游对同一笔输入反应更强烈。简言之,常用账升值。
- 长期抑制(LTD):某个突触长期低活动或时序错开,转账效率下降——冷落账贬值。
两者的尺度都是"分钟到小时乃至长久"的,所以叫长期,区别于短促的可逆变化。写入机制上,与下游谷氨酸受体(如 NMDA 受体)的通流和钙离子浓度相关——钙账进得多,就往增强方向修;进得少,就往抑制方向修。
这里埋一个全册的伏笔:第 3 章的 STDP 规则,正是把"长期增强与长期抑制"翻译成"突触前后两个尖峰谁先谁后、间隔多长"的量化账本。你在生物层记住"高协同增强、错时序削弱"就够了,数学账在第 3 章再细算。
三、把突触放进一张标注图
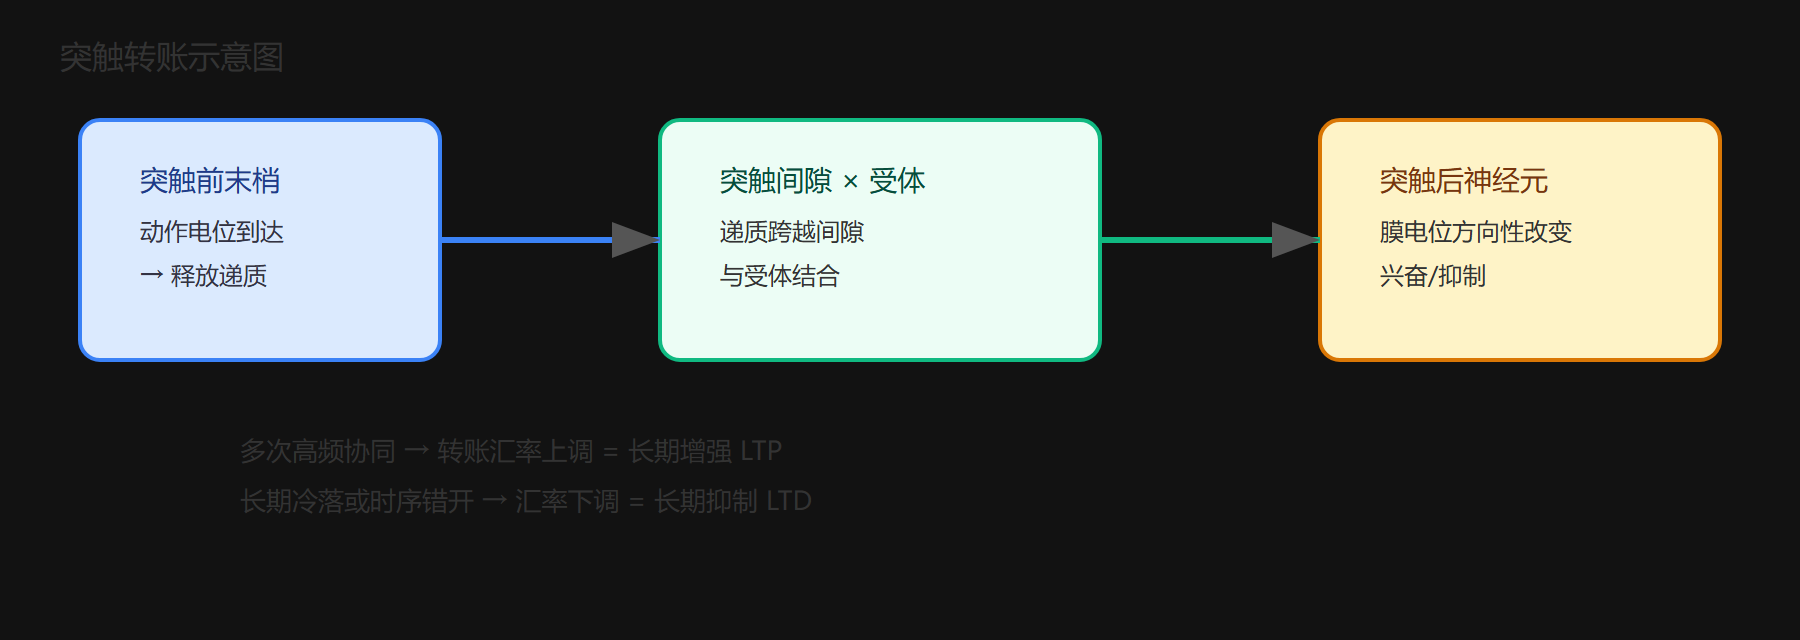
四、改账尺度与坑
⚠️ 别把突触改账等同于"改参数就完事"。生物改账有尺度限制:too 强会不稳定,too 弱则学不动。真正落地的可塑性规则都得对"何时增强、何时削弱、上限多少"做约束,这自然引出第 3 章的 STDP 时间窗越界问题。
💡 关键直觉:把突触权重视为"转账汇率"。你的记忆力,本质是成千上万笔汇率经反复协同上扬、又因冷落下浮的结果——这就是"用进废退"的账本数学。
五、递质分工与"兴奋-抑制平衡"这笔总账
把转账讲细一点,你会看到两种递质各司其职:常见的兴奋性递质谷氨酸让下游离子通道打开、膜电位抬升;抑制性递质 γ-氨基丁酸(GABA)打开的是另一类通道,把膜电位往下压。两者不是"一个好用一个不好用",而是分工互补——缺少抑制,网络就会陷入"人人抢着放电"的失控;抑制到位,整张网络才稳。
想象一个神经元,树突上稀疏分布着几千个突触。某个瞬间,可能有三百笔兴奋性小额进账、两百笔抑制性小额外流,净进来的一点点,顶不破阈值,什么都不发生;只有当兴奋性涌入明显多于抑制时,膜电位被推过阈值,才放一次枪。这套"海量小额、方向相抵、最终表决"的机制,正是第 2 节"累积"的物理细节——它说明神经元的账不靠一笔巨款,而靠成千上万笔小额周转的合力。
一笔账之外的权衡:大脑中兴奋性突触远比抑制性突触多(比例悬殊是结构特点),但因为抑制性突触更能"一票压住"或位点更关键,两者仍能做到净平衡。一旦兴奋与抑制失衡——无论是病变、药物还是损伤打破它——就会出现痉挛、惊厥等失控。临床脑电里看到的异常放电,很多正是因为这条"兴奋-抑制总账"破了界。把这个比喻记牢,你读第 4 章时会发现:神经形态芯片里同样要有一套"防失控"的机制(如正负权重、抑制性连接、归一化),本质都是替生物这笔"兴奋-抑制平衡账"守门。
六、把"改账"翻译成设计约束
理解了 LTP/LTD,别急着当故事听完,它其实预告了后面所有学习规则的三个硬约束。第一,改账要有方向——同一突触既可能上调(高协同)也可能下调(冷落错序),规则必须说清什么时候朝哪个方向动,而不是一味涨。第二,改账要有上限——LTP 不能无限增强,否则网络刷几下就饱和、失去分辨力;LTD 也不能无限削弱,否则学不动。现实中总有一个"可塑区间",越界不是失效就是失控。第三,改账要和活动节奏绑定——生物的可塑性不是"想改就改",而是紧随前一个放电与下一个放电的先后、间隔走。这三条,第 3 章 STDP 的"时间窗 + 强化/削弱"就是对它们的逐条实现。
再往硅上多看一眼:长期可塑性一旦能被低成本电路实现,芯片就能"用着用着自己改账",不必每学一步都回 PC 重新算权重再烧进存储——这就是 Loihi 一类"片上学习"芯片与早期"只推理不可学"芯片的分水岭。也就是说,你现在读的"LTP/LTD 改账",正是第 4 章"片上学习是贵还是便宜"那笔账的生物学根部。把生物改账的这三条约束记牢,后面无论读哪套学习规则,你都有了一把现成的验收尺。
转账与改账的小结
- 突触是转账接口:兴奋性拉向阈值,抑制性压离阈值,汇成下游表决。
- LTP/LTD 即改账:高协同增强(LTP),冷落错序削弱(LTD)。
- 写入与钙账相关:下游受体与钙浓度决定往哪修。
- 为 STDP 铺垫:生物"改账直觉"将被翻译成第 3 章的时间窗量化规则。