2.2 DNA与RNA结构如何约束实验
2.2 DNA 与 RNA 结构如何约束实验
本节摘要:DNA 双链靠碱基配对和堆积力成为稳定档案,RNA 多了 2 位羟基,更容易折叠也更容易被水解。这些结构差别直接写成实验规则:为何引物要按 Tm 设计、为何 RNA 必须灭酶、为何甲酰胺能拉开二级结构、为何尿嘧啶出现在 RNA 而胸腺嘧啶出现在 DNA。结构课应当从你已经做过的 PCR 和抽提往回讲。
核心问题
阅读完本节,你应当能够:
- 用配对规则解释探针杂交、引物退火和测序读长
- 说明核糖 2 位羟基如何同时带来催化潜力与化学不稳定
- 在变性胶、甲酰胺、高温逆转录之间选择对付 RNA 二级结构的手段
- 区分大沟小沟信息对蛋白识别和染料结合的意义
你已经用过结构,只是没给它起名
PCR 退火就是碱基配对。引物能停在模板上,是因为 A 对 T、G 对 C 形成氢键,GC 对更稳,所以 GC 含量高的引物 Tm 更高。胶上二聚体是引物之间配对。克隆的粘端能连上,是因为互补突出端重新配对。测序峰在强发夹处骤降,是因为聚合酶撞上了结构。结构不是另一门课,是第 1 章所有现象的底层约束。
把 DNA 想成拉链。两条链反向平行,碱基是齿。拉开拉链要热或碱或低盐,这就是变性。重新拉上要降温并有足够离子屏蔽磷酸负电荷,这就是复性。PCR 每循环拉一次、合一次。体内解旋酶干的是同一件事,只是用 ATP 而不是用 95 摄氏度。
实验里的结构对应: 退火温度 ← 引物-模板配对强度 甲酰胺 / 脲 ← 破坏氢键和堆积,拉开二级结构 碱裂解质粒 ← 打断氢键,超螺旋行为改变 RNase A ← 认单链 RNA 的嘧啶位点 DNase I ← 切 DNA,条件不同切单链或双链
碱基互补是数字规则也是能量规则。A-T 两道氢键,G-C 三道,GC 更耐热。这就是为什么高 GC 基因组需要更高变性,为什么 qPCR 熔解曲线能区分产物。错配会降低 Tm,3 端错配几乎宣判引物无效,5 端错配有时还能忍——酶是从 3 端开工的。
| 结构特征 | 实验后果 |
|---|---|
| 双链稳定、 grooved | 染料插入、转录因子认序列、限制酶认回文 |
| 反向平行 | 引物方向必须朝向彼此才能扩出中间片段 |
| 5 到 3 合成 | PCR 延伸方向固定,滞后链在体内必须分段 |
| 超螺旋 | 质粒电泳多带,酶切前后迁移改变 |
| RNA 单链可折叠 | 逆转录停顿,需要高温酶或添加剂 |
| RNA 2 位羟基 | 碱水解、核酶、极怕 RNase |
DNA 为什么像档案,RNA 为什么像草稿
脱氧核糖在 2 位是氢,核糖在 2 位是羟基。羟基让 RNA 能形成更丰富的氢键网络,也让碱性条件下容易发生链内攻击而断裂。所以 RNA 在化学上更娇气。细胞用 DNA 存档、用 RNA 传信和催化,和这道化学题一致。你在台上的对策也一致:DNA 可以相对粗暴地涡旋(仍要小心高分子量),RNA 必须从第一秒按住酶和碱。
胸腺嘧啶比尿嘧啶多一个甲基。DNA 用 T,使得胞嘧啶自发脱氨变成 U 时可以被识别为损伤并修掉。RNA 用 U,短命,错误代价不同。实验上,UNG 酶系统正是利用“DNA 里不该有 U”来消化带 U 的旧 PCR 产物,防止污染——这是结构课直接变成防污染工具。
大沟和小沟提供蛋白读取序列的表面。许多转录因子摸大沟的氢键图案;有些染料和抗生素插进碱基对之间或趴在沟里。这解释了为何某些荧光染料对双链特异(第 1.1 节的定量),为何溴化乙锭一类嵌入剂能让 DNA 在紫外下发光,也解释了为何它们必须按实验室规范处理。
二级结构对 RNA 实验是日常障碍。tRNA 的三叶草、核糖体 RNA 的致密折叠、mRNA 5 端发夹,都会让逆转录酶停下来或引物绑不上。对策分层:提高反应温度、用能在高温工作的酶、加甲酰胺或 DMSO、引物避开结构区、随机六聚体从多点开工。第 3.4 节会把这些写成 cDNA 配方。此刻只需记住:单链不等于没有结构,单链更容易自己和自己配对。
⚠️ 常见坑:按 DNA 的 Tm 公式去设计 RNA 杂交,却忘了 RNA-RNA 和 RNA-DNA 双链的稳定性与 DNA-DNA 不同。探针实验要按实际双链类型选温度。
💡 关键直觉:配对是可逆的物理过程。所有杂交、退火、变性温度,都是在这条可逆反应上选工作点,不是魔法数字。
超螺旋是质粒特有的结构状态。完整环状双链在细胞内被回旋酶拧紧,电泳时超螺旋跑得快,开环慢,线性居中——所以未酶切质粒常看到多条带,不是“抽脏了”。限制酶切开后应变成一条线性带。克隆鉴定用这个变化确认切开;转染实验有时偏好超螺旋,因为它进入细胞后的命运与线性不同。
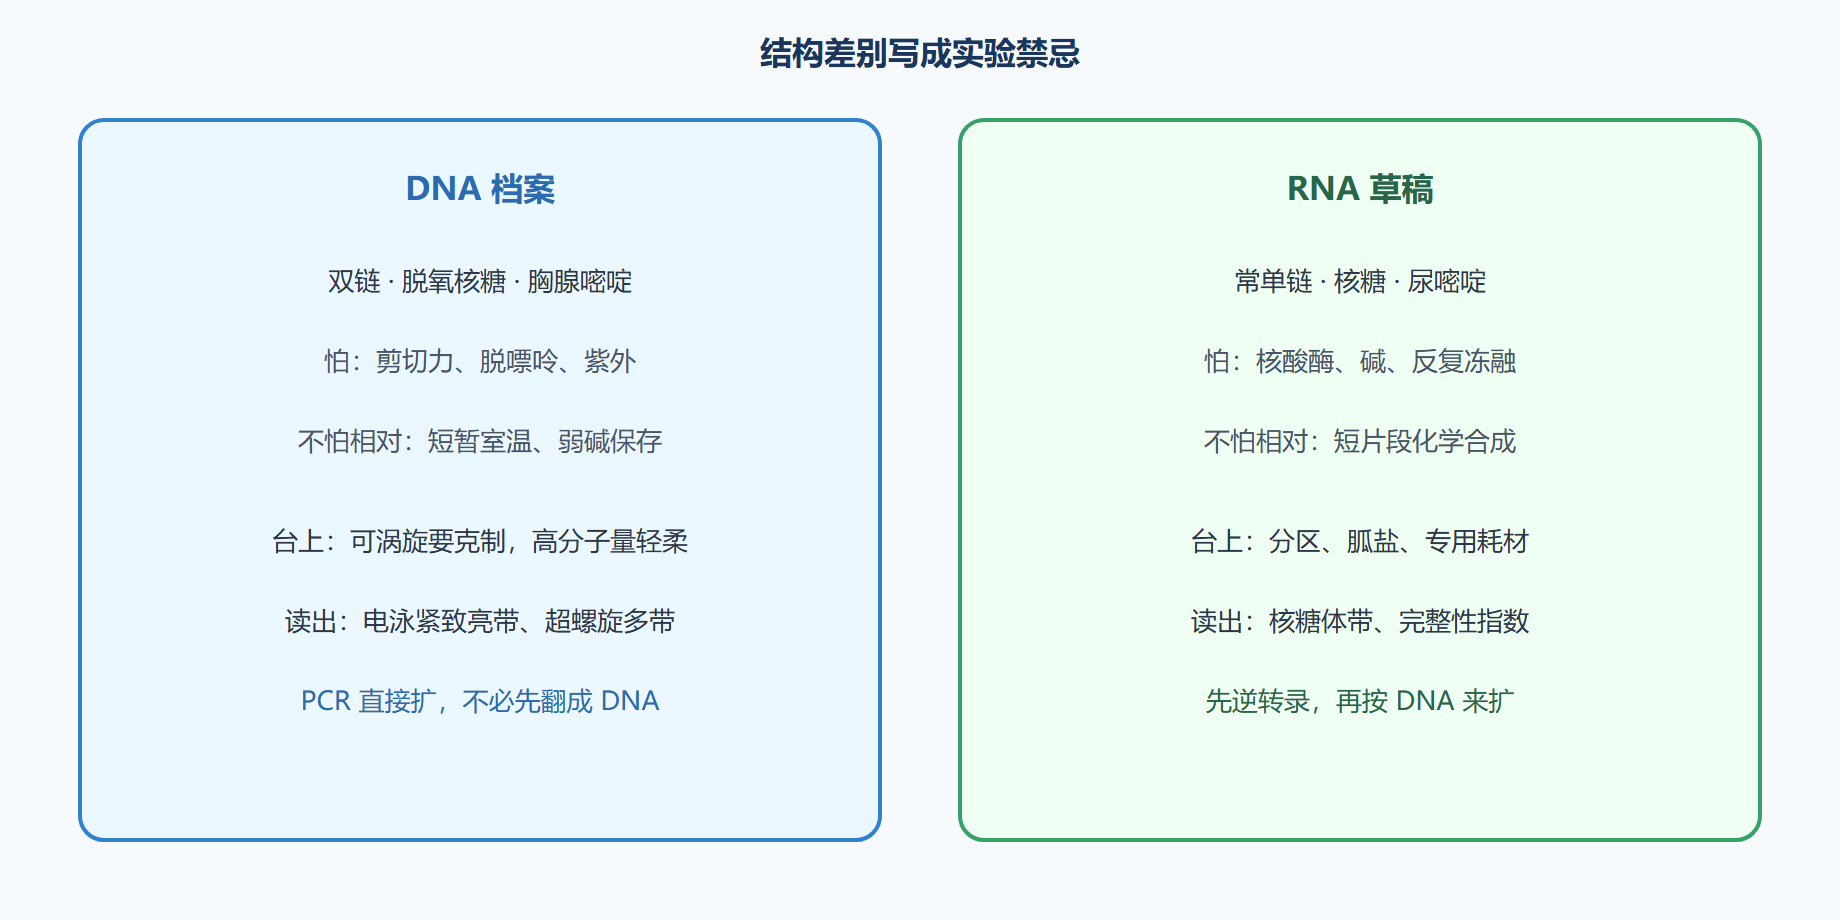
图 DNA 与 RNA 的实验约束对照
工程实践:把结构写成参数
设计引物时把结构当约束求解。避开模板上的长发夹;3 端落在特异且不要 GC 夹得太死或太松;两条引物不要 3 端互补。探针杂交严格性用温度和甲酰胺调节:提高严格性,错配探针掉下去,近缘序列可以被区分,这也是分子诊断的物理基础。
变性电泳用于 RNA 和单链分析,因为非变性胶上 RNA 会按折叠形状乱跑,分子量梯子失效。DNA 常规鉴定用非变性琼脂糖就够;要分单碱基或构象,才上 PAGE 或毛细管。选胶的本质是:你想看长度,还是想看形状。
限制酶认双链上的特定序列,通常回文。单链 DNA 不是它们的好底物。PCR 产物若末端不完全双链,酶切效率会掉,需要先纯化或补平。甲基化是结构上的化学贴纸,能挡住某些酶,这在克隆一节已经碰到,根源仍是沟槽里多出来的甲基改变了蛋白识别面。
核酸酶类型要认清。RNase A 喜欢单链 RNA 的嘧啶;RNase H 切 RNA-DNA 杂合链里的 RNA,正是 cDNA 第二链合成和 crRNA 相关机制会用到的活性;DNase I 在不同离子条件下偏好不同。用错核酸酶,会把模板吃掉还以为是扩增失败。
问题:为什么 G 四联体让测序和 PCR 痛苦?
富 G 序列能形成四链结构,稳定性超过普通双链。聚合酶走过去会停或滑。对策包括添加剂、7-去氮 dGTP、改引物避开、或换能处理硬结构的酶。这不是“这段基因神秘”,是鸟嘌呤的氢键几何允许另一种折叠。
问题:甲醛变性胶还要不要做?
教学和快速判断可以用预染完整性仪器替代部分甲醛胶。仍要理解原理:甲醛打断 RNA 的分子内配对,让迁移主要反映长度。你若在非变性胶上看 RNA 位置怪异,先别发明新异构体,先问它有没有折叠着跑步。
离子强度对配对的影响常被低估。低盐下磷酸骨架互斥,双链更易打开,杂交更严;高盐屏蔽负电荷,错配也能稳住。PCR 缓冲的盐是厂家折中,你额外加盐等于改严格性。探针杂交、Southern、FISH 都在这条盐-温度平面上工作。甲酰胺降低有效 Tm,用来在不太热的条件下达到高严格,对组织片更友好。这些是结构课的现场换算,不是另一门物理化学。
碱基类似物和修饰碱基会改配对与酶识别:尿嘧啶 DNA 糖苷酶认 U,某些限制酶认甲基化,测序仪对修饰碱基的呼叫会出错。表观实验和损伤实验必须把这些写进方法,否则“突变列表”里混着化学假象。G 四联体、三链、R 环在特定序列上稳定存在,复制和转录都会受阻,基因组不稳定有时从这里来。PCR 只是把同一现象缩进管子。
设计 antisense 或 CRISPR 时,靶序列的可及性受双链和染色质约束。体外裸 DNA 上切得很欢的酶,进核后可能几乎不切。这把第 2 章接到第 6 章:结构不只在离心管里,也在基因组地理里。RNA 的化学合成修饰(硫代、2 甲氧基)用来抗核酸酶,正是在跟 2 位羟基和酶的偏好作对。siRNA 试剂的稳定性来自结构工程,不是来自包装上的“高效”二字。
Tm 计算器依赖盐模型,和你的缓冲只是近亲。关键引物仍用梯度确认。杂交洗脱的严格性用温度和甲酰胺两维调,只调一维容易把探针洗丢或留下非特异。甲醛和异硫氰酸胍都在改 RNA 结构与酶活性,操作时的气味不是风格,是化学在工作,通风橱不是可选。限制酶的识别序列写在管子上,避免拿错切出一堆星号产物。超螺旋质粒转染效率常高于线性,但整合实验可能反过来。用途写清再选拓扑状态。RNA 二级结构预测能帮你躲引物,不能替代高温逆转录的预实验。预测是地图,走路仍要看胶。把结构约束写成你实验室的禁止事项清单:禁止未灭酶的 RNA 加热,禁止高分子量 DNA 涡旋,禁止 3 端互补的引物对过审。清单比课堂定义更短,也更硬。
配对几何解释了为何引物三端错配几乎宣判死亡,而五端挂一段限制酶位点常常还能扩。酶从三端开工,这是结构对操作的单向命令。变性剂浓度滴定在杂交实验里比品牌更重要。甲酰胺百分比写进方法,后人才能重复严格性。RNA的碱水解是二位羟基的化学课,清洗剂残留偏碱会在不知不觉中咬短RNA。冲洗用水的酸碱度值得看一眼。四链结构稳定剂和破坏剂是研究工具,日常扩增遇到富鸟嘌呤区先换引物位置,再考虑特殊核苷酸。结构问题能用设计躲开时,就不要用添加剂硬刚。
RNA 的二号羟基让碱和核酶都有把柄。配引物时把模板二级结构当成必须对抗的对象,而不是产物没有之后才用助溶剂补救。DNA 更怕剪切力,长基因组抽提时少涡旋、大口径枪头,比再买一管连接酶更有效。
重点提炼
- 配对就是退火:Tm、严格性、二聚体、粘端连接,全是同一物理过程。
- 酶从 3 端开工:所以 3 端错配和 3 端互补特别致命。
- 2 位羟基改变一切:RNA 更会折叠、更易水解、必须灭酶。
- U 与 T 的差别可被工具化:UNG 防污染靠的就是 DNA 不该有 U。
- 单链会自己配对:RNA 二级结构是逆转录和探针的日常敌人。
- 超螺旋改变迁移:质粒多带常常是拓扑状态,不是杂质。
- 选胶是选长度还是选形状:变性看长度,非变性会混进构象。
下一节转向蛋白质:SDS-PAGE 上的一条带,如何映射一级序列到四级组装,以及还原剂为何让条带搬家。