4.1 IPTG诱导与原核操纵子
4.1 IPTG 诱导与原核操纵子
本节摘要:大肠杆菌乳糖操纵子是原核调控的教具,也是蛋白表达的工业开关。无乳糖时阻遏蛋白挡住转录;乳糖或 IPTG 让阻遏蛋白松开;葡萄糖充足时 cAMP 低,激活蛋白 CAP 不上岗,即使有 IPTG 也诱导不爽快。台上你加 IPTG 的时间、浓度和培养基碳源,就是在拧这两道阀门。
你能学到什么
阅读完本节,你应当能够:
- 画出乳糖操纵子在“有无乳糖、有无葡萄糖”四种组合下的状态
- 解释为何 IPTG 比乳糖更常用于表达:它不被代谢掉
- 设计诱导时间曲线,并识别过诱导导致的包涵体
- 把漏表达、不表达对照写进每一次摇瓶
先加 IPTG,再问它碰了谁
表达日最具体的动作是:菌长到一定浊度,加入 IPTG,继续摇,收菌跑胶。这个动作之所以能改变产量,是因为许多载体把目标基因放在 lac 相关启动子后面,或使用 lac 阻遏蛋白去管 T7 这类更强的开关。IPTG 长得像乳糖的诱导物,但不被细胞当碳源消耗,所以浓度相对稳定,被称为安慰诱导物。你拧的是阻遏蛋白的口袋,不是“营养更好所以蛋白变多”。
把操纵子当成配电箱。阻遏蛋白是总闸,CAP 是只有在缺糖时才合上的节能开关。两道闸都合上,电机(RNA 聚合酶)才高功率运转。只松开总闸但市电充足(葡萄糖在),电机仍怠速——这就是分解代谢阻遏,也是为何在含葡萄糖的丰富培养基里诱导有时很懒。
四种营养组合 概念结果: 无乳糖 有葡萄糖 关闭 无乳糖 无葡萄糖 仍关闭 阻遏蛋白还在 有诱导 有葡萄糖 弱开 缺 CAP 激活 有诱导 无葡萄糖 强开 经典诱导
实际表达菌株更复杂:T7 系统用 lac 开关去管一条很凶的 T7 聚合酶,目标基因再由 T7 启动子驱动,等于开关后面接了放大器。漏表达会毒死宿主或让质粒不稳定。这就是为什么有 lacIq 高阻遏、有葡萄糖抑制本底、有 pLysS 一类再加一层 T7 溶菌酶刹车。
| 参数 | 它实际拧的阀门 | 拧过头 |
|---|---|---|
| IPTG 浓度 | 阻遏蛋白占用 | 不一定增产,可能增加包涵体 |
| 诱导时浊度 | 细胞状态与负荷 | 太晚资源耗尽,太早生长被拖垮 |
| 温度 | 合成速度与折叠 | 低温慢但常更可溶 |
| 葡萄糖 | CAP 激活与本底 | 高糖压抑 lac 类启动子 |
| 诱导时间 | 累积产量与降解 | 过长降解和细胞死亡 |
机制足够用,不必一次讲完所有操纵子
乳糖操纵子的结构基因编码吸收和切开乳糖的酶。操纵基因是阻遏蛋白的 DNA 座位,启动子是 RNA 聚合酶座位。lacI 基因自己的产物是阻遏蛋白,没有乳糖时占着操纵基因。诱导物结合阻遏蛋白,使其离开。CAP 在 cAMP 高时(缺葡萄糖)帮聚合酶开工。这两层让细菌在真正需要消化乳糖时才花钱造酶。
色氨酸操纵子演示相反逻辑:产物充足时关闭,还有衰减子这种边翻译边转录的精细刹车。你不一定用 trp 做日常表达,但要知道“可诱导”和“可阻遏”是两种拧法。实验室常用的 tet 开关、阿拉伯糖启动子,都是把自然操纵子改成更紧、可调的工具。选型看本底、看诱导剂贵不贵、看是否线性可调。
漏表达是开关关不严。对宿主有毒的蛋白,漏一点就能选出突变质粒或丢失插入。对策是更紧的阻遏、短时间诱导、更低拷贝、或换 tightly 调控的启动子。不要只靠“我少加一点 IPTG”——本底泄漏和诱导强度不是同一旋钮。
⚠️ 常见坑:在含乳糖的自动诱导培养基和 IPTG 手动诱导之间切换,却不改取样时间,然后比较产量。两套开关的时间曲线不同,不是同一实验。
💡 关键直觉:IPTG 解除的是阻遏,不是保证折叠。产量曲线和可溶曲线常常不同步,要分开取样。
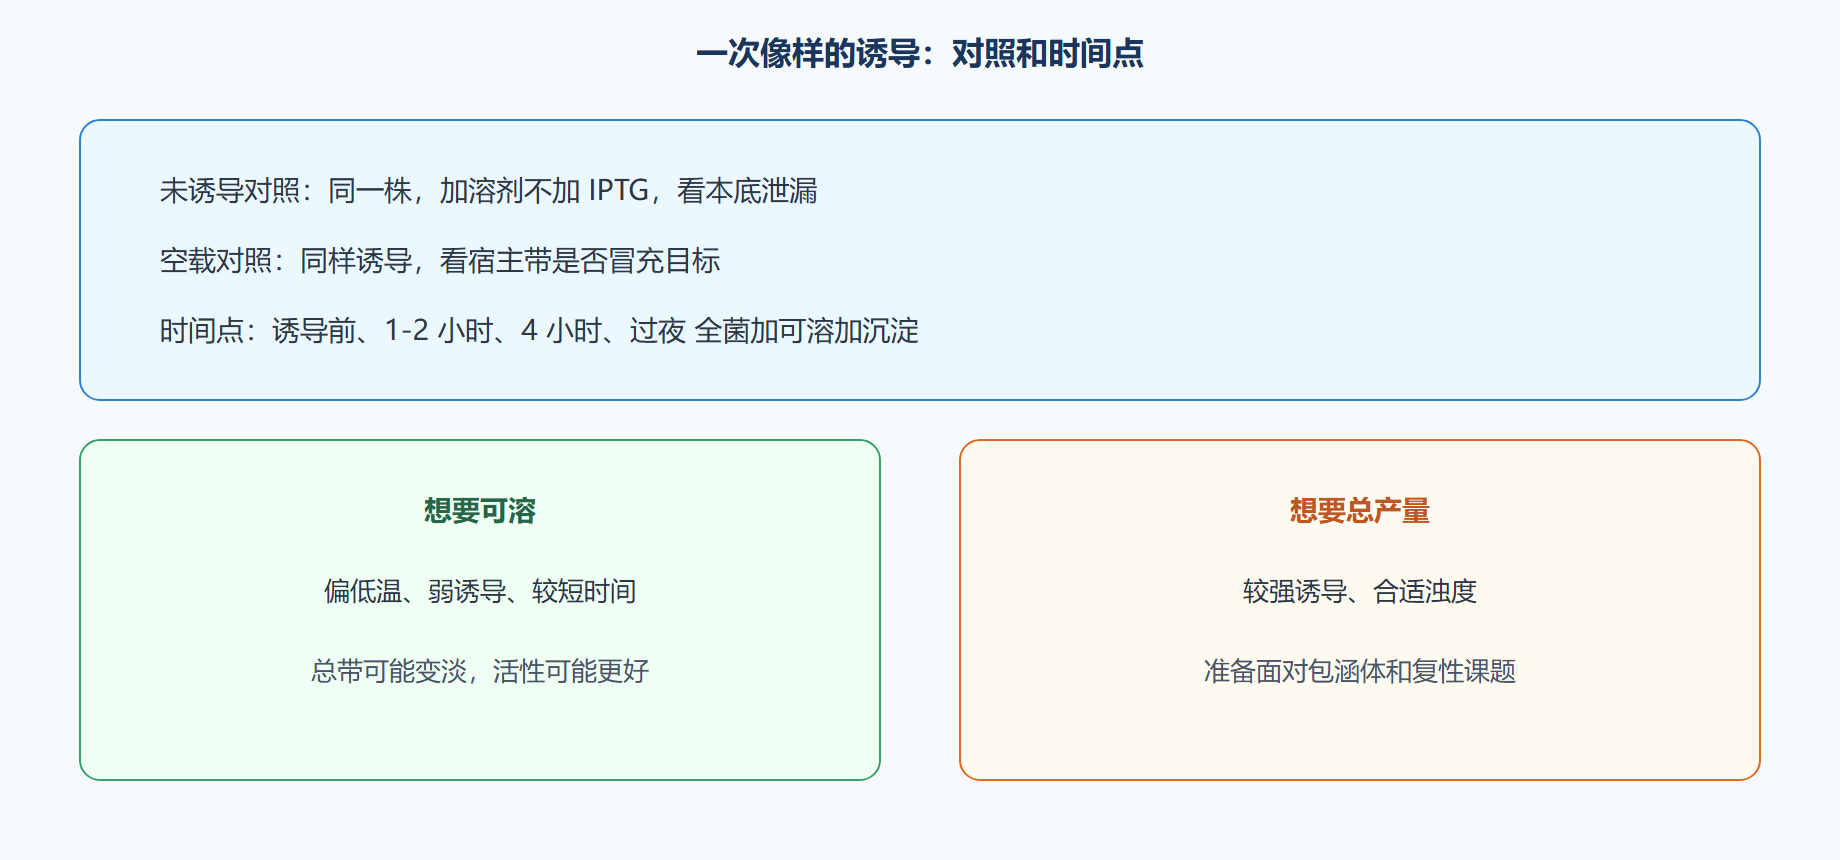
图 诱导时间曲线该怎么采
工程实践:把操纵子写成 SOP
记录碳源。LB 不是零糖真空,组分批次会变。明确需要强诱导时,有人改用定义更清的培养基并控制葡萄糖。自动诱导培养基靠碳源切换在对数后期自己诱导,适合懒而重复的表达,不适合你要精确控制起始时间的动力学。
IPTG 不稳边配边用,母液分装避免反复冻融。浓度常见从很低到毫摩尔级,没有普遍最佳值。做两到三个浓度比迷信某一数字更像实验。对 T7 毒蛋白,有时微量诱导比“标准浓度”更成功。
菌种与质粒要匹配。T7 启动子在没有 T7 聚合酶的宿主里几乎不工作。把 T7 载体转进普通克隆菌,再怪 IPTG 没效,是开关插错配电箱。抗性、温敏复制子、溶原酶菌株,读载体说明,不要凭记忆。
原核还有转录与翻译耦合、衰减、小 RNA 调控。日常表达用不到每一层,但解释“为什么这段 5 端非翻译区改一下产量就变”时,这些层会回来。先把阻遏和 CAP 两道闸拧明白,再加层。
问题:为什么加了 IPTG 菌不长了?
目标蛋白有毒,或代谢负担太大。降低拷贝、紧调控、缩短诱导、换可溶策略、换宿主。强行加更多 IPTG 通常更糟。生长停顿是数据,不是麻烦。
问题:可以用乳糖代替 IPTG 吗?
可以,工业上更便宜,但乳糖会被消耗,浓度和时机更难控,且依赖乳糖透过酶——而 lacZYA 若被你的载体策略改掉,乳糖进不去。IPTG 走的转运路径也受基因型影响,不是无限自由扩散的神话,高浓度下才更不依赖转运。选型看规模和是否要精确时间。
lacUV5 一类启动子突变减弱了葡萄糖压抑,工业和实验室常用它来让 IPTG 更听话。这提醒你:不是所有写着 lac 的开关都还保留完整的双闸。读载体图谱上的启动子名字,查它还听不听 CAP。阿拉伯糖启动子诱导更可调,但受转运和代谢影响,剂量曲线在不同糖背景下会歪。四环素开关在细菌和真核都有衍生,诱导剂本身的光敏和螯合要管。开关是生态系统,不是一个分子。
高密度发酵中溶氧和乙酸积累会改表达,摇瓶里漂亮的 IPTG 浓度到了罐里要重滴。研究论文若只做摇瓶,就不要把参数写成工艺。漏表达筛选:不诱导也有带,对有毒蛋白意味着质粒在变。测序插入和启动子,看是不是突变逃逸。逃逸株长得更好,会在传代中占领摇瓶,看起来像“突然不表达了”。甘油菌要从验证过的低代数留,不要从老平板刮。
原核小 RNA 和核糖体开关是更细的层,日常 IPTG 表达用不到,但解释代谢物诱导的奇怪剂量曲线时可能回来。先把阻遏和 CAP 两层测明白:无诱导本底、有诱导产量、加葡萄糖是否压低。三张胶比一篇操纵子综述更能证明你的开关在这个菌株里还认账。
IPTG 母液避光分装,写溶解日期,过期不要靠“还能用”的气味判断。诱导剂加入后混匀再计时,局部高浓度会造出包涵体斑。葡萄糖压抑若被你当作开关使用,就要测含糖和不含糖两套。自动诱导方便,但起点不可精确,动力学论文慎用。T7 溶菌酶质粒降低本底,也降低诱导后斜率,需要重新滴定时间。漏表达的毒蛋白改低温、改更紧启动子、改累加诱导,而不是改“再试一次同一条件”。甘油菌代数写明,高代数出现不表达时先测序质粒再骂基因。逃逸是进化,不是运气。把进化写进表达失败的鉴别诊断名单。
阻遏蛋白水平受菌株基因型影响,换菌株等于换开关松紧。不要把在一种表达菌滴定好的诱导剂浓度原样搬到另一株。阿拉伯糖与该诱导剂双开时注意碳源竞争和转运饱和。双诱导论文必须有单诱导对照。本底泄漏用无诱导胶说话,不要用感受保证。有毒基因的无诱导胶若已有带,先紧开关再谈产量。发酵过程中酸碱度下滑会改表达,缓冲培养基或控酸。摇瓶里加缓冲盐有时就能让曲线老实一点。把试纸当廉价传感器,比事后猜代谢故事便宜。
换表达菌株等于换阻遏松紧,诱导剂浓度必须重滴。把上一株的数字抄过来,是开关实验最常见的懒。无诱导胶仍有带时,先承认泄漏,再决定是否还能用这株产有毒蛋白。碳源是否压抑第二道闸要单独测。自动诱导方便,但不适合要精确起点的动力学。甘油菌写代数,高代数不表达先测序逃逸。
无诱导胶有带就是泄漏数据。有毒蛋白遇上泄漏先紧开关。碳源、代数、溶氧写进同一页。自动诱导不适合精确起点。换株重滴诱导剂,抄数字是懒,不是传承。pH下滑会改曲线,缓冲盐是廉价传感器。T7是放大器,本底会被放大成毒性。甘油菌从低代数留。
泄漏先于产量。无诱导已有带,有毒蛋白就该紧开关而不是加诱导剂。换株必重滴。碳源、代数、溶氧、酸碱度同一页。自动诱导不适合起点动力学。T7放大本底。逃逸先测序。试纸测酸比事后代谢故事便宜。抄上一株的数字不是传承。
泄漏、换株重滴、碳源闸、代数逃逸、溶氧装液、酸碱试纸,六项与诱导剂浓度写在同一页。六项空白的摇瓶,产量数字没有工艺含义。有毒蛋白遇见泄漏先紧开关。自动诱导不进动力学论文。抄浓度不是传承。
诱导时的菌密度比诱导剂终浓度更常被忽略。太密则溶氧掉、产物来不及折叠;太稀则单位体积产量不够用。先做小体积密度梯度,再放大。诱导剂粉末受潮会让同一数字对应不同有效浓度,称量之后立刻分装冻存。
核心回顾
- IPTG 拧的是阻遏蛋白:不是万能营养开关。
- 两道闸:阻遏解除加 CAP 激活,葡萄糖会压第二道。
- 安慰诱导物不被当碳源吃掉:所以比乳糖好控。
- T7 是放大器:漏表达会被放大成毒性。
- 时间曲线分全菌与可溶:总产量峰值不是活性峰值。
- 空载和未诱导是一对对照:缺一不可。
- 启动子必须认宿主:T7 载体进错菌等于没插电。
下一节进入真核:报告基因很亮的时候,内源基因未必在听同一句话。