4.2 真核报告基因与多层调控
4.2 真核报告基因与多层调控
本节摘要:真核基因调控发生在染色质可及性、转录因子与增强子、剪接、出核、mRNA 稳定、翻译、蛋白降解多层。实验室最顺手的是把启动子片段接到报告基因上,读荧光或荧光素酶。报告告诉你这段序列在质粒语境下够不够驱动转录,不等于染色体上的内源基因在做什么。要用报告,先承认它省略了哪些层。
阅读收获
阅读完本节,你应当能够:
- 列出真核调控的主要层次,并指出报告基因默认读到哪一层
- 设计双报告系统减少转染效率噪声
- 解释增强子、绝缘子、染色质开放如何让同一启动子在不同细胞里命运不同
- 判断什么时候该改做染色质免疫沉淀或内源编辑,而不是再画一段启动子
报告基因很亮,问它亮的是哪一层
把疑似启动子接到荧光素酶前面,转进细胞,加刺激,酶活上升。结论常常写成“该启动子被激活”。更谨慎的句子是:在这个质粒、这个细胞、这次转染条件下,这段序列足以提高报告输出。质粒通常是裸露或轻度染色质化的环,增强子-启动子的基因组距离、拓扑结构域、DNA 甲基化格局都被简化或丢掉了。
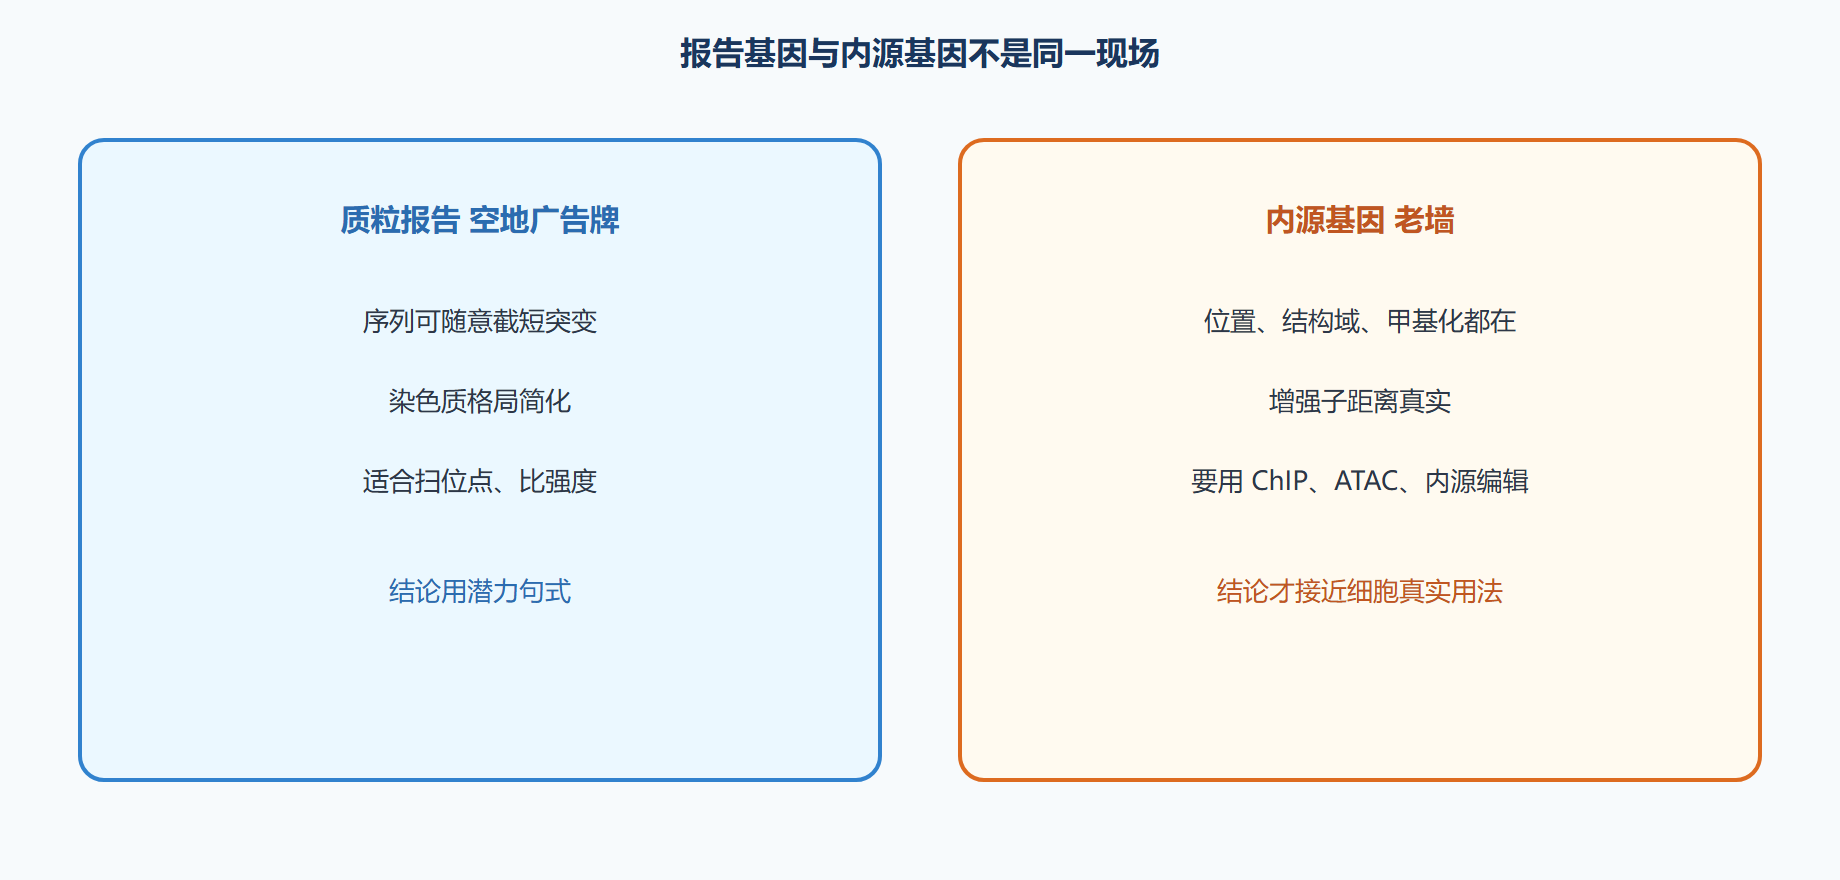
把它当成在空地上支一个广告牌测文案效果。文案(启动子序列)能让路过的人停下,不证明同一文案钉在博物馆老墙上、被玻璃和安保围着时还有同样效果。内源基因住在老墙里。报告是空地广告牌,便宜、可重复、适合扫突变,不要拿它替代老墙调查。
报告实验最小包装: 空启动子报告 本底 全长或截短系列 找必要区段 突变关键位点 因果 内参报告 转染效率 刺激的无药对照 最好再有内源基因 qPCR 对照
真核多层可以按信息流排。染色质:核小体密度和组蛋白修饰决定转录因子能不能摸到 DNA。转录起始:启动子和增强子结合激活或抑制蛋白,RNA 聚合酶 II 被招募。延伸和暂停:聚合酶出发不等于走完。加工:剪接、加尾选择异构体。出核与定位。翻译调控。蛋白寿命。报告基因默认主要读“这段启动子在质粒上能否驱动转录并让报告蛋白累积”,后面几层要么被标准化掉,要么混进输出里分不开。
| 层次 | 常用实验 | 报告质粒是否看见 |
|---|---|---|
| DNA 甲基化 / 染色质 | 亚硫酸盐、ATAC、ChIP | 基本看不见内源格局 |
| 增强子远程 | 染色体构象、内源缺失 | 质粒上距离被改写 |
| 启动子结合 | 报告突变、ChIP | 部分看见 |
| 剪接异构体 | RNA-seq、异构体 qPCR | 通常看不见 |
| 翻译与降解 | 多聚核糖体、蛋白半衰期 | 混在酶活里 |
转染噪声与双报告
转染效率孔间不同,细胞状态不同,裂解效率不同。单报告的孔间差异可以吞掉两倍生物学效应。双报告把一个组成型启动子驱动的第二酶或荧光当内参,比值降低转染噪声。内参启动子也不能对你的刺激敏感,否则你在用一根也在动的尺子。
增强子可以远离启动子仍起作用,靠成环。质粒把增强子硬接到附近,可能夸大或扭曲。绝缘子和拓扑结构域在基因组上限制谁能跟谁说话,质粒没有这张地图。所以增强子鉴定现在更依赖内源扰动:CRISPR 干扰、缺失、单碱基编辑,而不是只靠报告。
表观遗传修饰不改碱基序列,却改可及性。DNA 甲基化常与沉默相关(尤其在启动子 CpG),组蛋白乙酰化常与开放相关,组蛋白甲基化视位点和组合而定。报告质粒刚进细胞时这些标记还来不及按内源格局铺好。稳定整合的报告更好一点,但仍取决于整合位置。随机整合进异染色质会沉默,这是位置效应,不是你的启动子“没活性”。
⚠️ 常见坑:用过表达转录因子加报告基因的上升,写成“该因子在生理浓度下调控该基因”。过表达可以让因子坐到平时不坐的低亲和位点。
💡 关键直觉:报告回答“这段序列有没有潜力”,内源实验回答“在这个基因组位置它有没有在用”。潜力不是使用中。
诱导系统在真核也有:四环素开关、激素受体融合、化学诱导二聚。它们让你在时间上拧真核转录,类似 IPTG 的角色,但泄漏、诱导剂毒性、细胞类型差异都要单独滴定。不要把细菌那套浓度直接搬过来。
图 广告牌与老墙
工程实践:报告怎么做才不丢人
荧光素酶线性范围宽、本底低,适合启动子比较;荧光蛋白可活细胞看,但累积和折叠慢,动力学钝。选读数要匹配问题时间尺度。刺激后四小时和二十四小时可能一个是转录,一个已经混进稳定性和二级效应。
转染试剂毒性会改变转录组。脂质体把细胞打蔫,报告下降,看起来像抑制。加空载体对照和活力测定。原代细胞和难转细胞,病毒递送本身也在调控免疫基因,解释要小心。
启动子截短实验从 5 端一段段砍,把活性掉下去的地方标成“重要区”。它不能证明那是增强子还是结合位点集群,更不能证明体内用的是同一区。后续应有位点突变和内源数据。把截短图当终局机制,是 1990 年代的遗风,可以当预实验。
表观药物(去甲基化、组蛋白脱乙酰酶抑制)会让很多基因一起动,用它们加报告上升不能点名单一机制。工具太钝,结论必须钝。
问题:稳定株一定比瞬时转染更“内源”吗?
更接近染色质化,但仍取决于插入位置和拷贝数。多拷贝串联会自沉默。有位点特异整合更好。稳定株解决的是重复转染噪声,不是自动获得正确基因组地理学。
问题:增强子报告和启动子报告有何不同?
增强子实验常用最小启动子加候选片段,看有没有额外输出。最小启动子本底必须真的低。否则你在测一段额外 DNA 的非特异效应。仍然要内源验证。
染色质可及性实验和报告实验应分工:ATAC 一类告诉你门开不开,报告告诉你这段序列有没有潜力当文案。两者同向才比较像故事。只有报告变、可及性不变,可能是质粒特有;只有可及性变、内源 RNA 不变,可能开了门但没请来激活因子。层次分开写,比合成一张“调控被激活”的示意图诚实。
增强子突变的内源实验现在常用配对切口或碱基编辑破坏基序,比把增强子接到质粒上更接近老墙。代价是筛选和脱靶,见第 6.1 节。教学上报告仍不可少,因为它快、能扫大量突变。把报告当筛,把内源当证,顺序不要反。稳定报告株的拷贝数要用定量方法看,多拷贝会让药物响应变形,看起来像超灵敏启动子。
激素、生长因子刺激后的时间点要覆盖早期基因和次级基因。只测一个很晚的时间点,报告里混进了半个转录组的间接效应。加上蛋白合成抑制剂看是否还响应,能区分直接靶和间接靶——这是老方法,今天仍然比再画一张更大的网络有用。真核调控的动手优先,就是把时间点和直接间接分清楚,而不是把所有上调基因称为通路。
转染后换液时间影响毒性与表达窗口,按细胞类型写死。荧光素酶裂解液与检测试剂温度要平衡,冷试剂让数值漂移。双报告的两个酶检测顺序按试剂要求,交叉干扰要做过。刺激物溶剂对照必须有,DMSO 自己会改转录。血清饥饿与再刺激是常用同步,但饥饿本身是巨大扰动,要有不饥饿对照。报告质粒的 CpG 含量会影响部分细胞的沉默,长期培养的稳定株尤其。必要时换骨架。内源验证的引物跨外显子,与第 3.2 节同一卫生。没有内源数据的报告论文,结论停在潜力,不要升级到生理调控。升级是另一组实验买的。
最小启动子的本底要用空载体定义,本底高的最小启动子会让增强子实验全是噪声。换骨架或换细胞。稳定株筛选药物撤掉后看是否还亮,有的整合依赖持续选择。拷贝数用基因组定量估。过表达转录因子的剂量曲线比单点浓度更有说服力,单点容易落在非生理区。染色质药物的全基因组效应要用转录组承认,不能把报告上升点名到单一机制。时间点覆盖早和晚,早期更像直接效应。把时间写成机制的一部分,而不是方法的附录。
报告上升只证明质粒语境下的潜力。要升级到内源调控,至少补可及性或内源转录或内源扰动之一。没有升级实验就不要升级句子。潜力与使用中,差的是一整章染色质。时间点覆盖早和晚,晚时间点混进间接效应。过表达转录因子给剂量曲线,单点浓度容易非生理。稳定株要问拷贝和位置,不是自动更内源。
升级句子必须买升级实验。可及性、内源转录、内源扰动,至少一样。晚时间点单独解释间接效应。拷贝数与位置是稳定株的变量,不是自动正确基因组地理。溶剂对照不可省。血清饥饿本身是扰动。截短实验只是预扫描。过表达因子会乱坐低亲和座位。
瞬时转染读到的是质粒拷贝,不是染色体座位上的启动子。要说某段调控序列在基因组里如何工作,至少做稳定整合或同源重组。荧光素酶裂解液的温度和放置时间会改读数,样品要同一批次同一小时内读完。
本节速览
- 报告读潜力:质粒语境下的转录输出。
- 真核有多层:染色质、增强子、加工、翻译、降解,报告大多看不见。
- 双报告降转染噪声:内参本身不能被刺激牵动。
- 过表达转录因子会乱坐座位:生理结论要内源扰动。
- 位置效应让稳定株也沉默:整合位点是变量。
- 截短实验是预扫描:不是机制终局。
- 时间点决定你混进了哪些层:酶活是累积量。
下一节不改 DNA,改 RNA:siRNA 怎么敲低,以及它和细胞内 miRNA、lncRNA 不是同一类开关。