4.3 siRNA实验与非编码RNA
4.3 siRNA 实验与非编码 RNA
本节摘要:小干扰 RNA 把目标 mRNA 交给 RNA 诱导沉默复合物切割,是实验室最常用的短暂敲低手段。它不改 DNA 序列,所以可逆、快、也容易脱靶。细胞内还有 miRNA、lncRNA 等非编码 RNA,机制和实验设计都不等于“再转一条 siRNA”。从转染、对照、补回和读数把敲低做硬,再谈非编码世界,才不会把脱靶当新通路。
先说结论
阅读完本节,你应当能够:
- 写出 siRNA 实验必需的对照:非靶向、转染试剂、最好两条独立序列、补回
- 解释 RISC 切割与 miRNA 翻译抑制在实验读数上的差别
- 判断什么时候该改用 shRNA 稳定敲低或 CRISPR 敲除
- 避免把 lncRNA 敲低的表型直接写成“该 RNA 编码功能”
先把一条基因拧暗,再解释非编码
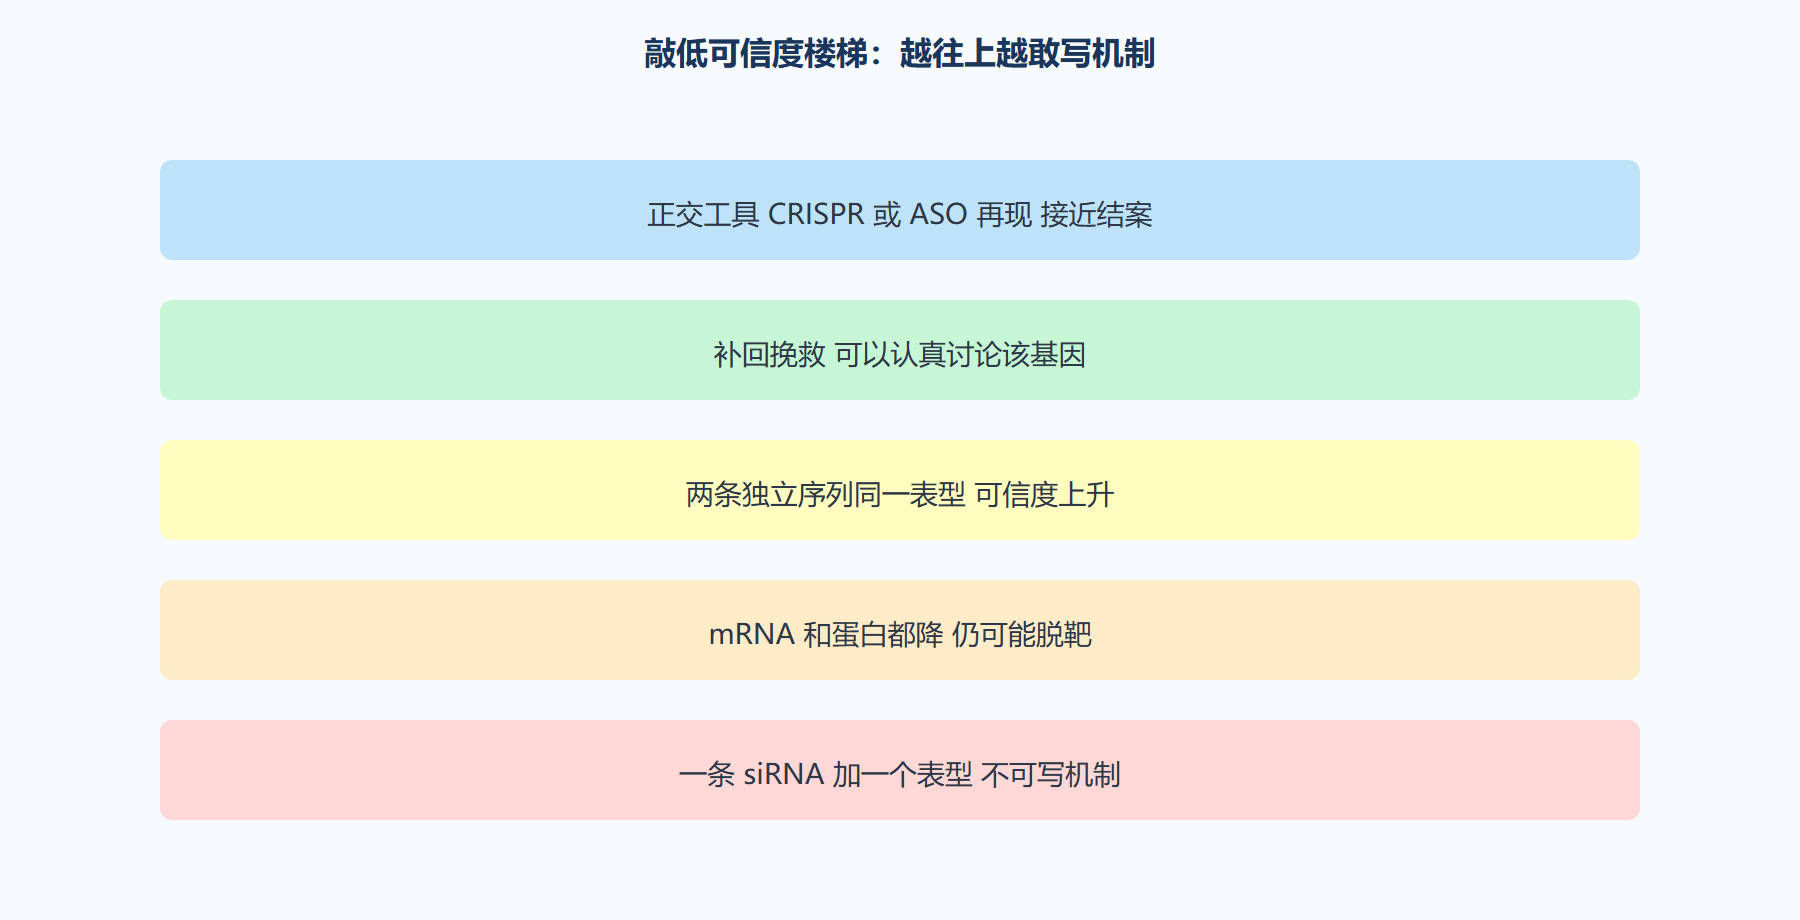
siRNA 实验的第一张图应该是:目标 mRNA 降了、蛋白也降了、细胞还活着、非靶向对照没有同样表型。缺任何一项,后面的通路图都像空中楼阁。转染试剂本身就能激活先天免疫、改变细胞周期,必须有试剂对照。一条 siRNA 的表型,可能是脱靶;第二条独立序列重复同一表型,可信度才上升。补回(沉默抗性的 cDNA 救回表型)是金标准,很多人省掉,然后在文献里吵架。
把它当成用遥控器把一台电视静音。遥控器(siRNA)要对准这台电视的红外协议(序列互补)。对准隔壁电视(脱靶)或把整栋楼断电(毒性/免疫)都会出现“没声音”,但故事完全不同。对照就是在问:是这台电视静音了,还是小区停电了。
siRNA 最小证据链: 1 两条独立 siRNA 都降目标 2 蛋白水平随 mRNA 降 注意蛋白半衰期 3 非靶向对照无此表型 4 转染试剂对照 5 有可能就做补回
机制上,长双链 RNA 被 Dicer 切成约 21-22 对的小 RNA,引导链进入 Argonaute。植物和线虫有扩增,哺乳动物细胞主要靠转进去的 siRNA 工作,所以浓度和持续时间有限。完全互补倾向切割 mRNA;miRNA 常常只种子区互补,更多在翻译抑制和轻度降解上工作,一个 miRNA 对着几十上百个靶。所以“转一条 miRNA mimic”的表型几乎注定是多靶,解释要克制。
| 工具 | 改什么 | 持续 | 主要风险 |
|---|---|---|---|
| siRNA | mRNA 存量 | 天级 | 脱靶、免疫、转染毒性 |
| shRNA 病毒 | 持续产小 RNA | 长 | 整合位置、剂量、脱靶 |
| miRNA mimic | 多靶网络 | 短 | 几乎必然多靶 |
| ASO 反义寡核苷酸 | RNA 或剪接 | 可变 | 化学毒性、分布 |
| CRISPR 敲除 | DNA | 永久 | 克隆选择、补偿、脱靶切割 |
脱靶不是例外,是默认要防的事
siRNA 可以像 miRNA 那样靠种子区压别的基因。高浓度更糟。用尽可能低的有效浓度、化学修饰降低免疫、生物信息避开已知种子问题,仍不能替代第二条序列和补回。转录组对照(看非目标基因乱不乱)有帮助,不是人人都做得到,但低浓度加双序列是底线。
时间窗口:mRNA 常在 24-48 小时降,稳定蛋白可能 72 小时才动。过早看蛋白会说“没敲掉”。过晚 siRNA 被稀释,表型回潮,被说成“不重复”。先做时间曲线。细胞分裂快的细胞稀释更快。
shRNA 从 DNA 转录,适合长期和难转细胞,但病毒量和启动子强度造成超生理小 RNA,抢占内源 miRNA 通路,这是另一类假表型。诱导型 shRNA 比组成型安全。需要彻底没蛋白时,CRISPR 敲除更干净,但克隆筛选会选出补偿突变的细胞,又是另一种假。工具换了,假的形状跟着换,对照不能停。
⚠️ 常见坑:只用 qPCR 看 mRNA 降了 70%,就宣称功能实验里的表型属于该基因。蛋白可能几乎没动,或者脱靶蛋白动了。
💡 关键直觉:沉默实验的硬通货是序列独立重复加补回,不是通路图颜色深。
lncRNA 很长、不编码或几乎不编码,功能可以是顺式(管旁边的基因)或反式(当分子脚手架)。敲低 lncRNA 可能改变染色质或邻居基因表达,表型不一定来自这份 RNA 分子本身,也可能来自扰动了它的 DNA 座位。要区分,需要对照:敲除启动子、插入终止、rescue 用不能被靶向的 RNA。比 siRNA 敲蛋白编码基因更绕,不能套同一解释模板。
图 敲低证据楼梯
工程实践:转染参数与读数
细胞汇合度、血清、试剂批号强烈影响转染。按细胞类型滴定,不要用肿瘤细胞的条件打原代神经元。无血清短时转染后换回完全培养基是常见操作,以说明书和活力为准。荧光标记 siRNA 只证明进了细胞,不证明 RISC 在干活。
脱靶预测软件可以排除明显糟糕的序列,不能证明剩下的序列无辜。池化多条低浓度有时降低单条脱靶,有时增加复杂性。我更倾向两条验证过的单条,而不是一池匿名混合物当唯一证据。
miRNA 实验用抑制器或 mimic,必须记住多靶。报告基因 3 端非翻译区实验可以支持直接靶向,但仍要内源结合和生理浓度证据。把 mimic 上调十倍生理量做出的通路当药物机制,转化时会失望。
circRNA、piRNA、增强子 RNA 各有自己的生化定义和坑,共同原则不变:先证明分子存在、再扰动、再补回、再分顺式反式。非编码领域假表型密度高,楼梯要爬完。
问题:蛋白没降是不是 siRNA 失败?
先看 mRNA。mRNA 降而蛋白不降,可能半衰期长,延长观察。mRNA 也不降,才是转染或序列失败。有的基因反馈补偿转录,mRNA 看起来降得少。结合基因和抗体质量一起看。
问题:能不能用 siRNA 当基因治疗想象?
体内递送、免疫、持续时间、脱靶是完全另一场工程。细胞实验敲低成功,不构成治疗方案。第 6 章会碰医学落地,这里只把细胞工具用对。
化学修饰的 siRNA 降低免疫原性、提高稳定,但仍可能走内体进不去 RISC。标记荧光很亮不等于沉默成功。功能读数和分子读数要成对。池化 siRNA 在高通量筛选里常见,入围后必须拆成单条验证,否则永远不知道是哪条在干活、是不是脱靶。筛的终点是候选,不是机制论文的图一。
体内 RNA 药物还有递送器官偏好、补体激活、血小板减少等完全不在细胞培养里出现的问题。细胞敲低成功只证明靶在这个细胞里可能有功能。写转化段落时把这句话写上。lncRNA 的 CRISPR 删除可能同时删掉重叠的增强子 DNA,RNA 补回救不回表型,那是顺式 DNA 元件的证据。实验设计要预先想好如何区分,否则三年后仍在吵。
piRNA 主要在生殖系沉默转座子,实验体系特殊,不要用体细胞 siRNA 的直觉去套。circRNA 要证明是环、不是基因组线性污染,用向外引物和 RNase R 等。非编码领域的第一纪律仍是:先证明分子身份,再扰动,再补回。身份没证明时,所有表型都可能是别的分子的。
转染后细胞形态要拍照存档,毒性表型不要等到分子读数才发现。汇合度低时毒性放大,高时转染下降,预实验找窗口。血清批次影响脂质体,锁批次。脱靶预测列表里的基因若正好在你的通路上,换 sg 一样换 si 序列,不要假装没看见。补回用的 cDNA 去掉 3 端非翻译区,避免再被同一 siRNA 打。这一点写进构建说明。时间曲线至少三个点。只选“看起来最好”的一个点投稿,会被问到其他点。lncRNA 实验预注册扰动策略:敲低、敲除座位、RNA 补回,三选的逻辑事先写,避免做完再解释为何只做了最方便的那一种。
转染试剂对照和乱序对照都要,缺一则无法分毒性与脱靶。乱序序列也要过一遍预测,避免偶然打中家族基因。蛋白半衰期长的目标,信使下降了三天蛋白才动,提前收样等于没做。先查半衰期或自己做时间曲线。补回时表达量用印迹对内源,过强的补回会有增益功能假象。长非编码RNA的核质定位决定你该敲核还是敲质,定位实验先做。核里的分子用细胞质工具常常无效,不是基因没有功能。工具要送到分子所在的房间。
乱序对照也要跑脱靶预测,偶然打中家族成员时必须换序列。补回构建去掉被打的非翻译区,否则补回质粒会被同一条小RNA继续打。这两条写成构建规范,能减少一半假阴性挽救。蛋白半衰期决定收样窗口,提前看蛋白等于没敲。核定位的长非编码要用能进核的工具,细胞质试剂无效不等于没有功能。
楼梯没爬到补回,机制句子缩短。核质定位先于工具选择。乱序对照跑预测。收样窗口对着半衰期。细胞成功不构成体内递送方案。工具换了,假表型换形状,对照不停。池化筛的终点是候选。环状RNA先证明是环。长非编码要分顺式反式,座位效应会冒充RNA功能。
补回之前不写机制。定位之前不选工具。预测之前不信乱序。半衰期之前不定收样。体内之前不写治疗。对照不因换工具而退休。池化只出候选。环状先证环。长非编码先分座位与分子。楼梯是这一节的法律,不是审美。
楼梯法律再执行一遍:双序列、蛋白读数、试剂对照、补回、定位、半衰期窗口。六级没爬完,机制句缩短到现象。池化出候选。环先证环。座位效应先于分子功能。体内递送是另一场工程。对照不退休。
把沉默当成可逆的存量手术,不是基因删除。回潮、稀释、免疫、脱靶,都是手术并发症。并发症写进知情,表型才站得住。正交工具再现同一表型,楼梯才算到顶。到顶之前,通路图保持草稿状态。
草稿状态的通路图可以讨论,不可以当标题。标题留给爬完楼梯的那一层手术。
至少两条独立序列加乱序对照。一条小干扰核糖核酸的表型可以是种子区脱靶。拯救实验能把靶点钉住:抗干扰的沉默突变互补核酸应能把表型救回来。转染试剂本身会触发应激,必须带试剂对照,不要把细胞变圆写成基因功能。
重点提炼
- siRNA 改 RNA 存量,不改 DNA:可逆,也因此会回潮。
- 对照楼梯:双序列、蛋白读数、试剂对照、补回。
- 脱靶是默认风险:浓度越低越好,仍不能替代对照。
- miRNA 几乎必然多靶:解释必须克制。
- lncRNA 要分顺式反式:座位效应会冒充 RNA 功能。
- 时间曲线对蛋白半衰期:太早看等于没做。
- 工具换成 CRISPR,假表型换形状:对照不停。
下一章把开关拧完之后的全局场面读出来:建库、测序、质谱和那些看起来很美的图。