3.1 神经电生理基础
3.1 神经电生理基础
本节摘要:神经元的电活动是一切神经通信的物理基础。静息电位由离子浓度梯度和膜通透性共同维持,动作电位则是电压门控钠钾通道协同打开的结果——去极化、超射、复极化、超极化、恢复,五个时相构成了信号沿轴突高速传导的基础。本节从物理原理出发,逐步构建对动作电位产生与传播机制的完整理解。
学习目标
阅读完本节,你应当能够:
- 解释静息电位产生的物理基础(浓度梯度与电化学驱动力)
- 逐步描述动作电位五个时相对应的离子通道活动
- 区分被动传导(电紧张电位)与主动传导(动作电位)的速度差异
- 理解髓鞘跳跃传导提高信号速度的机制
一个被忽视的事实:神经元本质上是个电池
神经系统的信息传递不需要任何"液体流动"或"物质搬运"。它依赖的是带电粒子(离子)在浓度梯度驱动力下穿越半透膜时产生的电位变化。要理解这一点,需要先回到最基本的物理概念。
静息电位:不动的平衡
在静息状态下,典型神经元的膜电位约为-70mV(膜内相对膜外为负)。这个电位差的存在,源于两个因素:
- 浓度梯度:细胞内外离子分布极不均匀。细胞外的钠离子浓度约为细胞内的10倍,钾离子则反过来。这种不平衡是钠钾泵(每消耗一个ATP,将3个钠泵出、2个钾泵入)持续工作的结果。
- 膜通透性差异:静息状态下,膜对钾离子的通透性远高于对钠离子。钾离子顺浓度梯度外流时,携带正电荷离开细胞,使膜内逐渐变得更负。当钾离子外流的浓度驱动力与膜内负电荷对钾的"拉力"达到平衡时,膜电位稳定在钾离子的平衡电位附近(约-90mV)。由于膜对钠并非完全不透,加上钠钾泵的微弱贡献,实际静息电位约为-70mV。
这个-70mV的电位差就像一个充好电的电容,随时准备在合适的时机释放能量——触发动作电位。
动作电位:离子通道的协奏曲
阈值与"全或无"特性
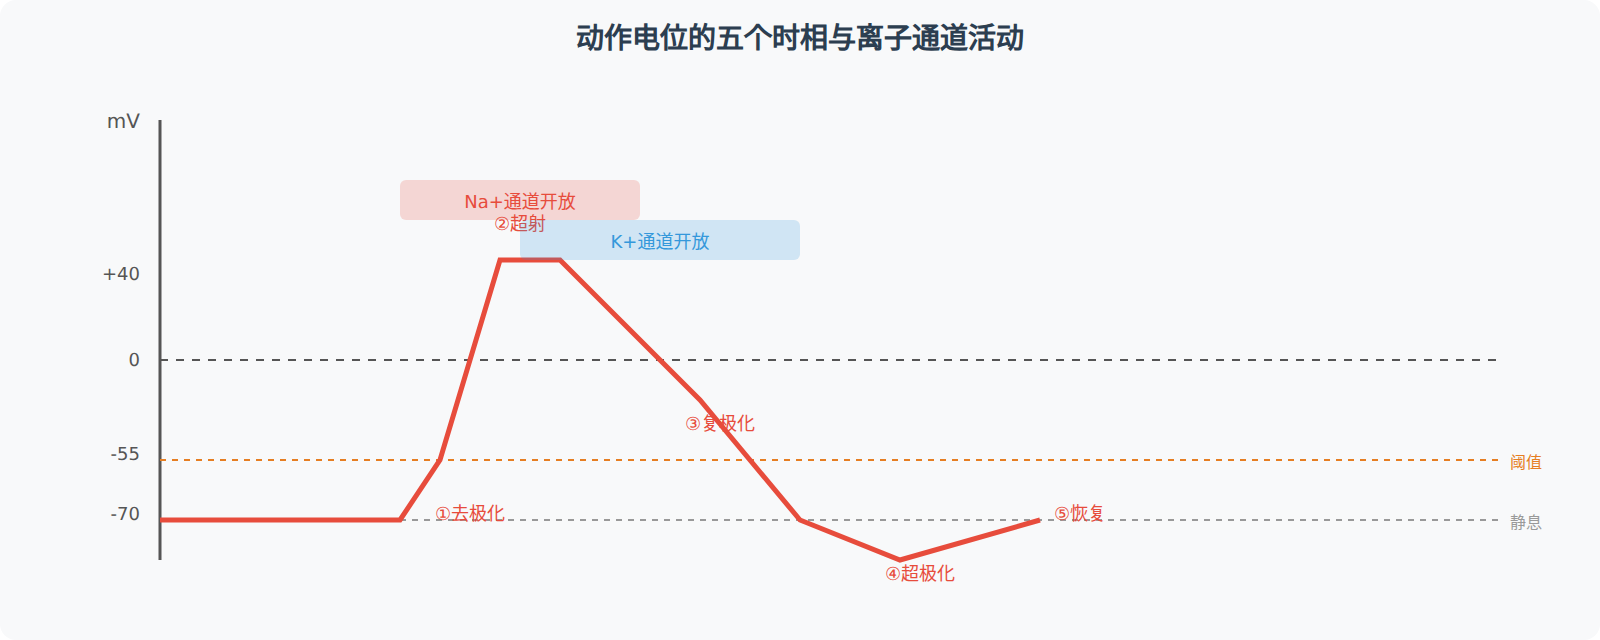
当一个神经元接收到兴奋性突触输入,突触后膜局部去极化。如果这个去极化足够强、使膜电位达到约-55mV的阈值,电压门控钠通道就会被激活——动作电位随之产生。如果去极化不够,达不到阈值,就不会产生动作电位。这就是"全或无"(all-or-none)特性:动作电位一旦触发,就以固定幅度和波形完整执行,不会因为更强的刺激而变得更大。
五个时相的详细过程
去极化上升相:当膜电位达到阈值,电压门控钠通道的激活门迅速打开,钠离子顺浓度梯度大量涌入细胞内。这进一步去极化膜电位,又打开更多的钠通道——一个正反馈循环。膜电位在不到1毫秒内从-55mV飙升到约+40mV(超过了零电位,这就是"超射")。
快速复极化:膜电位达到峰值后,钠通道的失活门关闭(失活),通道不再导通。同时,电压门控钾通道缓慢打开,钾离子顺浓度梯度大量外流,将膜电位迅速拉回负值方向。
超极化:钾通道的关闭速度比钠通道慢,导致膜电位暂时超过静息水平(更负,如-80mV),形成短暂的超极化期。
恢复期:钠钾泵和离子扩散逐渐将离子浓度恢复到静息状态。这个恢复过程不需要额外能量(因为离子移动总量很小),但持续高频放电时,钠钾泵需要加班工作来维持梯度。
不应期:动作电位之后,有一段钠通道处于失活状态、无法被重新激活的时期,分为绝对不应期(任何刺激都不能再引发动作电位)和相对不应期(需要更强的刺激才能引发)。不应期决定了神经元的最大放电频率——通常在每秒数百到上千次。
动作电位的传导
无髓鞘轴突:缓慢的电紧张传导
在无髓鞘的轴突上,动作电位通过局部电流回路传导。动作电位发生区域的膜内正电荷通过轴浆流向相邻静息区域,在静息区的外侧形成外向电流,使该区域去极化——如果达到阈值,就触发新的动作电位。这个过程像多米诺骨牌一样沿轴突推进,但速度有限(约0.5-2 m/s),因为每个新位点的去极化都需要等待局部电流充电整个膜电容。
有髓鞘轴突:跳跃传导
髓鞘的出现彻底改变了游戏规则。髓鞘包裹的轴突段,膜电容被大幅降低、膜电阻被大幅提高,局部电流无法穿透髓鞘——电流只能沿轴浆内部流动到下一个未包裹的郎飞结。在那里,轴突膜暴露在细胞外液中,动作电位被重新触发。信号就像青蛙在荷叶间跳跃一样,从一个郎飞结跳到下一个郎飞结,速度可高达120 m/s。
跳跃传导的效率极高:有髓鞘纤维的传导速度大约是同等直径无髓鞘纤维的5-7倍,而能量消耗仅为其一小部分(因为只有郎飞结处需要离子通道活动来恢复离子梯度)。
💡 关键直觉:髓鞘之于轴突,就像同轴电缆之于电信号——绝缘层减少信号衰减和能量损失,允许高速远距离传输。这是脊椎动物神经系统相对于无脊椎动物的巨大工程优势。
重点提炼
- 静息电位源于离子浓度差与膜通透性:钠钾泵维持梯度,钾漏通道主导静息电位
- 动作电位的五个时相:去极化(钠涌入)→ 超射(膜内变正)→ 复极化(钾外流)→ 超极化(钾通道延迟关闭)→ 恢复(泵回平衡)
- 全或无特性:动作电位幅度恒定,信息编码在频率而非幅度中
- 不应期限制最大放电频率:绝对不应期确保信号单向传导
- 跳跃传导是脊椎动物的演化优势:髓鞘将传导速度提升5-100倍,大幅降低能量消耗
下一节我们将看动作电位到达突触后,如何转化为化学信号传递给下一个神经元。
深入理解:动作电位的离子电流分析
要定量理解动作电位,需要借助Hodgkin-Huxley方程。该模型用一组微分方程描述膜电流(钠电流、钾电流、漏电流和电容电流)与膜电位之间的动态关系。每种离子电流的大小取决于驱动该离子的电化学驱动力(膜电位与平衡电位之差)和通道的电导(随时间和膜电位变化的函数)。
这个模型预测了几个重要的实验事实:钠电导的快速激活和失活决定了动作电位的快速上升和短暂持续;钾电导的延迟激活和缓慢失活决定了复极化的时间过程;钾电导的激活速度略慢于钠电导的失活速度,确保了动作电位的正确复极化而不是在去极化状态停留。如果钾电导激活过快,动作电位会变得太小甚至无法触发;如果钾电导激活过慢,动作电位会异常延长。
临床视角:膜片钳在药物筛选中的应用
现代药物开发广泛使用自动膜片钳系统进行离子通道药物的高通量筛选。例如,开发新型抗癫痫药物时,需要在数千种化合物中筛选出能选择性调节特定亚型钠通道的分子。自动膜片钳系统可以在一天内测试数百个化合物,为后续的优化提供起点。这种基于电生理功能的筛选比传统的化学筛选更直接——因为筛选的是功能性效应,而非单纯的分子结合。