3.2 突触传递与神经回路
3.2 突触传递与神经回路
本节摘要:当动作电位到达轴突末梢,电信号被转化为化学信号——钙离子内流触发突触囊泡与突触前膜融合,释放神经递质到突触间隙。递质与突触后受体结合后产生兴奋性或抑制性突触后电位,经过空间和时间整合决定下一个神经元是否放电。突触强度的可调节性(LTP和LTD)是学习与记忆的细胞基础。
学习目标
阅读完本节,你应当能够:
- 描述从钙内流到囊泡融合释放递质的完整过程
- 解释EPSP和IPSP的离子机制和整合方式
- 阐述NMDA受体在LTP诱导中的关键角色
- 区分突触前可塑性和突触后可塑性的机制
从电到化学:突触传递的分子机制
钙离子:触发递质释放的扳机
动作电位到达轴突末梢后,膜的去极化打开电压门控钙通道(P/Q型和N型)。钙离子沿浓度梯度涌入突触前末梢——静息时胞内钙浓度仅约100nM,而胞外约2mM,浓度差高达两万倍。这个巨大的浓度差意味着即使少量钙通道开放,就能引起胞内局部钙浓度急剧升高。
升高的钙离子与突触前活性区(active zone)的突触结合蛋白(synaptotagmin)结合,触发突触囊泡与突触前膜的融合——这个过程称为"胞吐"(exocytosis)。囊泡中装载的神经递质被释放到约20纳米宽的突触间隙中,扩散到突触后膜。
这个过程的效率惊人:从钙离子进入突触前末梢到递质释放,只需要不到0.1毫秒。这种速度是突触传递能实现毫秒级信息交换的基础。
神经递质的主要类型
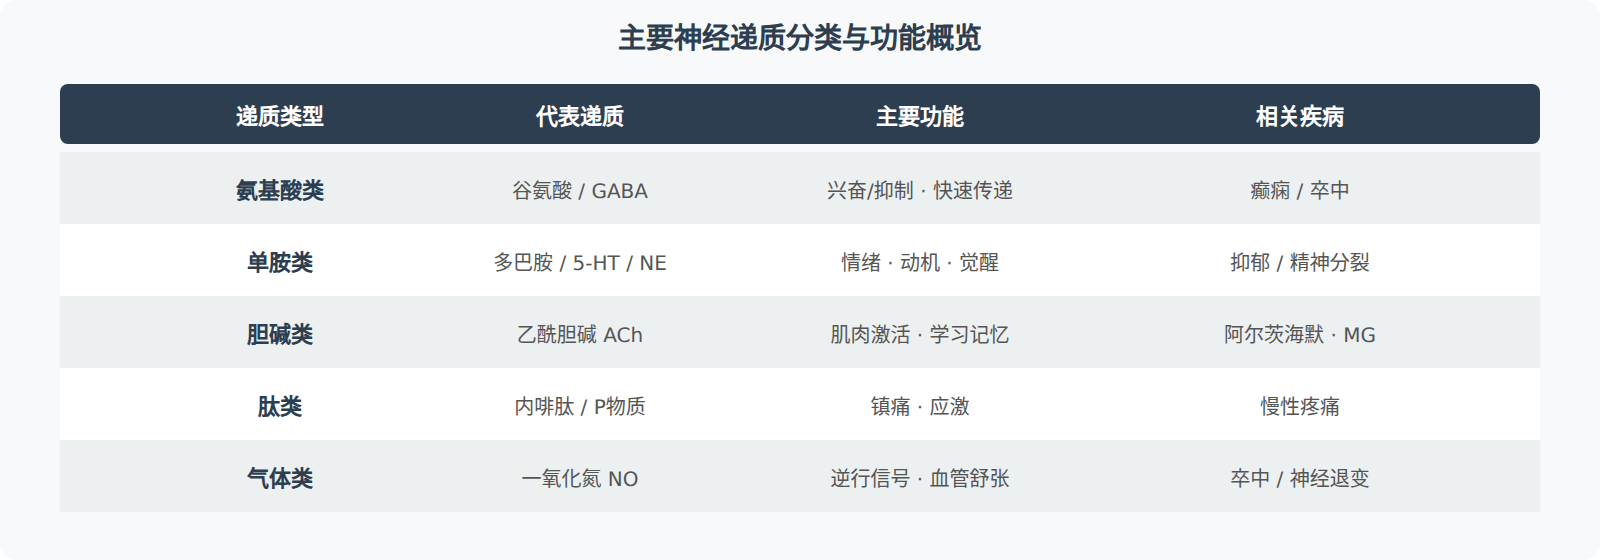
神经递质按化学结构可以分为几大类:
- 乙酰胆碱:最早被确认的神经递质,在神经肌肉接头(NMJ)和自主神经节中使用。阿尔茨海默病的核心病理之一是基底前脑乙酰胆碱能神经元的退变。
- 氨基酸类递质:谷氨酸是中枢神经系统中最主要的兴奋性递质,约80%的突触使用谷氨酸;GABA是主要的抑制性递质,约一半的突触使用GABA。甘氨酸在脊髓和脑干中作为抑制性递质。
- 单胺类递质:多巴胺、去甲肾上腺素(NE)、5-羟色胺(5-HT)、组胺。它们通常来自脑干和下丘脑的少数核团,但投射广泛,参与情绪、动机、觉醒、奖赏等多种功能。多数精神类药物的作用靶点就是单胺系统。
- 肽类递质:内啡肽、P物质等。它们的作用通常较慢(秒到分钟级),参与疼痛调节、应激反应等。
突触后整合:投票机制
EPSP和IPSP
当谷氨酸与AMPA受体结合后,通道打开允许钠离子流入,突触后膜局部去极化——这就是兴奋性突触后电位(EPSP)。EPSP是分级电位:它的幅度与释放的递质量成正比,不像动作电位那样"全或无"。一个典型的EPSP幅度约0.1-1mV。
当GABA与GABA_A受体结合后,氯离子通道打开,氯离子流入使膜电位超极化(或稳定在接近静息电位的水平)——这就是抑制性突触后电位(IPSP)。
空间与时间整合
一个神经元通常同时接收到大量EPSP和IPSP。它在轴突起始段对这些输入进行整合:所有突触电位在起始段的空间中叠加(空间整合),在同一突触上连续的时间点上也叠加(时间整合)。如果叠加后的净去极化达到阈值,就触发动作电位。
这本质上是一个"投票"过程:兴奋性输入投赞成票,抑制性输入投反对票。只有赞成票超过阈值,动作电位才会产生。这种设计使得神经网络的信息处理具有极大的灵活性——同一个神经元在不同输入模式下可以产生截然不同的输出。
突触可塑性:学习记忆的分子基础
Hebbian可塑性
1949年,Donald Hebb提出了一个后来被大量实验验证的假说:如果两个神经元同时放电,它们之间的突触连接就会增强。这就是Hebbian可塑性的核心——"一起放电的神经元连接在一起"。
NMDA受体与LTP
长时程增强(LTP)是研究最深入的突触可塑性形式,由NMDA受体介导。NMDA受体有两个独特性质:它需要同时结合谷氨酸和膜去极化才能打开(因为它的通道在静息电位时被镁离子堵塞,只有去极化才能将镁离子赶走);打开后允许钙离子(而非钠离子)通过。
当突触前释放大量谷氨酸,同时突触后有足够的去极化(来自AMPA受体介导的EPSP),NMDA通道打开,钙离子进入突触后神经元。这些钙离子激活了钙调蛋白依赖的激酶(CaMKII),后者磷酸化AMPA受体,使更多AMPA受体被插入到突触后膜——突触对同样强度的输入产生更强的反应。这就是LTP。
LTD:遗忘的分子机制
长时程抑制(LTD)与LTP方向相反:当突触前释放少量谷氨酸或突触后仅有轻度去极化时,少量钙通过NMDA受体进入,激活蛋白磷酸酶而非激酶,导致AMPA受体从突触后膜内吞——突触连接减弱。
LTP和LTD共同作用,使得突触连接可以根据经验动态调整强度。这在学习、记忆形成以及发育过程中的回路精细化中都扮演着核心角色。
⚠️ 常见误区:认为LTP等同于记忆。LTP是记忆的候选细胞机制之一,但记忆的形成涉及多个层面的变化(包括基因表达、新突触形成、甚至新神经元生成)。LTP是必要条件,不是充分条件。
神经回路:从单突触到网络
多个神经元通过突触连接组成回路(circuit)。最简单的回路是单突触反射弧(如膝跳反射,感觉神经元直接连接运动神经元),最复杂的回路涉及成千上万个神经元的反馈环路。
前馈回路中,信息沿一条路径从输入到输出,中间经过多层处理。视觉通路从视网膜到初级视觉皮层再到高级视觉区,就是一个典型的前馈处理层级。
反馈回路中,输出信号被回送到前级处理单元,形成闭环。大脑皮层与丘脑之间的交互就是密集的反馈回路——皮层不仅接收丘脑的输入,还不断向丘脑发送反馈信号,调节它所接收和传递的信息。
💡 关键直觉:神经系统不是简单的输入-处理-输出管道,而是一个充满回路和反馈的动态网络。正是这些回路和反馈赋予了神经系统处理复杂模式、产生节律、维持状态稳定性等能力。
本章回顾
- 突触传递的核心触发器是钙:钙内流触发囊泡融合,递质释放到突触间隙
- 递质分兴奋和抑制两大阵营:谷氨酸主兴奋、GABA主抑制,少数递质(如多巴胺)作用更复杂
- 突触后整合是"投票"机制:EPSP和IPSP在空间和时间上叠加,净效应决定是否放电
- LTP和LTD是突触强度的双向调节:NMDA受体-钙-CaMKII/磷酸酶通路是实现突触可塑性的核心分子机制
- 神经回路中的反馈赋予系统灵活性:前馈处理层级和反馈调节环路共同构成了复杂信息处理的基础
下一章我们将看感觉系统如何将物理世界的刺激转化为神经信号。
深入理解:突触后电位的时间总和
单个EPSP通常只有0.1-1mV的幅度,远不足以将膜电位从-70mV推动到-55mV的阈值。那么单个EPSP如何引发动作电位?答案是时间总和:当多个EPSP在短时间内(约10-20ms窗口内)连续到达时,它们在膜电位上叠加,可能达到阈值。
这个机制使突触前末梢的放电频率成为信息编码的关键变量。高频放电的突触前神经元产生的EPSP更容易在突触后神经元中达到阈值——频率编码了突触前信号的"重要性"。这也是为什么多巴胺的短时程增强(连续刺激使释放量增加)在行为中如此重要:它放大了重要信号的影响。
计算视角:单神经元作为分类器
从计算的角度看,一个接收数百个突触输入的神经元本质上是一个线性分类器——它通过对所有输入进行加权求和(权重就是突触强度),然后通过一个非线性阈值函数(动作电位的全或无特性)做出二元决策(放电或不放电)。学习过程(LTP/LTD)就是调整这些权重,使分类器能正确地区分不同的输入模式。这个简单的计算模型在机器学习中就是感知器(perceptron),而多层神经网络则类比于多突触回路的级联计算。