1.1 定义、研究范畴与核心问题
1.1 定义、研究范畴与核心问题
本节摘要:发育生物学是研究一个单细胞(受精卵)如何通过细胞增殖、分化、迁移和组织建模,被编排成结构正确、功能完整的多细胞个体的学科。要审阅任何发育事件,先套一个三问框架:谁来决定、在什么时间窗、在哪个空间位置决定。本节把它拆开讲,并给出发育生物学的四条学科边界。
学习目标
阅读完本节,你应当能够:
- 写出发育生物学的操作性定义,并指出它研究"什么"、不研究"什么"。
- 用"谁—何时—何地"框架给任意一个发育事件做一句审题。
- 列出发育生物学的几类核心问题并各举一个例子。
- 说明发育生物学与细胞生物学、遗传学、生理学的分工界限。
先回答:什么叫"研究一件事"
我第一次给学生讲发育生物学,往往第一句就把人劝退——因为它看起来什么都要管。它研究受精,也研究衰老;既讲果蝇翅膀上的花纹,也讲人类先天性心脏病。范围太宽反而让人抓不住。后来我想明白一个窍门:把这个学科压缩成一个可以被重复执行的审题问题,问题立住了,范围也就立住了。
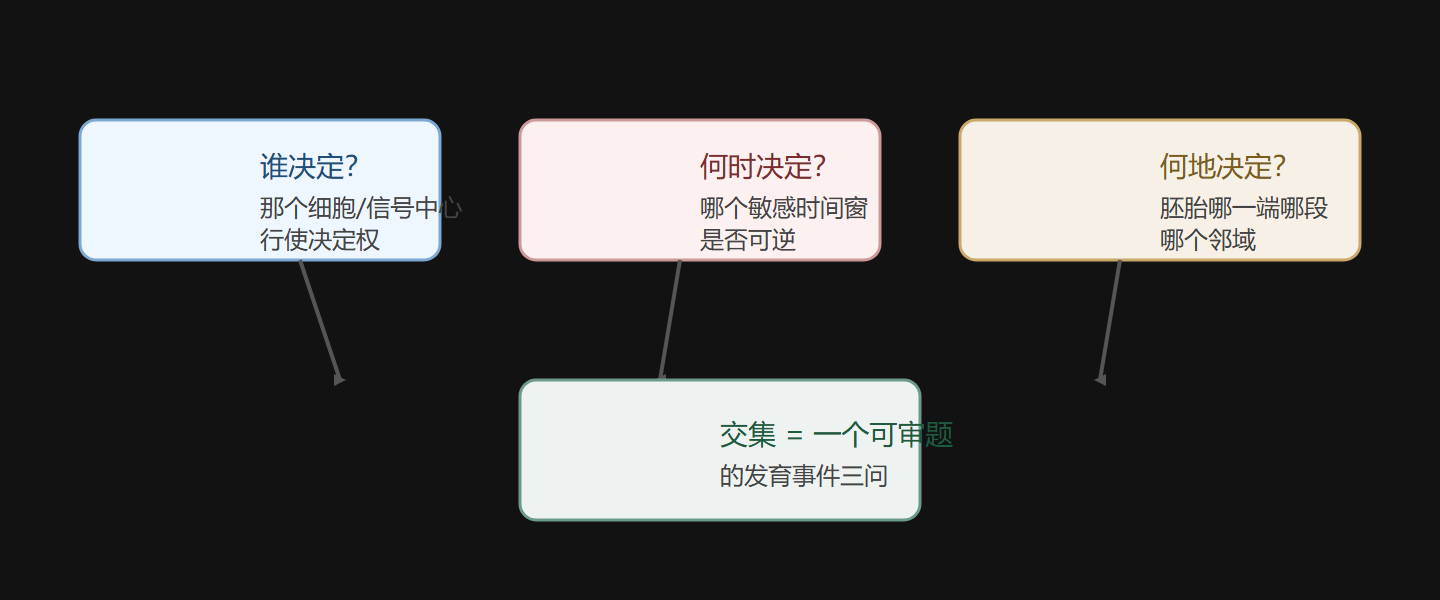
这个审题问题我称作"三问框架"。任何一个发育事件,不管多复杂,都能被压缩成下面三个问题的交集:
- 谁来决定?——是哪个细胞、哪个细胞群,或哪个信号中心在行使决定权。
- 在哪个时间窗决定?——这个决定发生在受精后第几天,持续多久,且是否可逆。
- 在哪个空间位置决定?——发生在胚胎的哪一端、哪个条带、哪个邻域。
拿原肠胚期的一个经典事件举例:蜗牛样内卷让后来形成中胚层的细胞进入胚胎内部,那它套三问框架就是——"外胚层的一部分(谁)在原肠胚特定的几小时内(何时)沿着腹侧边缘(何地)内卷为预定中胚层"。三问没说全,这个事件的"研究"就是残缺的。
可执行的数值直觉:命运潜力如何被逐级锁定
发育生物学的核心问题之一,是"一个细胞最后为什么是这个而不是那个"。这背后藏着一个比直觉更精确的图景:细胞能变成的类型不是一次跳到终点的,而是像一道不断收窄的闸门,每一步都砍掉一截可能性。
我用一个很小的 Python 模型模拟这种"逐级收敛"到底有多快。假设一个细胞有 K 个独立的二元开关,每个开关代表一次命运抉择,那么它能走向的末端命运种类就是 2 的 K 次方。真实身体约有数百种细胞类型,这意味着只要十几层抉择,就能把无穷多可能性压缩到有限个终点。
# 命运潜力逐级收敛:N层抉择后剩多少种末端命运 def fate_options(levels, branch=2): opts = 1 history = [] for L in range(1, levels + 1): opts *= branch # 每层把每个选项再分叉成branch个 history.append((L, opts)) return history for L, opts in fate_options(levels=12): print(f"第 {L:2d} 层抉择完毕 → 最多 {opts:6d} 种候选命运")
跑出来你会发现:只到第 10 层,候选命运数已经超过一千;到第 12 层就超过四千。而人体也不过几百种细胞类型。这给出一个反直觉但重要的结论:命运不是被"穷举"出来的,绝大多数潜在路径在早期就被提前剪掉了。这让我更倾向把发育理解成"裁剪"而非"选择"——多数可能性是被排除掉的。这个直觉在后面的细胞命运决定章节会反复用到。
发育生物学问的四类核心问题
把学科的核心问题归拢,其实就四类,每一类都对应一个能落地的实验:
- 细胞如何获得身份:一个囊胚里的内细胞团细胞,凭什么将来一部分变成神经、一部分变成肝?对应的是命运决定与分化的机制。(对应第 3 章)
- 空间蓝图如何落定:前后轴、背腹轴、左右轴是怎么被极性信号写在胚胎上的?代谢率、组织者、梯度在这里负责。这是"模式形成"的经典主线。(对应第 2 章轴模式与第 3 章信号梯度)
- 形态如何被塑造:细胞知道了自己姓什么之后,怎么在正确位置聚齐、翻卷、发芽,最终做出空心管或分层叶的真三维结构?这是"形态发生"的问题。(对应第 4 章各系统)
- 尺度如何被控制:为什么人是一种体型,小鼠是另一种?器官怎么知道该长到多大就停?(在进化发育与器官生长中散见)
这四个问题彼此独立又互相咬合:没有身份就没有蓝图可落,没有蓝图就谈不上下一步塑形。它们合起来才是"一个受精卵为什么能变成有组织的个体"。
💡 关键直觉:把"发育"当成一段可被拆成装工序的流水线,比当成一个不可分的神秘过程,更能接近实验事实。这不是偷懒的类比,胚层的产生与器官的组合确实在时间上先后解耦、相互依赖。
学科边界的四条线
要真正"定义"一门学科,光讲它研究什么还不够,还得讲它不研究什么。我给出四条习惯上的界线:
- 与细胞生物学的界线:细胞生物学研究单个细胞本身的行为(骨架、细胞器、内稳态);发育生物学研究细胞之间如何协同组织成多细胞结构。方向不同,工具重叠。
- 与遗传学的界线:遗传学关心基因如何传递与致变;发育生物学把基因当执行图纸,追问它在胚胎中怎么被解读。
- 与生理学的界线:生理学面向成年机体的功能调节;发育生物学面向结构如何被建成。两者在"稳态如何从无到有"交界。
- 与演化生物学的界线:演化关心跨代的变化;发育关心单代内的成型。演化发育生物学 (Evo-Devo) 正是这两把时间尺度的交界(见第 7 章)。
⚠️ 常见坑:别把"发育"等同于"生长"。生长只是细胞数目的增加,发育是数目、身份与空间编排三者的合谋。一个肿瘤也在疯狂生长,但没人会说它在"发育"。
本节小结
- 三问框架:谁决定、何时决定、何地决定,是审读一切发育事件的万能模板。
- 命运收敛:细胞命运是逐级裁剪而非穷举,二元开关的层数一到十就足够覆盖身体全部细胞类型。
- 四类核心问题:身份、蓝图、形态、尺度,彼此咬合成一个完整学科。
- 四条边界:与细胞生物、遗传、生理、演化的分工,让"定义"变得不是一句空话。
过去教科书喜欢用"研究生长发育机制"一句话带走,但你要真立住这门学科,得能说清它怎么问问题。下一节我们把这些"问题"需要的具体概念端上桌——那是执行蓝图时真正会被调用的词汇。
图 1-1 三问框架:谁-何时-何地筛选一个发育事件