1.2 发育生物学的基本原则与概念
1.2 发育生物学的基本原则与概念
本节摘要:发育生物学的力量来自几条不多但够用的原则:细胞命运的指定—决定—分化三级阶梯、以及模式形成的形态发生素梯度如何敲出空间分工。本节把这两组易混概念拆清楚,再用斯佩曼组织者和法国国旗模型两个经典实验把它们钉牢,并写一个小 Python 模型复现梯度如何标尺。
学习目标
阅读完本节,你应当能够:
- 区分"指定"与"决定"两种细胞命运状态,并各给一个判断实验。
- 解释形态发生素的浓度梯度如何把一维距离翻译成不同的细胞响应。
- 复述斯佩曼组织者的移植实验及其核心结论。
- 用"梯度的线性刻度"直觉判断一个梯度在什么长度上会失效。
核心名词先清场:两对最常被混用的词
发育生物学的门槛往往不是概念难,而是它总把意思相近的词叠着用。最让我头大的两组,打开教科书多半找不到一句人话讲清,这里我用两种判据把它们分开。
**第一对:细胞命运决定 (determination) 与分化 (differentiation)。**决定是"身份已锁定,但还没动手做它的活";分化是"已经开始做出它该做的活"(表达特征基因、长成特征形态)。判断做不做得到其实很简单:把细胞从它原来待的位置拿到别处培养,如果它仍然按原计划分化,说明已经决定;如果它随新环境改行,说明还只停留在"指定"阶段——一条更早的状态。
**第二对:模式形成 (pattern formation) 与形态发生 (morphogenesis)。**模式形成解决"各处细胞该刻成什么名字"(一道空间分工的信息问题);形态发生解决"知道了名字后身体形状怎么被做出来"(一道物理力学问题)。前者是图纸,后者是施工。
梯度如何当好一把尺子:法国国旗模型的来龙去脉
这两组概念里,最值得你花十分钟理解的是"形态发生素梯度"为什么能被称为发育的标尺。刘易斯·沃尔珀特在 1969 年用一个被后人叫成"法国国旗"的思想实验把它讲清:假设一个信号分子从胚胎一端释放、向另一端扩散,形成从高到低的浓度分布,那么不同浓度的细胞就"看到"不同读数,从而可以自发地区分出三种响应区——就像把一面蓝白红旗的面分成三色条带。
见下图,这是本意图的示意,浓度从左到右衰减,细胞按浓度阈值被分成三段命运。
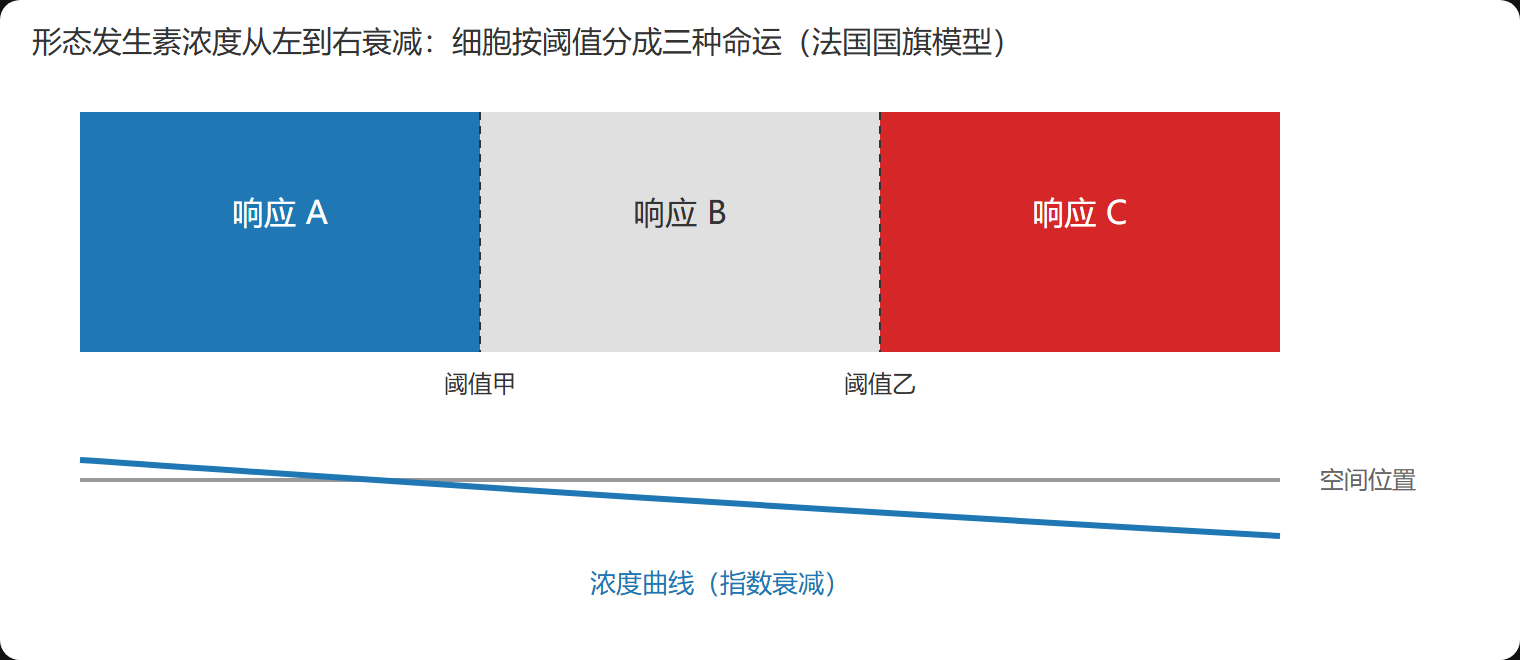
只要细胞能对浓度设两个不同的开关阈值,它们就会自发排出一条分三段的条带——不需要任何一个细胞知道全局是什么样子。这正是模式的魔力:信息是局部的,秩序是全局的。
我用 Python 把扩散后的稳态浓度场算出来,演示浓度如何在指定距离内从高落到阈值之下:
import numpy as np L = 100.0 # 组织的特征长度(相对单位) lam = 20.0 # 衰减长度,越小梯度越陡 C0 = 100.0 # 源端浓度 x = np.linspace(0, L, 200) C = C0 * np.exp(-x / lam) # 指数衰减的稳态近似 ta, tb = 40.0, 12.0 # 两个响应阈值 na = np.flatnonzero(C >= ta).size nb = np.flatnonzero((C >= tb) & (C < ta)).size nc = np.flatnonzero(C < tb).size print(f"响应A区点数: {na}, 响应B区: {nb}, 响应C区: {nc}")
关键在衰减长度 lambda 和组织的长度 L 的比例:如果组织太大、衰减太短,梯度在中途就掉到噪声之下,后面一大片细胞读不出信号,法国国旗画不出来。这解释了为什么靠扩散梯度定长的结构总是有一定尺度上限——也解释了为什么大胚胎常常需要额外的信号接力或周期性机制(后面第 2 章体节、第 4 章肢芽都会用到这个直觉)。
⚠️ 常见坑:把"意思相近"误会成"等价"。梯度能不能当尺子,取决于受体对浓度变化的敏感性与组织尺度,不是所有分子都适合当形态发生素——很多信号其实只在很近的邻居间短程传递,根本攒不成一个全局梯度。
一个真实案例:斯佩曼组织者的移植实验
梯度模型听起来像纸上谈兵,但"某处细胞确实有组织全局的力量"这件事在 1924 年就被实验证实。汉斯·斯佩曼和希尔德·曼戈尔德做了一台著名的移植:从一只早期原肠胚的背唇处取一小块细胞,把它搬到另一只胚胎原来会发育成腹侧(未来的皮肤一侧)的位置。
结果出人意料:被移植的背唇不仅自己没有改行,反而指挥周围本该长皮肤的同种体细胞,围着自己重新组织成一套几乎完整的次级胚胎主轴——宿主被沿着背腹轴重新画了蓝图。这块背唇后来被叫作"组织者"。
这个实验的价值不是它神奇,而是它把"某个区域拥有全局指挥权"这种话,从比喻变成了可重复的因果事实:把组织者搬走,局部细胞就缺少了来自它的定向信号;把它搬来,局部细胞就被重新定向。结合前面梯度的直觉,你就会明白组织者的真实作用很可能是作为梯度的源头——它源源不断地释放形态发生素,让周围的细胞各自按浓度读数决定自己的身份。斯佩曼因此获得 1935 年诺贝尔生理学或医学奖。
这套原则在后续章节的样子
别把本节当孤零零的名词表。这些概念会像乐高件一样反复出现:
- 第 2 章的轴模式,就是组织者 + 梯度 + 体节时钟三者的联合演出。
- 第 3 章的细胞命运决定,就是"指定→决定→分化"在分子层面的落实。
- 第 4 章各器官成形,几乎处处都在用"梯度当尺子、胚层当原料"。
💡 关键直觉:发育的原则其实很少,难的是你愿意随时在一个具体现象里认出"这又是哪条老原则"。我建议你以后读发育文献时,先在心里问一句"这里用到了梯度还是集合行为还是时序振荡"——这比背精确定义更有用。
本节小结
- 指定 vs 决定:用"换个环境会不会改行"这条判据就能区分两者。
- 模式形成 vs 形态发生:一张是信息分工的图纸,一张是力学施工。
- 梯度当尺子:指数衰减 + 受体阈值 = 一维长度被翻成条带分工;尺度上限是它的软肋。
- 组织者实验:背唇移植证明了存在拥有全局指挥权的信号源区域。
下一节我们把时间轴拉长,看看这些原则是怎么被一代代实验陆续挖出来的——从组织者到遗传筛选,再到今天的活体成像。