2.2 卵裂与囊胚形成
2.2 卵裂与囊胚形成
本节摘要:卵裂是把一个巨大、不能直接发育的合子,切成一小撮一小撮既能分裂又能协调行动的小细胞。卵黄多少决定了卵裂走全裂、盘裂、还是表裂,而分裂产物从"相似小球"到下结论地分成滋养层与内细胞团,是第一件真正意义上的分家。本节用数值模拟还原"为什么细胞越切越小、间期越来越短",并用小鼠囊胚的内化与腔化做真实案例。
学习目标
阅读完本节,你应当能够:
- 解释卵黄量如何限制卵裂面、从而决定全裂/盘裂/表裂。
- 用"细胞—核质比"与"间期时长"解释卵裂前期为何又快又利落。
- 区分桑葚胚、囊胚、囊胚腔等几个早期结构。
- 说明小鼠首个命运分叉(滋养层 vs 内细胞团)的分子开关。
卵裂的本质:把"大房间"切成"小组间"
很多人把卵裂想成简单的"翻倍"。值得停下来看清楚:卵裂的第一大特色是没有生长——分裂只是把已有的细胞质切小,总体积几乎不变。所以随着分裂推进,细胞一代比一代小,细胞数却指数上涨。
第二大特色是间期极短、转录近乎静默。卵裂前期基本由母源 mRNA 供应的蛋白质驱动,几乎不给 DNA 转录长剧本的时间。要理解这有多激进,可以看这个 Python 模拟——它把每一轮的平分裂体积、细胞数、以及"细胞表面积体积比"算出来,你会发现几十轮之后细胞小到数量庞大、回路却还没真正开机:
import numpy as np V0 = 1.0 # 合子体积(归一化) n_cells = 1 gen = 0 while n_cells <= 8192: vol = V0 / n_cells # 假设球细胞,表面积体积比 ∝ 1/半径 ratio = n_cells ** (1/3) if gen % 4 == 0 or n_cells in (2, 8, 64, 512, 4096, 8192): print(f"第{gen:3d}次分裂后 {n_cells:6d} 细胞 单细胞体积 {vol:.3e} 表体比 {ratio:6.3f}") n_cells *= 2 gen += 1
这张表的核心信号是:细胞从合子的一整块,被切成几千个微米级小室,表面积与体积之比越长越高。高表体比意味着每个小室更容易与外界交换——这为后面快速、模块化的组织分工铺平了路,但也意味着任何"命令"都可以先在局部细胞之间短程传递而不必等全局扩散。这解释了为何卵裂后大量发育信号是短程、局部的。
卵黄决定切法:全裂、盘裂与表裂
卵裂怎么切,不是各物种随性而为,而是被卵内的卵黄含量与分布硬性约束的。这里有一张简易的分类心智图:
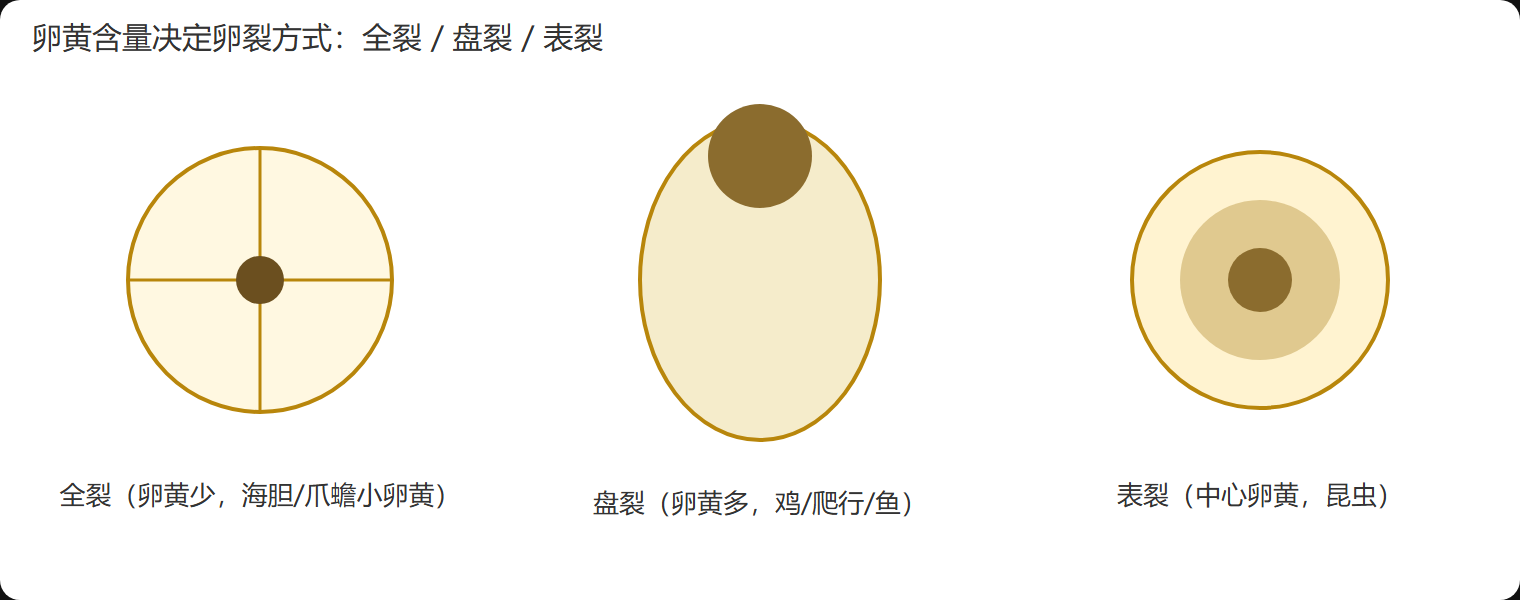
- 全裂(sea urchin、爪蟾、哺乳动物):卵黄少,卵裂面可以完整切过整个卵,几天内得到一打越来越小的细胞。
- 盘裂(鸡、蛙等大卵黄卵):卵裂只能在卵黄之上的小胚盘内进行,像在蛋黄上盖一层细胞。
- 表裂(昆虫等中心卵黄卵):早期分裂主要是核不断增殖、不立刻切出细胞膜,核以"合胞体"方式铺开,之后才在表面建成细胞层。
记住一句话:卵黄多到一定程度,就会把"均匀切"变成"只切盖/只切边"。这对理解后续原肠胚与胚层怎么排,至关重要——比如鸟类的胚层都是在胚盘那一点上铺设的。
从"一堆相似细胞"到"第一次分家":小鼠囊胚案例
卵裂进行一段时间后,细胞开始不只是相似了。哺乳动物的第一个大命运分叉发生在囊胚里:一部分细胞留在外层并很快变成滋养层(trophectoderm,后续胎盘方向),另一部分团在内部成为内细胞团(inner cell mass,后续成年个体的来源)。
这是当之无愧的"范式案例",因为它直观展示"位置 → 分子 → 身份"的链条:处于外层的细胞,因为接触外界、收到特定极性/位置信号,上调了能把自己锁进滋养层身份的转录因子;内层细胞则维持多能状态基因的表达。所以滋养层与内细胞团的差别,很大程度是"谁在外面、谁在里面"这种物理位置通过信号被翻译成的分子身份。这也呼应了第 1.2 节"位置分工"的主题——只是这次分工发生在只有几十个细胞的囊胚里。
⚠️ 常见坑:刻板套用"卵裂 = 等比分裂"。很多动物的早期分裂确实接近对称均裂,但爪蟾等卵的两极细胞大小并不均一,且胞质成分各异——不同细胞从一开始就分到了不同的母源命运因子,这为后续"极性 + 位置"的双重编码埋了伏笔。别把"均裂"字面当成"均质"。
💡 关键直觉:把卵裂想象成一本正在被装订成册的账——每一页(细胞)不断变薄,直到第一次分家(滋养层/内细胞团)把书分成"结构皮"和"内容芯"两块。这个"外层成皮、内层成芯"的规律会在神经管、肠管等处一再出现。
囊胚形成后的接棒
形成囊胚胚层(如哺乳动物的内细胞团嵌在滋养层壁内,或形成囊胚腔)之后,细胞有了初步的空间排布,接下来就要做真正的"翻折大动作"——原肠胚。这是第二章后一半的主线。那么原肠胚里三胚层怎么被推出来,请看下一节。
本节要点回顾
- 无生长的切分:卵裂纯切不涨,细胞变小、表体比升高,为局部信号铺路。
- 卵黄决定切法:全裂/盘裂/表裂是把"均匀切"退化为"切盖/切边"的物理约束。
- 间期极短:传导靠母源物资,转录静默,解释早期为何快而利落。
- 首次分家:小鼠滋养层 vs 内细胞团,是"外边成皮、内部成芯"的原型。
- 蓝图接棒:位置与分子合谋,开始决定谁走哪条路。
下一节我们将进入原肠胚——看内中胚层如何在一次翻折里从外胚层里出来,把三胚层的命运像分牛肉一样各归其位。