2.1 配子发生与受精
2.1 配子发生与受精
本节摘要:受精是整个发育的起点,但能成为"起点",全靠配子发生阶段已经把遗传信息既安全又高效地打包进两端完全不同的细胞——精子负责轻装上阵,卵母细胞负责携带全套家务设备。本节讲透减数分裂的三重意义、精卵的极端形态分工、以及受精激活胚胎的三步,并用一个 Python 模型说明母源物资如何决定了"什么时候合子的基因才真正当家"。
学习目标
阅读完本节,你应当能够:
- 说清减数分裂同时完成的三个任务:减半、重组、储备。
- 解释精子与卵母细胞形态分工背后的能量与信息逻辑。
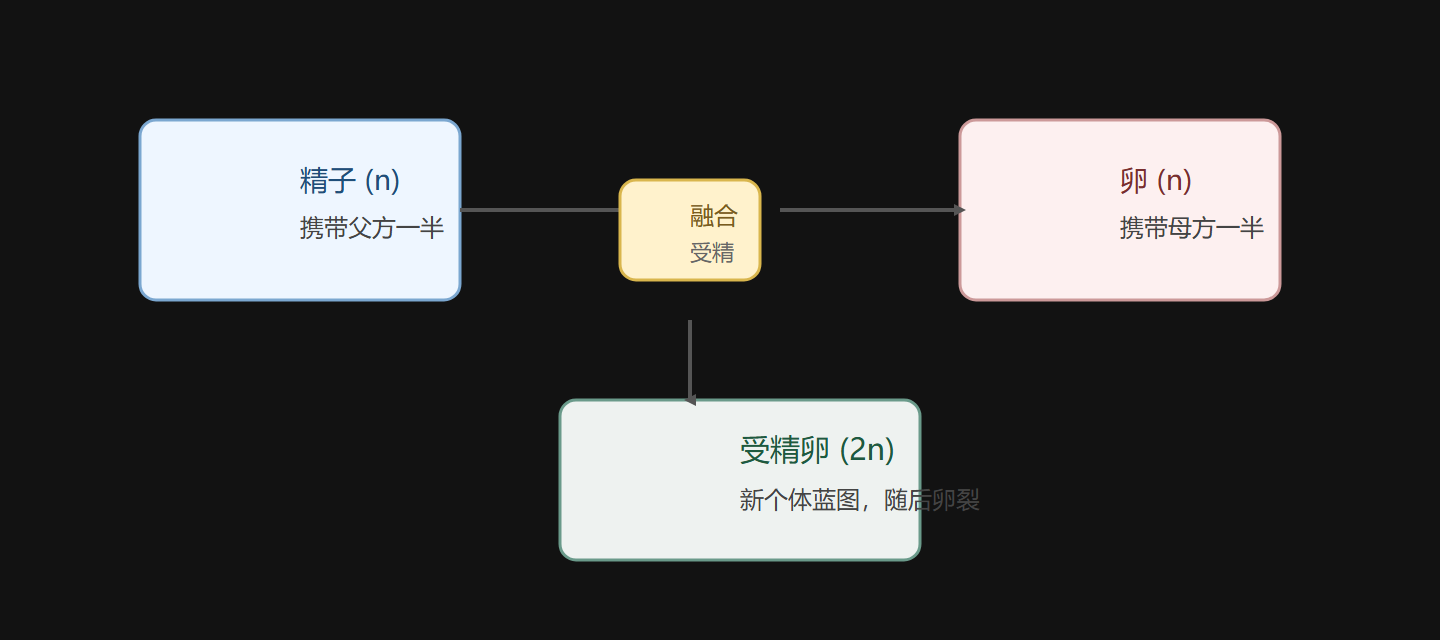
- 描述受精的三步:去抑制、识别与融合、原核联合。
- 讲清"母源效应"与"合子基因组激活"的切换时机为何重要。
减数分裂到底在解决什么问题
很多人在学减数分裂时只记住了"染色体减半",以为它纯粹是为了凑二倍体。但把它放进发育语境里看,减数分裂同时干着三件几乎一样要紧的事:
一是减半:双减分裂把二倍体变成单倍体,为受精后恢复二倍体做准备。这是教科书里那句"等于不用记"的话,却是一切发育信号的盖头。
二是重组:减数分裂前同源染色体配对并交换片段,产生遗传上各不相同的一大批配子。个体遗传多样性就在这里攒底。
三是储备:减数分裂把卵母细胞"冻结"在特殊阶段,让它在成熟前大量积累 mRNA、蛋白质、细胞器——这些就是受精后早期发育要用的"家务设备"。这个任务在精子一边完全缺席,因为精子分批量根本不给自己留储备。
精子与卵:一场故意设计成不对等的分工
如果你摊开看精卵的解剖,会觉得生物设计得"很不公平":精子小到几乎没有细胞质,只带核、鞭毛和顶体;卵却大得离谱,携带着可以支撑早期分裂的 RNA、脂肪、卵黄和小分子。这不是浪费,而是一场精确的能量分工:
- 精子押注在"机动作"上——把体积压到最低,好让移动成本降到极致,用最大数量去撞。
- 卵押注在"家当"上——早期胚胎在合子基因组真正开机前,全靠这些母源储备撑住前几轮细胞分裂与早期转录。
这种不对等在极端物种里更明显:鸡、蛙、鱼的卵黄多到卵呈"蛋白 + 胚盘"的结构;哺乳动物的卵黄不多,靠胎盘后续供营养。卵黄多少直接决定了后面的卵裂方式,而这是下一节的内容。也就是说,配子发生的分工直通早期发育的中期路标。
我用一个 Python 模型把"母源储备 vs 合子开机"的接力算给你看。假设每次分裂细胞数翻倍,母源 mRNA 总量不变因而被均分稀释,而合子的转录随着发育逐步补充上来;在某个交点之后,合子才能真正接管:
import numpy as np cells = [1] for _ in range(16): cells.append(cells[-1] * 2) # 分裂次数 → 细胞数翻倍 maternal = 100.0 / np.array(cells) # 母源mRNA随分裂被稀释 zygotic = np.linspace(0, 60, len(cells)) # 合子转录逐步上调 for i, c in enumerate(cells): takeover = zygotic[i] > maternal[i] if c <= 32 or takeover: mark = "← 合子首次反超" if takeover and zygotic[i-1] <= maternal[i-1] else "" print(f"分裂{i:2d} 细胞{int(c):7d} 母源{maternal[i]:6.2f} 合子{zygotic[i]:5.2f} {mark}")
你会看到母源 mRNA 在早期够用、随后急速稀释,而合子转录一直在补位,两者的交汇点就是"合子基因组激活"的窗口。在果蝇、斑马鱼里这个交汇点都很早(通常几百到上千细胞左右),因为母源物资终会耗尽。理解这条接力线,你就理解为什么早期发育那么怕母体健康出问题——在那段窗口里,一切都靠妈妈那份行李撑着。
受精三步:从两颗单倍体到一只双层新个体
受精看似一瞬,其实是被严格分节的三个动作。我用一条脉络串起来讲:
第一步,去抑制。 精子一旦入卵,卵会迅速抛出一套"堵塞门"(皮层反应放大、钙离子波在全卵内扩散),阻止第二条精子进入。这保证了单精受精——否则多套父本基因组会带来灾难性后果(人也一样,多精受精的胚胎通常无法存活)。
第二步,识别与融合。 精子靠顶体酶打开卵被膜,以受体-配体的方式与卵膜上的特定分子互认,随后膜融合、精子核进入卵质。种间识别就发生在这一步——为什么精子通常只对自己的种有效,答案就藏在这套分子握手里。
第三步,同步。 精卵两套单倍体核各自经历去凝聚,反向旋转靠近,在相遇、转录启动时才真正"原核融合"(严格说是核膜相遇 + 染色体并置),随即开始第一次卵裂。严格讲受精并未瞬间把两套遗传泡成"同一本账",而是在首个分裂周期里完成并置。
动物中这套流程花样很多,但骨架一致。海胆是教科书级的观察对象——它的卵几乎透明,方便目击皮层反应与钙波;而蛙、哺乳类则把受精后的皮层旋转、受精锥等细节藏得更多。
⚠️ 常见坑:以为"卵轴 = 后来胚胎轴"铁板一块。其实在许多动物里,轴还要靠受精后的皮层旋转(如爪蟾的旋转使皮层相对内部滑移约 30 度),把一个新轴记到胚胎上。所以受精不仅是遗传的起点,常常也是空间极性的起点。
💡 关键直觉:把受精当成"一次事件"会错过它最重要的性质——它是一条起跑线,既提供二倍体读数,也借母源储备把发育接到能自主运转的接力点上。你把"什么时候合子接棒"记住,后面读母源效应、致畸窗口都顺。
为什么这里值得多花十分钟
你可能觉得配子发生和受精是"生物学开头那几页"的老生常谈。但把它放回本教程的蓝图框架里,你会发现它是两层意义的合集:遗传上,它把蓝图(等位基因)装帧成可部署的书;空间上,它给胚胎预装了极性轴(卵轴 + 皮层旋转)。第 2 章后三节的所有工序——卵裂切分、原肠翻折、轴定格取决于这一节埋好的这两样东西。
小结与衔接
- 减数分裂三任务:减半保证二倍体复归,重组攒多样性,储备给早期发育带干粮。
- 精卵不对等分工:精子押体积与机动,卵押储备与家当。
- 受精三步:去抑制(单精)、识别融合、同步并置。
- 合子接管窗口:母源物资稀释、合子转录补位的交汇点承载早期发育的安全垫。
- 轴预装:卵轴与皮层旋转常在受精时才落定空间极性。
下一节我们看这份"家当加蓝图"的包裹如何在卵裂里被切成一座细胞山,并首次分出滋养层与内细胞团两类职工。
图 2-1 受精:两套单倍体合并为一套二倍体蓝图