3.3 细胞分化与命运决定
3.3 细胞分化与命运决定
本节摘要:细胞代谢相近却能分成数百种身份,靠的是"命运决定"这道逐级收窄的闸门。本节把命运放进"指定—决定—分化"的阶梯里,配上诱导多能干细胞 (iPSC) 证明"命运可逆写"的和盘托出,再用一个克隆谱系模拟算清"一个多能细胞到终局细胞到底经过几层分叉",顺带讲干细胞的生态位如何守住"永远有备用轮胎"。
学习目标
阅读完本节,你应当能够:
- 用"指定—决定—分化"描述一个细胞命运被锁定的过程。
- 解释干细胞、祖细胞、终末分化细胞的干性梯度。
- 说明 iPSC 为什么推翻"决定不可逆转"的旧观念、以及它没推翻的另一个边界。
- 用克隆扩增模型理解一个多能细胞的谱系如何被逐层收窄。
命运的三级台阶:指定、决定、分化
上节说表观帮细胞"记住",这节回答"记得住的到底是什么、台阶有多高"。业界一般把命运画成三级台阶:
- 指定 (specification):细胞在原本环境里会朝某方向走,但把它搬走它就改行——身份只是"环境中的倾向",还没焊死。
- 决定 (determination):搬走也改不了行了,命运已被内在锁定——即使换环境,它照样奔既定方向去。
- 分化 (differentiation):不仅锁定了方向,开始实际表达特征基因、长成特征形态(比如神经细胞伸出突触、红细胞开始合成血红蛋白)。
判断一个细胞到底停在"指定还是决定",操作很简单:把它移植到别处,看它改不改行。改行 = 还在指定;不改 = 已经决定。这个"移植测试"是整章最值钱的判据,别背定义,记得这个测试就行。
多能性的梯度:从全能到干性只见一般
与"命运锁定"相对的是"干性",也分梯度。举一套容易记的"能力阶梯":
- 受精卵/早期分裂球:全能(totipotent),能做出包括胎膜在内的全部。
- 内细胞团/胚胎干细胞 (ESC):多能(pluripotent),能做三胚层的各类细胞,但不能做胎膜。
- 成体干细胞(如造血干细胞):多向但受限,只做血液系统这类整条线的细胞。
- 祖细胞:走向已定、范围更窄。
- 终末分化细胞:一条路走到底。
记住这条梯度后,"干性 = 选择余地的大小"这个直觉就有了。所谓"生态位"(niche)就是保证干细胞待在能保留选择余地的环境里(不断分裂、自我更新、不死去)的那片角落——比如肠道隐窝底部、皮肤基底层、骨髓的干细胞都靠这样的窝撑住"常备维修队"。
一个会反差的实验:iPSC 把剧本倒放
命运决定听起来像"读了剧本就走不了回头路",但 2006 年山中伸弥团队用一个惊人的结果把它撕裂:把成年小鼠成纤维细胞用四个转录因子(后来叫"山中四因子")处理,竟能让其重新变回多能干细胞(iPSC,诱导多能干细胞)。也就是说,终末分化的成年细胞能被拉回"能重新选择"的剧本起点。
这件事同时有正反两层:
正向——"决定"在一定条件下可逆,前提是给足改写工具;这直接点燃了把患者自己的体细胞转成用于细胞治疗的原料的再生医学梦。
反向——"能倒放"不等于"过程可逆很简单"。iPSC 效率很低、周期长,且需要解开成年细胞那层厚重的表观"石刻"。所以它推翻了"完全不回头",但没推翻"回头很贵"。
数值直觉:谱系树被分成几层
"多能 → 终末纪律"到底要经过多少层分叉?用一个克隆模拟把它数出来。假设从 1 个多能细胞开始,每层把当前的命运池分成几支,直到覆盖身体需要的数百种终末类型:
branches = 2 leaf = 1 levels = 0 target = 400 while leaf < target: leaf *= branches levels += 1 print(f"第{levels}层分支后叶型命运数约 {leaf}") print(f"要覆盖约{target}种终末命运,约需 {levels} 层二分叉")
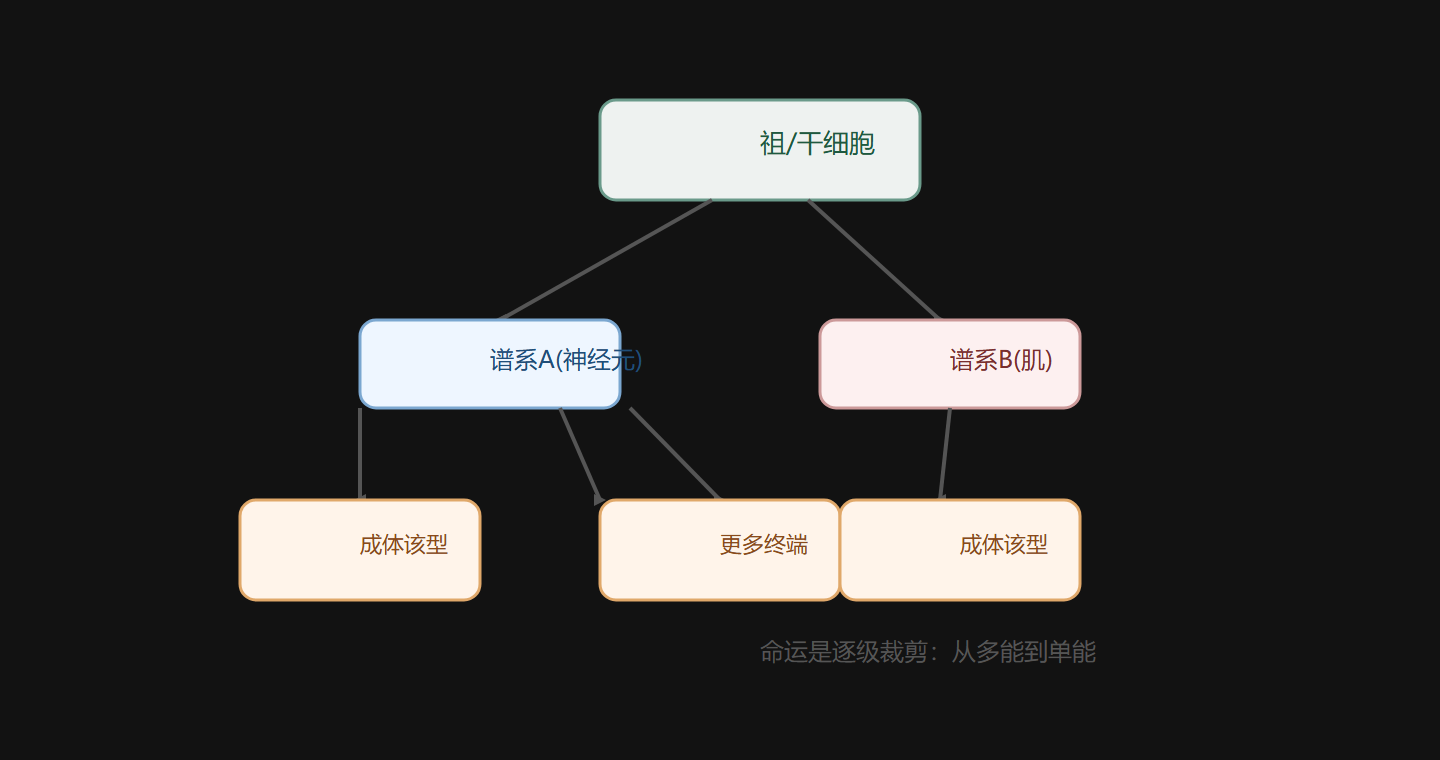
答案通常在八九层二分叉左右就到数百。这印证了 1.1 节那个"几层抉择就够"的直觉——身体并不需要几百次独立的第一次命运决策,只需要少量"分叉 + 每个分叉再分叉"的递归收窄。管理数百种命运,靠的是递归而非穷举,这也解释了为什么基因调控网络能用有限部件覆盖巨大多样性。
⚠️ 常见坑:把"干细胞"当成"万能且永远年轻的细胞"。反过来,很多干细胞待在生态位里半睡半醒,一旦被拉到体外或过度激活,反而分化失衡甚至出问题。干细胞的"神奇"来自生态位约束,不是它本身刀枪不入。
💡 关键直觉:把命运想象成一棵越走越窄的倒树最省力:起点宽到全能,每次分叉减一点余量,着眼点放在"谁在分叉路口发号、怎么把号记进基因",你就抓住了整章的主纲。
本节要点回顾
- 三级台阶:指定—决定—分化,用"移植改不改行"这条判据区分。
- 干性梯度:全能→多能→多向受限→祖→终末,干性即选择余地。
- 生态位:干细胞靠特定环境守住自我更新与备用。
- iPSC:成年细胞可被拉回多能(B正/复写的可能性),但回头很贵。
- 递归收窄:几百种命运靠少量二分叉递归覆盖,不靠穷举。
命运定了,细胞还得会搬家与塑形——把"身份"落实到"形态"。下一节我们就看细胞怎么靠粘附、迁移与骨架,把一张管腔做成立体的器官。
图 3-3 命运树:一个祖细胞往下分叉出多种终端