3.4 细胞迁移、粘附与组织塑形
3.4 细胞迁移、粘附与组织塑形
本节摘要:细胞有了身份,还要会"到岗"与"摆姿势"。粘附分子决定谁跟谁靠拢、谁从团队里被排出去;细胞骨架与基质给出搬家与塑形的肌肉和轨道;而"集体从扁型变管/变层"这类动作,靠的是一套反复出现的形态工具。本节用差异粘附的排序模型解释"为什么不同类型的细胞能自发聚成内外圈",并配神经嵴迁移与集中延伸 (convergent extension) 两个真实案例。
学习目标
阅读完本节,你应当能够:
- 说明差异粘附假说如何解释细胞自发分选成内外层。
- 描述细胞迁移的"前缘—后缩"循环与它依赖的骨架。
- 解释集中延伸这类集体塑形靠什么产生各向异性的伸长。
- 举例说明神经嵴细胞如何"雇用车队"从不同路线到岗。
粘附:细胞版的"近朱者赤"
细胞不会像磁铁样随便聚堆,靠的是膜上一批粘附分子(如钙粘蛋白 cadherin 家族)在给细胞互相打分。一个非常简洁的假说——斯坦伯格差异粘附假说——认为:如果同型细胞相互粘得比异型细胞紧(即"亲同斥异"更强),那么当一大群细胞混合时,它们会自发重新分选成同型聚在一起、且更"抱团"的在内侧的同心结构。这不用任何外部图纸,纯靠"想贴谁就贴谁"的粘附强度竞争就能涌现出秩序。
我把这个想法做成一个家园角码模拟:给每个格子标类型 A/B,规则是"把我换成更能降低整体粘附代价的邻居类型",反复交换后你会看到同类不自觉聚成团:
import numpy as np def cost_at(g, r, c): rows, cols = g.shape return sum(1 for dr, dc in ((-1, 0), (1, 0), (0, -1), (0, 1)) if g[(r + dr) % rows, (c + dc) % cols] != g[r, c]) def sort(grid, rounds=4000): g = grid.copy() rows, cols = g.shape rng = np.random.default_rng(3) for _ in range(rounds): r, c = rng.integers(0, rows), rng.integers(0, cols) before = cost_at(g, r, c) + cost_at(g, (r + 1) % rows, c) # 尝试把 (r,c) 与其邻居互换,看能不能降低“异类邻居”代价 r2, c2 = (r + 1) % rows, c g[r, c], g[r2, c2] = g[r2, c2], g[r, c] if cost_at(g, r, c) + cost_at(g, r2, c2) > before: g[r, c], g[r2, c2] = g[r2, c2], g[r, c] # 变差就换回来 return g g0 = np.random.default_rng(0).choice([0, 1], size=(16, 16)) print("初始随机类型(同类多数散开):") print(g0) print("随机互换 4000 轮后(同类应明显成簇):") print(sort(g0))
这里的本质是:粘附强度差会驱动细胞朝"更同型、更团聚"的方向自我重排,直到达到能量最低的排布。它正是胚胎里"内层细胞核、外层成皮"这类分层结构可能的物理来源之一,也被用来解释睾丸细胞与肝细胞自分类等体外重组实验。
迁移:前缘伸前、后缘撤离的循环
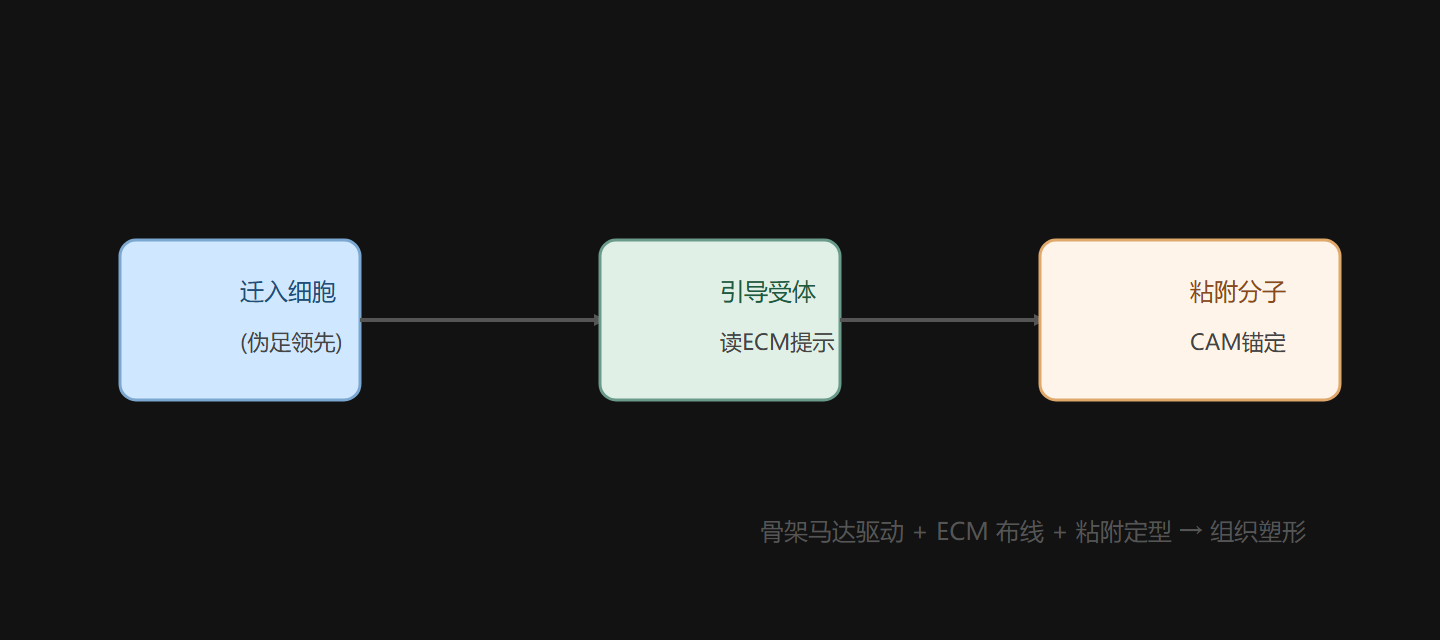
很多细胞每天要在胚胎里走远路(神经嵴是最出名的"旅行家")。迁移是一套被反复调用的局部循环:细胞在前缘伸出薄膜状伪足(靠肌动蛋白聚合把它推出),把新缘粘到基质上,再把后缘的粘附松开、把胞体拽上前。这样"伸出—粘住—松开—前移"一轮轮走,配合外基质的"轨道"与化学吸引/排斥,细胞就能准确地走到指定地点。
骨架是这套循环的引擎:微丝负责前缘推进,微管与中间纤维决定方向与加固,外基质的纤维给出一条条可以借力的路径。任何一环坏了(比如骨架聚合被药物破坏),细胞就会困在原地——这也是为什么能对粘附/骨架下手就能在实验里"冻结"一次迁移。
集体塑形:集中延伸到底怎么变长
发育里最常见的"从扁变长"动作之一是集中延伸 (convergent extension):一块本来宽宽的细胞们不靠增数、而靠"向中线收窄 + 沿长轴延伸"把自己拉长。这发生在爪蟾原肠胚、鱼胚轴、以及神经管长长等场景。它的力学核心是:细胞各自沿某个方向做定向的互相穿插(插队式重排),于是整个片从宽变窄、从短变长,像一队人把队伍横向挤紧然后纵向甩开。
把"集中延伸"放回蓝图框架里看,你会发现这里根本不用细胞变多,单靠"换座位"就几何变长了——这提醒我们形态发生有时完全是细胞重排的艺术,而不仅仅是增数与迁移。
把三种动作拧成一个意象
粘附决定亲疏、迁移决定去向、集中延伸决定朝向,三者常常合在一台戏里。最经典的案例是神经嵴:一群原本位于神经板边缘的细胞,失去部分粘附后从神经管与前缘"出逃",沿外基质多条路线(有的走腭区、有的走心区、有的走外周神经)迁移到全身,最后在各地落下来分化成色素细胞、外周神经元、牙质细胞等形形色色的"客户"。神经嵴之所以是形态发生的完美教材,正因为它几乎同时演示了"分选、出逃、长路迁移、终点分化"。
还有一个同时练到"动与粘"的知名案例:果蝇卵腔上皮的轮转重排让卵泡从球形变长;或是蝾螈肢体细胞在再生长轴上的定向迁移。它们共用同一句口诀——骨架给动力,粘附给用物,基质给路线,重排给形态。
⚠️ 常见坑:以为"越会迁移的细胞越跟正常组织关系不大",于是很晚才把"异常迁移"与"癌转移"联系起来。事实上肿瘤细胞常是重新启用了发育期那条"搬家 + 出逃 + 降落"的程序,发育迁移研究正是癌转移的重要参照系。
💡 关键直觉:把发育期的细胞想成一支会自己排兵布阵、会在战场上互相克制的军队:它们知道跟谁协同(粘附),知道往哪走(受引导),知道怎么在守住队形的同时换位置成型(重排)。形态不是由外部模具扣出来的,而是由细胞间的这些柔软决定涌现出来的。
本节要点回顾
- 差异粘附:亲同斥异的粘附强度差驱动细胞自分成内-外同心层。
- 迁移循环:伸伪足—粘—松—前移,骨架与基质是引擎和轨道。
- 集中延伸:定向替换式重排把宽片拉成窄长条,靠换位不靠增数。
- 神经嵴:出逃+多路线迁移+终点分化,是粘附/迁移/塑形的合展。
- 癌的参照:异常迁移常是重新启用发育迁移程序的失控。
细胞能搬、能塑形,还得能按计划增与死。下一节看细胞周期与程序性死亡如何共同"做减法",把一坨细胞雕成形状精确的器官。
图 3-4 细胞迁移:马达牵引 + ECM 轨道 + 粘附引导