3.5 细胞生长、增殖与凋亡
3.5 细胞生长、增殖与凋亡
本节摘要:形态不只是"长"出来的,很多是靠"减"出来的。细胞周期的进程控制着一团组织能长多快、能长多大,而程序性细胞死亡(凋亡)则像雕刻家手中的凿子,把多余的部分雕掉,让我们数得出手指、分得出神经层的边界。本节用一组"增入 - 凋亡支出"的账本模型,说明细胞数目与形状如何在增殖与死亡之间被精确校准,并配划指间细胞死亡的经典真实案例。
学习目标
阅读完本节,你应当能够:
- 说明细胞周期进程是如何被 CDK-细胞周期蛋白"走的程序"驱动与闸控的。
- 解释"增 - 死平衡"如何决定组织大小与形态。
- 用雕指间区域的细胞死亡案例说明"死亡也是塑形工具"。
- 区分凋亡(程序性别)与坏死(被动崩解)在发育中的不同角色。
细胞周期:一列被闸控的程序化列车
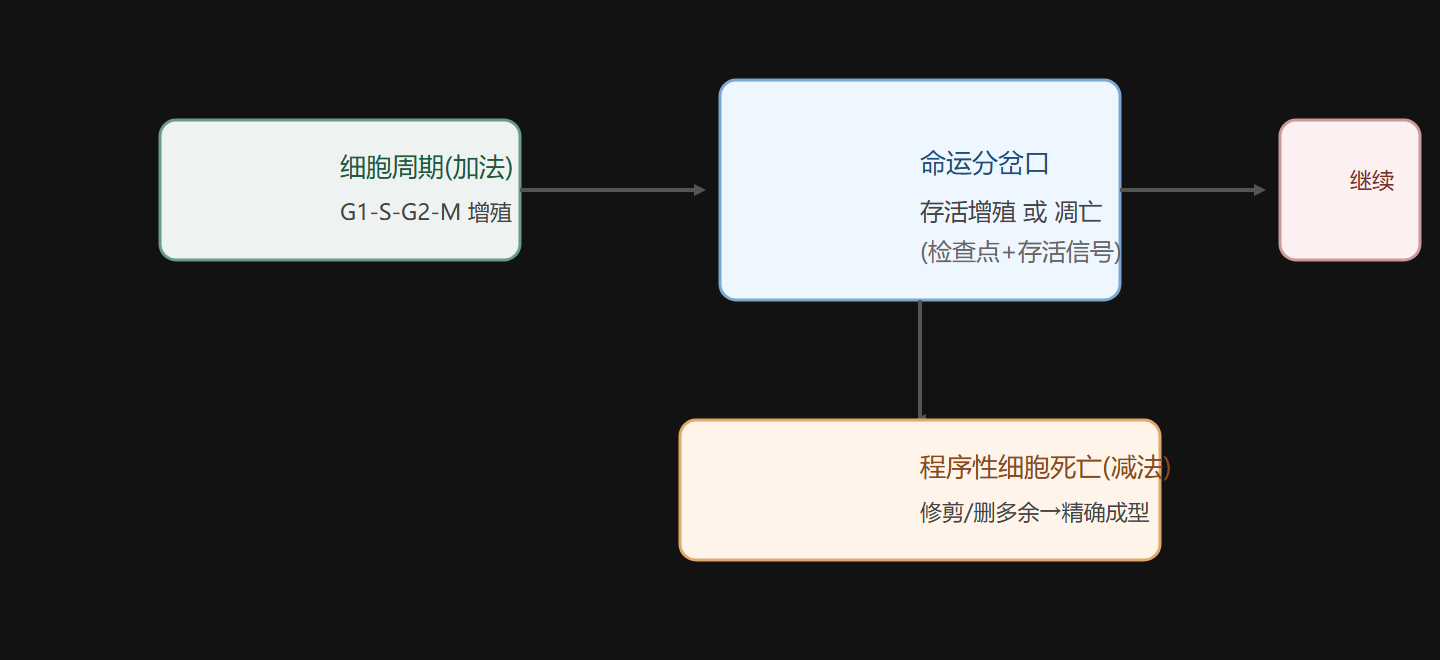
增殖的前提是能安全地把一栋细胞复制成两栋,于是细胞周期细胞拥有一整套"关隘"(checkpoint)来把关。周期蛋白与依赖它们的 CDK 激酶像一节节按顺序点着的信号帽子一样推进周期:G1 期检查环境是否允许分裂,S 期复制 DNA,G2 期复核复制完整性,M 期完成有丝分裂。任何一条检查不过,细胞要么暂停、要么进入衰老或死亡。
发育语境里这套闸的用处是"该停则停":胚胎不能无限增殖,器官也不能无限长大。决定一个器官长到多大,往往是"增殖的推动"与"该停的信号"之间的拉锯。我们要么把周期推得更快(更强生长因子),要么提前拉起闸(更强抑制),就能让生长提前刹车。理解这套"油门与刹车",比记住周期各期名词更接近发育的实际。
账本隐喻:细胞数目 = 增入 - 凋亡支出
很多人一提发育增殖,就知道"会变多",却忘了发育同时在大规模"耗减"。一坨组织最后是多大、形状如何,取决于"新增买入"和"凋亡支出"这两本账常年对账的结果。我用一个非常简的一维"账本模型"算一碗组织的最终规模——只要生死速率不变,规模会趋向一个稳定点:
def population(birth_p, death_p, initial=50, steps=60): n = initial for t in range(1, steps + 1): n = n + birth_p * n - death_p * n # 每步:增入 - 支出 if t % 12 == 0: print(f"第{t:2d}步 细胞数约 {n:7.1f} 净增 {birth_p - death_p:.3f}") return n # 情形A:增大于死 → 一直长大;情形B:增=死 → 稳定持平;情形C:增小于死 → 萎缩 print("A: 增多失少") population(0.10, 0.02) print("\nB: 增失相等") population(0.05, 0.05) print("\nC: 增少失多") population(0.02, 0.10)
这三档(长大/持平/萎缩)正是发育里常见的三种结局——胚芽初期使劲"赚钱"长大,到某个临界又该用"破产清算"(凋亡)来修型。把这个账本直觉记牢:看到"某组织变大",先别急着归因于增殖激增,也许只是凋亡被暂时关掉。
真实案例:雕出手指——指间细胞的谢幕
发育里最动人的"以死塑形"是手指的分开。人的手一开始是一块毛茸茸的掌板,趾头之间长满厚实的指间细胞;如果听任它继续增殖,就不会分出五根手指而是一块连体蹼。实际发生的,是掌板外缘之外的指间区域发动一场相控凋亡(由 BMP 等信号在特定位置开膛),让那片细胞按程序自毁、被周围邻居清除,于是五指随之“从一整块里被凿出来”。
指间细胞死亡的证据是:若阻断那里的凋亡(比如在发育敏感窗给足够的 BMP 拮抗剂,或用遗传手段关闭死亡程序),就会得到蹼状的/融合的指趾,正如天生并趾或蹼足的情形。这个案例一箭双雕:既说明"死亡是形态的正规工序",又点出"致畸物在敏感窗打断这根凿子,就留下可遗传似的外观结果"。指间死亡在爬行动物、鸟类、咱们哺乳动物里都反复上演,只是最后的指缝数目与蹼量不同。
凋亡 vs 坏死:同样是死,天差地别
这里值得立一条硬规矩:发育语境里的"程序员死亡"叫凋亡 (apoptosis),是细胞主动服毒自杀、并把自己的碎片打包给邻居清理——有序、不留痕、不引发炎症;而坏死 (necrosis) 是细胞被外力扯破、内容物泄漏——会诱发炎症,也不是生长发育的常规工具。所以神经层修剪冗余突触、淋巴选择时乱杀过头,都是"精心安排的凋亡";而缺氧导致的细胞胀破则是"被迫的坏死"。分清这两者,是读懂"某种细胞增多/减少是因为什么在管它"的起点。
⚠️ 常见坑:把"细胞死了"一律当作发育失败。巡航发育一程,你会发现死亡经常是"成功的一部分"——非要分清这"死"是凋亡(受控工序)还是坏死(被迫崩坏),很多病理表象与形态结果才解释得通。
💡 关键直觉:把组织想成一块边雕边长的湿土:增殖负责给它料,凋亡负责给它形,两者同时开。于是"塑形"不是后处理,而是与生长并行发生的雕刻过程。这能一下打通"为什么多了反而要死、为什么形状得靠减法"的种种现象。
本节要点回顾
- 周期闸:周期蛋白-CDK 点火推进,检查点决定"该停则停"。
- 账本隐喻:组织规模 = 增入 − 支出,长大/持平/萎缩三档由此决定。
- 指间死亡:相控凋亡把掌板凿出五指,阻断它则得蹼。
- 凋亡 vs 坏死:受控自毁 vs 被动崩解,发育只认前者。
- 塑形是并行的减法:生长与死亡同时操作,形靠减法雕出来。
第三章的分子语法到此收束。从下一章开始,我们拿着这套"发信、记身份、分命运、搬家、加减"的工具,去逐个验收人体与动物的一个个器官系统——第四章正式开始。
图 3-5 细胞的加法与减法:周期推进 vs 凋亡清除