1.1 免疫系统概述与历史
1.1 免疫系统概述与历史
本节摘要:免疫学研究的核心问题是生物体如何识别"自我"与"非我",并在抵御外来威胁的同时避免攻击自身组织。本节从免疫学的定义出发,梳理其从经验观察到分子科学的关键历史转折,帮助读者建立对免疫学全貌的基本认知。
学习目标
阅读完本节,你应当能够:
- 用一句话定义免疫学的核心问题
- 列出免疫学发展的五个关键历史阶段及其代表人物
- 解释"免疫"一词的词源和语义演变
- 说明免疫学研究的三个基本层次
- 描述 Burnet 克隆选择学说的核心内容及其意义
从"免除"到"识别":免疫学的核心问题
免疫(immunity)这个词来自拉丁语 immunitas,原意是"免除义务"——古罗马时期指的是免除纳税或服兵役的特权。到了医学语境中,它被用来描述一个人对某种疾病"不再易感"的状态。这个语义演变本身就很有意思:从法律上的"免于义务"到生理上的"免于疾病",核心都是一种"保护"。
但现代免疫学的核心问题远不止"不得传染病"这么简单。真正的问题是:一个由万亿个细胞组成的复杂生物体,如何区分"属于自己"的东西和"不属于自己"的东西?
这不是一个容易的问题。你体内的每一个细胞都携带着由你自己的基因组编码的蛋白质,而入侵的细菌、病毒也不过是另一套蛋白质。免疫系统面临的挑战是:在分子层面上,"自我"和"非我"的差别可能极其微小——有时候只是一个氨基酸的差异。更棘手的是,自身组织的蛋白质也会因为突变或损伤而发生改变,免疫系统还得判断这是"受伤的自己"还是"外来的威胁"。
所以,免疫学的核心问题可以概括为一个三角:
- 识别:怎么分辨"自我"和"非我"
- 应答:识别之后怎么采取行动
- 耐受:怎么确保不误伤"自己"
这三个问题贯穿了免疫学两百多年的发展史,至今仍是活跃的研究领域。
一个临床案例:为什么移植器官会被排斥
器官移植是理解"自我与非我"识别的绝佳例子。当一个人的肾脏移植到另一个人体内时,接受者的免疫系统会把移植肾脏上的蛋白质当作"非我"来攻击——这就是排斥反应。即使供体和受体是亲兄弟,排斥风险仍然很高,因为人类 MHC(主要组织相容性复合体)基因的高度多态性使得几乎每个人携带的独特 MHC 分子组合都是不同的。要找到完全匹配的供体,概率极低。这就是为什么移植患者需要长期服用免疫抑制剂来压制免疫系统的"排斥"反应——本质上是在人为削弱免疫系统对"非我"的识别和应答。
免疫学发展史上的五个转折点
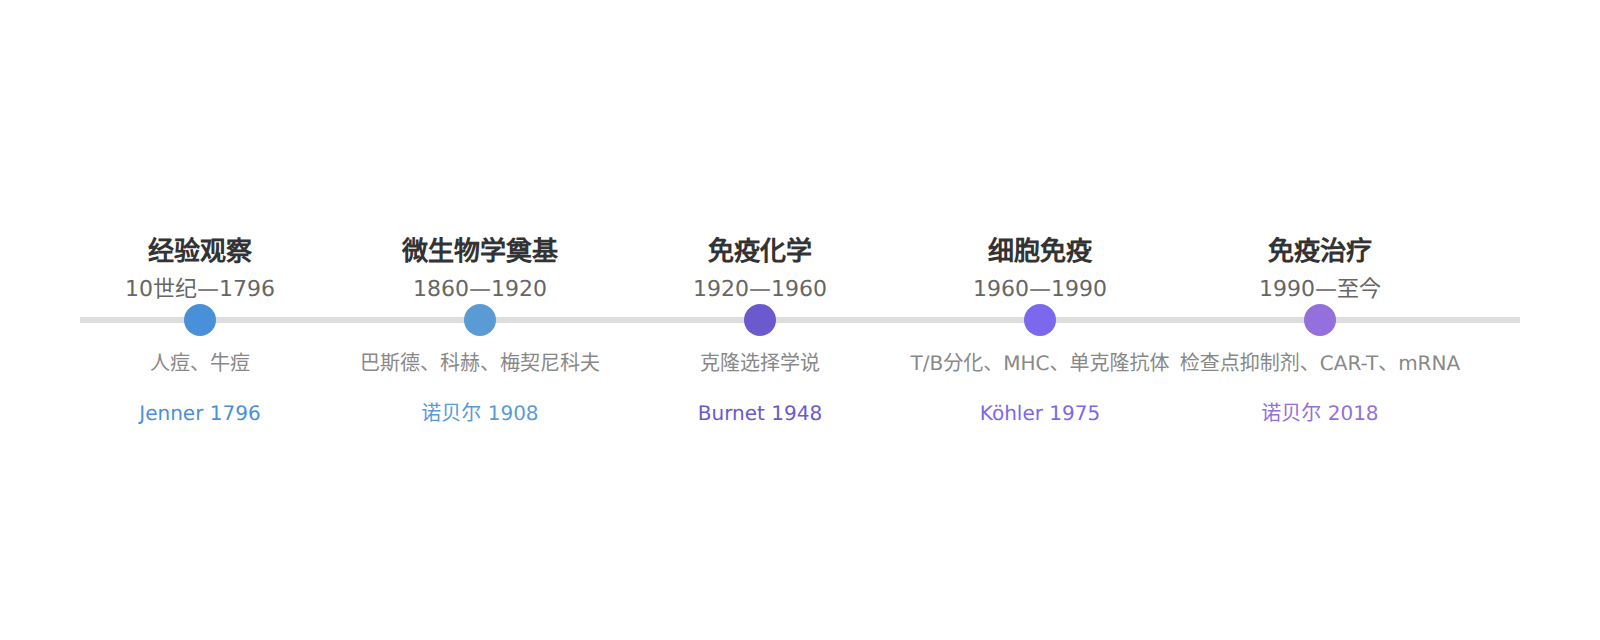
第一阶段:经验观察(公元10世纪—18世纪末)
人类对免疫现象的最早利用发生在没有理论指导的情况下。中国宋代已有"人痘接种"的记录——把天花患者的痘痂磨成粉吹入健康人的鼻腔,试图让人获得对天花的抵抗力。这种方法有一定效果,但有约2%的死亡率,风险不小。
1796年,英国乡村医生爱德华·詹纳(Edward Jenner)做了一个改变世界的观察:挤牛奶的女工几乎不得天花。他推断,牛痘(一种症状轻微的牛传染病)能提供对天花的保护。于是他用牛痘物质接种了一个8岁男孩,后来用天花物质去挑战——男孩果然没有发病。这是人类第一次用可控的方式诱导免疫保护,"疫苗接种"由此诞生。
这段时期的特点是:知道有用,不知道为什么有用。经验在理论前面,实践走在了科学前面。
第二阶段:微生物学奠基(19世纪末—20世纪初)
路易·巴斯德(Louis Pasteur)和罗伯特·科赫(Robert Koch)建立了微生物学的基本框架——疾病的"细菌学说"。巴斯德系统化了减毒疫苗的概念(用加热或化学方法减弱病原体毒力),科赫则提出了鉴定病原体的"科赫法则"。
与此同时,伊利亚·梅契尼科夫(Élie Metchnikoff)发现了吞噬现象——某些细胞能主动吞噬并消化外来微粒。他因此获得了1908年的诺贝尔奖。保罗·埃尔利希(Paul Ehrlich)提出了"侧链学说"(side-chain theory),试图从化学角度解释抗体的产生机制——虽然细节后来被修正,但他的核心思路(细胞通过表面受体识别抗原)是正确的。
第三阶段:免疫化学时期(1920s—1960s)
这个阶段的主角是抗体。科学家们发现,免疫血清中存在能够特异性中和毒素或凝集细菌的可溶性因子——也就是抗体。随着蛋白质化学技术的发展,抗体的分子本质逐渐被揭示。
一个关键突破来自免疫电泳技术的应用——科学家发现免疫球蛋白不是一种分子,而是一个家族。后续研究确定了五种主要的抗体类别(IgG、IgA、IgM、IgD、IgE),并揭示了它们在结构上的相似性和功能上的差异。
1948年,Macfarlane Burnet 提出了"克隆选择学说"(clonal selection theory),认为每一个淋巴细胞在发育过程中就被"预编程"为识别一种特定的抗原。当这个抗原出现时,对应的淋巴细胞就会被选中并大量扩增。这个理论解释了免疫应答的特异性,是免疫学理论的里程碑。
克隆选择学说有一个有趣的数学含义。如果每个淋巴细胞只能识别一种抗原,而自然界中潜在的病原体种类几乎是无限的,那么人体需要多少种不同的淋巴细胞?答案是通过 V(D)J 重组机制,理论上可以产生超过 10 的 11 次方种不同的受体——远超自然界中存在的抗原种类。这个"过剩"的设计确保了免疫系统几乎能应对任何未知的威胁。
第四阶段:细胞免疫的崛起(1960s—1980s)
抗体无法解释一切。20世纪60年代以后,T 细胞和 B 细胞的分工被明确区分。研究发现,细胞免疫(T 细胞介导)在抗病毒感染和移植排斥中发挥着抗体无法替代的作用。
1975年,单克隆抗体技术诞生(Köhler 和 Milstein,诺贝尔奖),从此免疫学有了很强的工具。杂交瘤技术将产生特定抗体的 B 细胞与无限增殖的骨髓瘤细胞融合,创造出能持续分泌同一种抗体的杂交瘤细胞系。这一技术至今仍是抗体药物开发的基础。
1980年代,MHC 分子的结构和功能被深入解析,抗原呈递机制被阐明。Peter Doherty 和 Rolf Zinkernagel 发现 T 细胞识别抗原时需要同时识别 MHC 分子(MHC 限制性),这获得了1996年诺贝尔奖。免疫学进入分子时代。
第五阶段:免疫治疗时代(1990s—至今)
从第一个治疗性单克隆抗体上市,到免疫检查点抑制剂(PD-1/PD-L1)获诺贝尔奖,再到 CAR-T 细胞疗法获批——免疫学已经从基础科学走向了临床应用的爆发期。
2018年,James Allison 和 Tasuku Honjo 因为发现免疫检查点(CTLA-4 和 PD-1)而获得诺贝尔生理学或医学奖。他们的工作直接催生了多种抗癌药物。2020年,mRNA 疫苗在新冠疫情中的大规模应用更是将免疫学推向了公众视野的中心——从基础研究到临床应用的全过程在不到一年内完成,这在人类医学史上是前所未有的。
值得特别提到的是,mRNA 疫苗的成功并非偶然。Katalin Karikó 和 Drew Weissman 在2005年就发现了如何修饰 mRNA 使其逃避免疫系统的天然识别——即用假尿苷替代尿苷来降低 mRNA 的免疫原性。这个看似基础的技术突破,在15年后拯救了数百万人的生命,并因此获得了2023年诺贝尔奖。这个案例生动地说明:免疫学基础研究的长期投入,终将在关键时刻产生巨大的社会回报。
图:免疫学发展时间线
免疫系统的三个研究层次
今天的免疫学研究者通常在三个层次上工作:
分子层面:关注受体与配体的结合、信号通路的传导、蛋白质的结构与功能。比如,T 细胞受体(TCR)如何识别 MHC 分子上的抗原肽?PD-1 抑制剂阻断了什么信号?这些问题的答案都在分子层面。
细胞层面:关注免疫细胞的发育、分化、迁移和功能执行。比如,造血干细胞怎么分化成 T 细胞和 B 细胞?树突状细胞如何将抗原从外周组织携带到淋巴结?巨噬细胞在肿瘤微环境中会发生什么变化(即"肿瘤相关巨噬细胞"的极化现象)?
组织与整体层面:关注免疫器官的结构功能、免疫应答在全身的协调。比如,为什么肿大的淋巴结意味着正在发生免疫应答?肠道的黏膜免疫系统跟全身免疫有什么不同?血脑屏障如何影响中枢神经系统的免疫状态?
这三个层次不是割裂的,而是相互渗透的。一个完整的免疫学问题往往需要从三个层面同时理解。比如,理解疫苗为什么有效:分子层面是抗原被加工和呈递,细胞层面是 T 和 B 细胞被激活并产生记忆,组织层面是引流淋巴结为免疫应答提供了集中的场所。
从历史看免疫学的思维方式演变
回望这段发展史,你会发现免疫学研究者的思维方式发生了根本转变。早期的研究者把免疫系统看作"防御城墙"——关注的是"怎么把敌人挡在外面"。到了克隆选择时代,研究者开始把免疫系统看作"学习系统"——关注的是"淋巴细胞如何被教育"。而今天的免疫学研究者把免疫系统看作"调控网络"——关注的是"不同免疫成分之间如何对话、如何平衡、如何失调"。
这种思维方式的演变不是简单的新旧交替,而是层次的叠加。"城墙"的比喻仍然有效——皮肤和黏膜屏障确实是最基本的防线;"学习"的比喻也仍然有效——克隆选择和免疫记忆是适应性免疫的核心;"网络"的比喻则是最新的补充——它帮助我们理解为什么免疫系统会出现失调,以及如何精确地调控它。
关键术语表
| 术语 | 含义 | 为什么重要 |
|---|---|---|
| 免疫(Immunity) | 生物体抵抗感染和疾病的能力 | 免疫学的出发点和研究对象 |
| 抗原(Antigen) | 能被免疫系统识别并引发应答的物质 | 免疫应答的"触发器" |
| 抗体(Antibody) | 由 B 细胞产生的特异性识别抗原的蛋白质 | 体液免疫的核心效应分子 |
| 免疫耐受(Tolerance) | 免疫系统对自身抗原不产生应答 | 防止自身免疫病的关键机制 |
| 克隆选择(Clonal Selection) | 特异性淋巴细胞的抗原驱动的选择性扩增 | 解释免疫应答特异性的核心理论 |
| MHC 限制性(MHC Restriction) | T 细胞识别抗原时需同时识别 MHC 分子 | T 细胞功能的核心约束条件 |
要点速记
- 免疫学的核心问题是"自我"与"非我"的识别,以及在此基础上实现有效的防御和精准的耐受
- 免疫学经历了五个阶段:从经验观察到微生物学奠基、免疫化学、细胞免疫,再到免疫治疗时代
- 免疫学研究三个层次:分子、细胞、组织——理解任何免疫现象都需要多层面视角
- 克隆选择学说是现代免疫学的理论基石,它解释了免疫应答的特异性和记忆性
- Jenner 的牛痘实验是免疫学从经验走向科学的起点,至今仍影响着疫苗设计思路
- 免疫检查点研究催生了革命性的癌症免疫疗法,标志着免疫学从基础走向临床的全新时代
下一节我们将深入免疫系统的"硬件"——免疫细胞从哪来,它们在哪里驻扎和工作。