1.4 固有免疫细胞的功能与分类
1.4 固有免疫细胞的功能与分类
本节摘要:固有免疫细胞是免疫系统的"快速反应部队",包括巨噬细胞、中性粒细胞、自然杀伤细胞、树突状细胞和肥大细胞等。它们通过吞噬作用、细胞毒性释放、抗原呈递和炎症因子分泌等方式,在感染初期就构建起有效的防御屏障。本节逐一解析这些细胞的功能特点和作战策略。
阅读收获
阅读完本节,你应当能够:
- 列出五类主要固有免疫细胞并描述各自的核心功能
- 解释吞噬作用的基本过程和关键分子机制
- 说明 NK 细胞"识别自我缺失"的杀伤策略
- 区分树突状细胞在固有免疫和适应性免疫中的双重角色
- 描述肥大细胞在过敏反应和抗寄生虫免疫中的作用
- 解释嗜酸性粒细胞在抗寄生虫免疫中的特殊功能
吞噬细胞:前线清道夫
"吞噬作用"(phagocytosis)这个词来自希腊语,意思是"吃细胞"。这是固有免疫最古老也最有效的防御手段之一。早在1882年,梅契尼科夫就观察到了吞噬细胞主动吞噬细菌的过程——他甚至用海星幼虫验证了这一发现,并因此获得了1908年的诺贝尔奖。
主要吞噬细胞类型
参与固有免疫防御的吞噬细胞主要有三类:
**巨噬细胞(Macrophage)**是组织中的"常驻巡逻兵"。它们起源于血液中的单核细胞(monocyte),单核细胞从血液循环迁移到组织中后分化为巨噬细胞。不同组织中的巨噬细胞有不同的名字——肝脏中的叫库普弗细胞(Kupffer cell),脑中的叫小胶质细胞(microglia),骨中的叫破骨细胞(osteoclast),肺中的叫肺泡巨噬细胞(alveolar macrophage),皮肤中的叫朗格汉斯细胞(Langerhans cell,属于树突状细胞的一种)。虽然名字不同,但它们共享基本的吞噬和抗原呈递功能。
巨噬细胞的独特之处在于,它们不仅参与固有免疫(直接吞噬和杀灭病原体),还是适应性免疫的重要桥梁——它们能将抗原呈递给 T 细胞,并分泌细胞因子来调控免疫应答的方向。巨噬细胞在不同微环境信号下可以极化为两种状态:M1 型(经典激活,促炎,抗菌和抗肿瘤)和 M2 型(替代激活,抗炎,促进组织修复和血管新生)。这种极化可塑性使得巨噬细胞在免疫应答的不同阶段发挥不同的调控作用。
**中性粒细胞(Neutrophil)**是血液循环中数量最多的白细胞,占白细胞总数的 60-70%。它们是真正的"敢死队"——在感染信号(特别是趋化因子梯度)的引导下,中性粒细胞从血液中迅速渗出,向感染部位迁移,大量吞噬细菌后释放活性氧和抗菌酶来杀灭病原体。中性粒细胞寿命很短(通常只有几天),大量死亡后释放的内容物会形成脓液。
中性粒细胞的迁移过程本身就是一个精密的级联反应:首先是"滚动"(rolling)——中性粒细胞在内皮细胞表面缓慢滚动,由选择素(selectin)介导;然后是"激活"(activation)——内皮细胞表面的趋化因子激活中性粒细胞的整合素(integrin);最后是"牢固黏附和外渗"(firm adhesion and transmigration)——激活的整合素与 ICAM-1 结合,中性粒细胞穿过内皮进入组织。整个过程在数分钟到数小时内完成。
**树突状细胞(Dendritic Cell, DC)**虽然在形态上不像典型的吞噬细胞,但它们确实能吞噬和处理抗原。DC 的核心功能不是直接杀灭病原体,而是作为最专业的抗原呈递细胞(APC),将抗原信息传递给 T 细胞。第 2 章会详细介绍 DC 的抗原呈递过程。
吞噬作用的过程
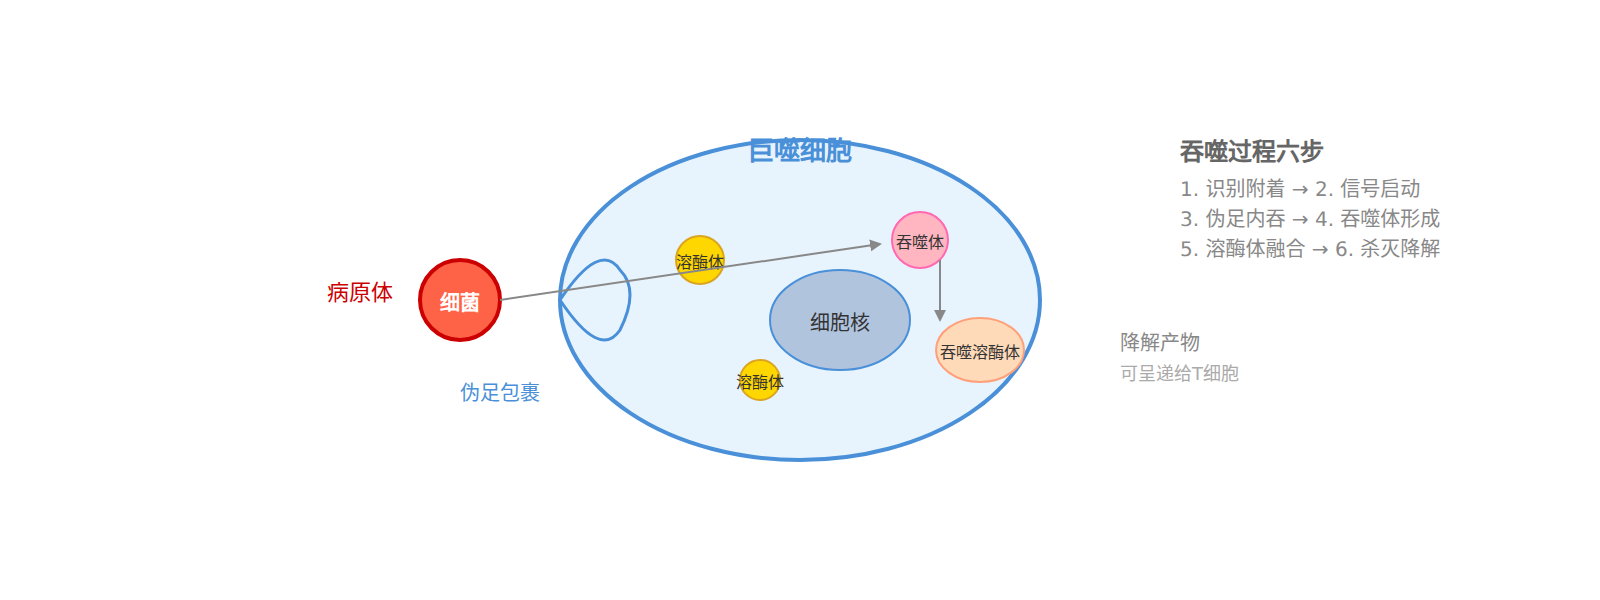
吞噬作用不是一个简单的"吃掉就完事"的过程,它包含至少六个步骤:
第一步是识别。巨噬细胞表面的受体需要识别病原体——直接识别病原体表面的分子(通过 PRR 识别 PAMPs),或者通过间接方式识别(病原体被补体或抗体标记后,巨噬细胞通过补体受体或 Fc 受体识别标记物)。直接识别不需要适应性免疫的参与,所以是固有免疫的基础机制;间接识别则需要适应性免疫已经产生了抗体或激活了补体,所以是两类系统协作的体现。
第二步是信号启动。识别后,细胞内部的信号通路被激活,触发一系列细胞骨架重排反应。这个过程涉及 Rac、Rho、Cdc42 等 GTP 酶的激活。
第三步是伪足延伸。巨噬细胞伸出伪足(pseudopod),将病原体包裹起来。这个过程需要肌动蛋白骨架的动态重组。
第四步是吞噬体形成。伪足合拢后,病原体被包裹在一个膜囊泡中——这就是吞噬体(phagosome)。
第五步是融合。吞噬体与细胞内的溶酶体(lysosome)融合,形成吞噬溶酶体(phagolysosome)。
第六步是杀灭。溶酶体释放多种杀灭剂——活性氧(ROS)通过 NADPH 氧化酶产生、一氧化氮(NO)通过诱导型一氧化氮合酶 iNOS 产生、各种水解酶(蛋白酶、核酸酶、脂肪酶)、抗菌肽(防御素、 cathelicidin)——在酸性环境中将病原体彻底降解。
💡 关键直觉:吞噬作用的核心逻辑是"内化后隔离处理"。把病原体从细胞外环境中"搬进"细胞内部的一个封闭隔间中,然后用化学武器将其消灭。这种策略的优势在于,杀灭过程发生在细胞内部,不会误伤周围的正常组织。
某些病原体进化出了逃避免噬的策略。结核分枝杆菌能阻止吞噬体与溶酶体的融合,在吞噬体中存活甚至繁殖。金黄色葡萄球菌能产生过氧化氢酶来分解巨噬细胞产生的过氧化氢。军团菌则通过分泌效应蛋白改变吞噬体的膜运输途径。这些策略解释了为什么某些感染特别难以清除。
图:吞噬过程示意
NK 细胞:识别"自我缺失"
自然杀伤细胞(Natural Killer Cell, NK 细胞)的识别策略非常独特。与 T 细胞和 B 细胞不同,NK 细胞不识别特定的抗原,而是通过检测"异常"来决定是否攻击。
NK 细胞表面同时表达两类受体:
- 激活性受体:识别应激细胞表面的分子(如 MICA/B)
- 抑制性受体:识别正常细胞表面的 MHC I 分子
正常情况下,所有有核细胞都表达 MHC I 分子,抑制性受体与 MHC I 结合后会发送"别打我"的信号,压制激活性受体的攻击信号。但某些异常细胞(病毒感染的细胞或肿瘤细胞)会下调 MHC I 的表达来逃避 T 细胞的识别——这恰恰让它们失去了对 NK 细胞的"保护信号"。NK 细胞检测到"自我信号缺失"后就会发动攻击。
这个机制被形象地称为**"缺失自我"假说(missing-self hypothesis)**。它由 Klas Kärre 在1980年代提出,当时他发现,那些 MHC I 表达降低的肿瘤细胞反而更容易被 NK 细胞杀伤,这与直觉相反但逻辑自洽。
💡 关键直觉:NK 细胞是免疫系统的"质量检查员"。它不检查"你是谁"(特异性识别),而是检查"你看起来正常吗"(通过 MHC I 的表达水平)。这是一种高明的安全机制——病毒和肿瘤细胞可以用各种方式逃避特异性识别,但很难完全模拟正常细胞的完整分子特征。
NK 细胞的杀伤机制主要有三种:
- 穿孔素/颗粒酶途径:释放穿孔素(perforin)在靶细胞膜上打孔,颗粒酶(granzyme)通过孔洞进入细胞内诱导凋亡。颗粒酶 B 能激活 caspase 级联反应,快速诱导靶细胞凋亡
- 死亡受体途径:通过表面 FasL 与靶细胞的 Fas 结合,触发靶细胞的凋亡信号
- ADCC(抗体依赖性细胞介导的细胞毒性):通过 Fc 受体(CD16)识别被抗体标记的靶细胞,增强杀伤效果。在临床中,很多治疗性抗体(如利妥昔单抗)的抗肿瘤效果部分依赖于 NK 细胞介导的 ADCC
NK 细胞不仅直接杀伤靶细胞,还通过分泌 IFN-γ 来激活巨噬细胞,增强其杀伤能力。在病毒感染的早期(适应性免疫尚未启动时),NK 细胞和 IFN-γ 构成了抗病毒免疫的第一道细胞防线。
树突状细胞:免疫系统的"侦察兵"
树突状细胞(Dendritic Cell, DC)是联系固有免疫和适应性免疫的关键纽带。它得名于其表面的树突状突起(dendrite),这些突起大大增加了细胞与环境的接触面积,有利于捕获抗原。
DC 有一个生命周期性的功能变化,对理解免疫应答非常重要:
未成熟 DC分布在全身各组织中,像"侦察兵"一样不断巡逻。它们表达高水平的模式识别受体(PRR),能有效捕获病原体和抗原。但未成熟 DC 的抗原呈递能力和共刺激分子表达都很低,基本上不会激活 T 细胞。
当未成熟 DC 捕获到病原体后,病原体相关的信号(通过 TLR 等 PRR)会触发 DC 的成熟。成熟后的 DC 发生一系列变化:下调 PRR 的表达、上调 MHC 分子和共刺激分子(如 CD80/CD86)、改变趋化因子受体表达模式(上调 CCR7),然后通过淋巴管迁移到引流淋巴结。在淋巴结中,成熟 DC 将抗原呈递给初始 T 细胞,同时提供共刺激信号——这两个信号缺一不可,共同完成 T 细胞的活化。
⚠️ 一个重要的临床要点:如果没有共刺激信号,T 细胞不仅不会被激活,反而会进入"无能"状态(anergy)。某些肿瘤和慢性感染就是利用这个机制——它们能提供抗原但缺乏共刺激信号,使 T 细胞进入无能状态从而逃避免疫攻击。这就是为什么免疫检查点抑制剂能起作用——它们解除的不是共刺激信号的缺失,而是解除肿瘤微环境中对 T 细胞的主动抑制。
DC 还有一个容易被忽视但重要的功能:它决定免疫应答的方向。成熟 DC 分泌的细胞因子谱会影响 T 细胞的分化方向。分泌 IL-12 的 DC 促进 Th1 分化(细胞免疫),分泌 IL-4 的环境促进 Th2 分化(体液免疫),分泌 IL-6 和 TGF-β 的环境促进 Th17 分化(炎症反应),而表达 TGF-β 和 IL-10 的耐受性 DC 则促进 Treg 的分化(免疫耐受)。
肥大细胞:炎症的"第一响应者"
肥大细胞(Mast Cell)主要分布在皮肤、呼吸道和消化道的结缔组织中,靠近血管和神经末梢。它们表面高表达 FcεRI 受体,能结合 IgE 抗体。当过敏原与结合在肥大细胞表面的 IgE 交联后,肥大细胞会迅速脱颗粒,释放组胺、肝素、蛋白酶等多种活性介质。
组胺引起血管扩张和通透性增加,导致红肿和渗出。蛋白酶激活补体系统并招募其他炎症细胞。这些反应在抵抗寄生虫感染中具有重要功能,但过度激活就会导致过敏反应(详见第 4 章)。
肥大细胞除了介导过敏反应外,还有多种固有免疫功能。它们能直接识别细菌和病毒成分(通过 TLR),分泌 TNF-α 和 IL-1β 启动炎症应答,并通过释放类胰蛋白酶和类糜蛋白酶来降解蛇毒等有毒物质。在肠道中,肥大细胞与肠道神经系统的密切互动参与调控肠道蠕动和内脏敏感性——这可能是肠易激综合征(IBS)的发病机制之一。
嗜酸性粒细胞:抗寄生虫的专家
嗜酸性粒细胞虽然在数量上不占优势(仅占白细胞的2-5%),但在抗寄生虫免疫中是必不可少的主力。寄生虫(如蛔虫、血吸虫、丝虫)体积巨大,吞噬细胞无法将其整个吞噬,因此需要不同的策略。
嗜酸性粒细胞通过以下机制杀伤寄生虫:
- 抗体依赖性杀伤:寄生虫体表被 IgG 或 IgE 包裹,嗜酸性粒细胞通过 Fc 受体识别并结合抗体标记
- 直接释放毒性蛋白:主要碱性蛋白(MBP)、嗜酸性阳离子蛋白(ECP)、嗜酸性过氧化物酶(EPO)——这些蛋白能直接破坏寄生虫的体表
- 活性氧产生:与中性粒细胞和巨噬细胞类似,嗜酸性粒细胞也能通过 NADPH 氧化酶产生 ROS
临床上,外周血嗜酸性粒细胞增多通常是寄生虫感染或过敏反应的标志。在过敏性疾病(如哮喘、过敏性鼻炎)中,嗜酸性粒细胞浸润气道黏膜并释放毒性蛋白,造成组织损伤——这是"帮倒忙"的典型案例:原本用于对付寄生虫的武器被错误地用来攻击无害的过敏原。
五类固有免疫细胞功能对比
| 细胞类型 | 核心功能 | 主要作战策略 | 特殊角色 | 典型疾病关联 |
|---|---|---|---|---|
| 巨噬细胞 | 吞噬、抗原呈递 | 吞噬+溶酶体杀灭 | 桥接固有/适应性免疫 | 肉芽肿性疾病(结核) |
| 中性粒细胞 | 吞噬、杀菌 | 吞噬+ROS/酶杀灭 | 数量最多的白细胞 | 化脓性感染 |
| NK 细胞 | 杀伤异常细胞 | 穿孔素/颗粒酶/FasL | 识别"自我缺失" | 病毒感染、肿瘤 |
| 树突状细胞 | 抗原捕获与呈递 | 抗原加工+MHC呈递 | 最强的APC | 自身免疫、免疫耐受 |
| 肥大细胞 | 炎症启动 | 脱颗粒释放组胺 | 过敏反应的关键 | 过敏、寄生虫 |
本节速览
- 固有免疫细胞包括五大类:巨噬细胞、中性粒细胞、NK 细胞、树突状细胞和肥大细胞(加上嗜酸性粒细胞)
- 吞噬作用包含六个步骤:识别→信号→内吞→吞噬体→融合→杀灭,某些病原体能逃避免噬
- NK 细胞通过"缺失自我"策略识别异常细胞,不依赖特异性抗原识别,还能通过 ADCC 增强杀伤
- 树突状细胞是固有免疫与适应性免疫之间的桥梁,其成熟过程决定了适应性免疫能否有效启动,其分泌的细胞因子谱决定了免疫应答的方向
- 肥大细胞通过 IgE 介导的脱颗粒反应启动急性炎症,在过敏和抗寄生虫免疫中都有重要角色
- 嗜酸性粒细胞是抗寄生虫免疫的专家,但在过敏性疾病中也会造成组织损伤
下一章我们将深入两大免疫系统的具体机制——固有免疫的屏障和识别机制,以及适应性免疫的核心特征。