1.2 碳水化合物:结构与功能
1.2 碳水化合物:结构与功能
本节摘要:碳水化合物(糖类)看起来简单——碳、氢、氧按差不多一比二比一的比例排布——却同时当好"能量仓库"和"结构材料"两重角色。本节从单糖的构型与环化讲起,比较葡萄糖、果糖与半乳糖,把淀粉、糖原、纤维素摆在一起,算"一克糖到底能供多少热",再用量化模型解释为什么糖原偏爱高度分支,以及"一个糖苷键方向"为何决定一种糖是养料还是膳食纤维。
本节导读
阅读完本节,你应当能够:
- 解释醛糖与酮糖、D/L 构型与五元/六元环化的区别,以及变旋现象的产生
- 说明单糖、双糖、多糖在结构与功能上的分工,列出常见双糖的构成与键型
- 计算葡萄糖氧化放能,与脂肪等量比较能量密度
- 说明糖原分支的意义:为什么 1-6 分支键让"即时供能"更快,并用末端数目定量解释
- 指出纤维素与淀粉在糖苷键类型上的差别如何决定能否被人体消化
一、单糖:同一分子式,多种命运的起点
葡萄糖、果糖、半乳糖三者分子式同为 C6H12O6,却因官能团和手性中心排列不同而命运迥异。醛糖的羰基在链端(葡萄糖),酮糖的羰基在链内(果糖)。在水溶液里,五碳、六碳单糖极少以直链存在,而是羰基碳与链上一个羟基加成,闭合成五元环(呋喃糖)或六元环(吡喃糖)。葡萄糖因此有 α 位与 β 位两种环式构象,它们的热力学稳定性乃至被酶识别的方式都不同。环与直链之间可以互变,这种平衡态常被称为"变旋"——刚配的葡萄糖溶液旋光度会随时间改变,直到两种端基异构体达成平衡。
下面这个算例把"环化占绝对优势"落到数字,再看看变旋平衡对旋光度的实际影响。
# 单糖在水中的环-直链平衡量级 cyclic = 0.98 open_chain = 1 - cyclic print(f"环式占 {cyclic*100:.0f}%,直链只占 {open_chain*100:.0f}%") # 变旋:α-葡萄糖旋光度 +112°,β-葡萄糖 +18.7°,平衡后约 +52.7° a_alpha, a_beta, frac_alpha = 112.0, 18.7, 0.36 rot_eq = a_alpha * frac_alpha + a_beta * (1 - frac_alpha) print("平衡旋光度 ≈", round(rot_eq, 1), "°(与实测 +52.7° 吻合)") print("直链醛基虽占比极小,但环⇌直链平衡使糖仍具还原性")
多数还原糖检测正是利用"直链醛基能被氧化"这一点:虽然环式占绝大部分,但环⇌直链的动态平衡让永远有一小撮醛基随时可用。这解释了为什么即便以环式为主的葡萄糖仍呈还原性,也解释了为什么约 36% 的 α 端基异构体加上其余 β 端基异构体的加权旋光度恰好落在人们测到 +52.7°——一个能算的守恒量。
二、双糖与多糖:糖苷键决定"储存"还是"建筑"
单糖两两之间脱去一分子水、以糖苷键相连,得到双糖(麦芽糖、蔗糖、乳糖)。再多就是多糖。真正拉开差距的是糖苷键的类型与方向:
- 淀粉(植物储能):葡萄糖以 α-1,4 键连成直链(直链淀粉),并点缀 α-1,6 分支(支链淀粉)。
- 糖原(动物储能):同样的 α-1,4 主链,但分支更多更密,间隔约 8–12 个残基就分一次支。
- 纤维素(植物结构):以 β-1,4 键相连,相邻链平行排列靠氢键聚成微原纤维,极其坚韧。
常见双糖的"配方"值得背熟,因为它们天天出现在营养标签上:
| 双糖 | 组成单糖 | 连接键 | 食物来源 |
|---|---|---|---|
| 蔗糖 | 葡萄糖 + 果糖 | 葡萄糖α1,2果糖 | 甘蔗、甜菜 |
| 麦芽糖 | 葡萄糖 + 葡萄糖 | α-1,4 | 淀粉水解中间物 |
| 乳糖 | 葡萄糖 + 半乳糖 | β-1,4 | 人乳、牛奶 |
人体消化道能水解 α 键(有 α-葡萄糖苷酶),却普遍缺少切 β 键的酶——所以淀粉可被利用,纤维素却是膳食纤维。这个"一字之差决定能不能吃"的比喻,正是糖苷键类型的体温计。同是 β-1,4 键,昆虫的几丁质(含 N-乙酰氨基葡萄糖)则是动物界最重要的结构多糖之一,可见"方向决定材料"的规律在生命周期里被一再使用。
三、能量密度:把"一克糖"算成"多少热"
"糖=4kcal/g、脂肪=9kcal/g、蛋白=4kcal/g"是营养学的三条铁律。我们用葡萄糖氧化放能来演算一次原子级账目,看看这些常数从哪来。
molar_mass = 180.16 # 葡萄糖 g/mol dGo = -2820 # 完全氧化 /mol kj_per_g = abs(dGo) / molar_mass kcal_per_g = kj_per_g / 4.184 print("葡萄糖能量密度 kj/g:", round(kj_per_g, 2)) print("折合 kcal/g:", round(kcal_per_g, 2)) print("1g 脂肪(9kcal) ≈", round(9/kcal_per_g,2), "g 糖的能量") # 反推:糖为何烧得比脂肪快却存得少 fat_kcal = 9.0 ratio = fat_kcal / kcal_per_g print("脂肪每克相对糖的能量倍率:", round(ratio, 2))
算出来恰好落在 15.7 千焦每克也就是约 3.7 千卡每克附近,正是营养学标称的"糖约 4 kcal/g"。而脂肪只有约 9 千卡每克,所以同样重量下脂肪藏着两倍还多的能量,身体才会倾向把多余热量存成脂肪而非糖原。另一方面,糖原超含水(每克糖原约绑 2–3 克水),这进一步解释了"为什么储备能量不靠糖原"——同样的总质量,糖原撑不起长时间的能量供应。
四、糖原分支:一个"改结构换来供能速度"的设计
糖原储存在肝脏和肌肉,作用是在血糖偏低时迅速放出葡萄糖。它为什么长成"高度分支"的样子?因为糖原降解从分子表面的非还原端一截一截"啃",而合成则从分支点延伸。分支越多、末端越多,就相当于"可同时开工的糖梢"越多——需要紧急供能时,多条链并行释放,速度远低于单链。下面的算例把"分支度决定释放速率上限"量化。
# 分支度对释放位点数的影响 linear_ends = 1 n_branch = 1000 # 若糖原被切成约千个总末端(含大量 1-6 分支梢) linear_speed = 1 branch_speed = n_branch # 并行释放近似正比于可用末端数 print("单链同时可作用的末端数:", linear_ends) print("高度分支可同时作用的末端数:", n_branch) print("并行释放速度比:", branch_speed // linear_speed) # 更真实地看:分支点间隔约 8-12 个残基,末端总数随分子量指数增长 import math def branch_ends(k, floor_residues=9): return 2 ** (k + 2) # 每层分支端点倍增的粗模型 for layer in [4, 8, 12]: print(f"分支层级约{layer}时,末端对数 = {branch_ends(layer):,}")
这一对比直观展示了为何"同样的葡萄糖存量",糖原要比直链淀粉释放得更快、更适合应急。分支间隔越密,末端越多,分子表面"受力点"越密集;代价则是约 7% 的葡萄糖若不是 α-1,4 而是 α-1,6 分支点,需要额外的"脱支酶"配合才能完全分解。这也是运动员"肌糖原更高"能跑更久的分子层面的原因——快跑时肌肉要的就是这种"可同时开挖"的糖梢储备。
五、从结构到消化到血糖
双糖蔗糖在肠道被蔗糖酶水解为葡萄糖与果糖;乳糖被乳糖酶水解。若乳糖酶缺乏,乳糖原样进入结肠被细菌发酵,就产生腹胀腹泻——这是人群中相当普遍的"乳糖不耐受"。
# 乳糖酶活性下调的后果:计算一次过量乳糖负荷 lactase_active = 0.7 # 成人残余活性比例(相对婴儿) load = 25.0 # 一次摄入乳糖克数 absorbed = load * lactase_active fermented = load - absorbed print(f"吸收乳糖 {absorbed:.1f}g,进结肠发酵 {fermented:.1f}g") print(f"发酵产生氢气,呼气氢试验可检出(>20 ppm 提示不耐受)")
"缺一个酶,一个好的糖变成一泡麻烦"——这是临床生化的经典写照,也是"结构决定能否被一个酶切开"的又一个例子。糖原作为升血糖库,其降解与糖异生、脂肪酸动员的失衡,又会在糖尿病与第 5 章代谢的章节被放大讨论。这里先记住一条主线:碳水化合物结构的每一步——构型、环化、键型、分支——都在为"能被哪个酶认出来、能被多快拆掉供能"这同一件事服务。
图 1-2 单糖、双糖与多糖的三级组织
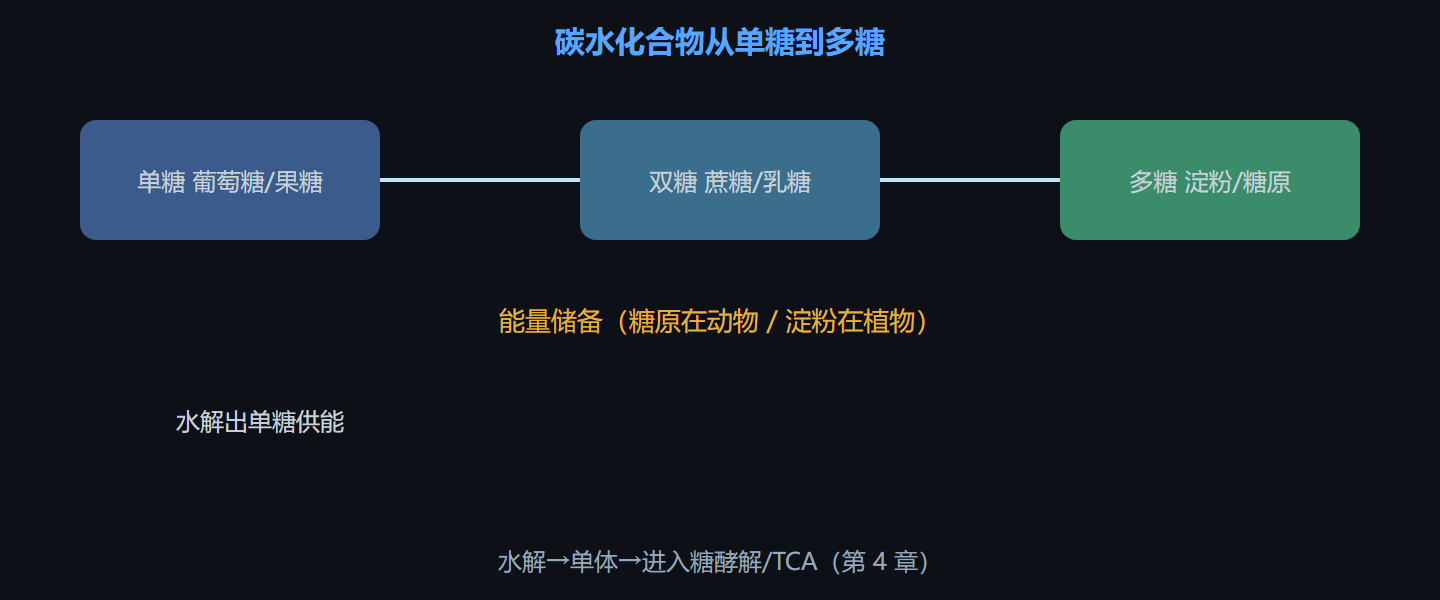
从单糖到多糖,组织形式从小分子储备升级为大分子储能,最终都水解回单体进入第 4 章的氧化通路。
本节要点回顾
- 单糖:醛糖/酮糖、D/L 构型;水中以五元六元环为主,变旋平衡使糖仍具还原性。
- 糖苷键是判官:α 键可消(淀粉糖原),β 键抗消(纤维素),决定"储存还是建筑"。
- 双糖有配方:蔗糖=葡萄糖+果糖、麦芽糖=葡萄糖+葡萄糖、乳糖=葡萄糖+半乳糖。
- 能量密度可算:葡萄糖约 3.7 kcal/g,脂肪约 9 kcal/g,故能量过剩首选存脂。
- 糖原分支:大量非还原端并行释放,供能快于直链,代价是需脱支酶配合。
- 临床落点:乳糖酶缺乏→乳糖不耐受;糖尿病后文展开。