1.3 脂质:结构与膜组分
1.3 脂质:结构与膜组分
本节摘要:脂质是"油水不分家"那类分子的总称,本质上是难溶于水的碳氢化合物和它们的衍生物。本节厘清脂肪酸、甘油三酯、磷脂、鞘脂、固醇这五大类,重点讲两亲性如何让磷脂在水里自组装成双层膜,用临界胶束浓度(CMC)的算例说明"浓度一到,分子自动排队",再算脂肪酸链长与双键如何改熔点,最后落到胆固醇与膜流动性、以及去垢剂为何能解膜这些生理与实验落点。
你将掌握
阅读完本节,你应当能够:
- 区分脂肪酸、甘油三酯、磷脂、鞘脂、固醇在结构上的差异
- 解释两亲性(亲水头、疏水尾)如何决定磷脂的自组装方式
- 说明临界胶束浓度 CMC 的意义及其对膜与蛋白溶解的影响
- 判断脂肪酸链长与不饱和度如何影响熔点与膜流动性
- 指出胆固醇在膜中的作用与其"温控填料"机制,以及去垢剂为何能溶膜
一、脂质的两大派别:储存型与膜型
脂质其实不是一个化学家族,而是一个"性质家族"——凡是难溶于水而溶于有机溶剂的都可以归入。要在这个庞杂类别里找到秩序,最好按功能分。先拆成两派,再看每一派里有哪些具体分子:
- 储存脂:甘油三酯,即甘油+三分子脂肪酸,是百倍于糖原的能量仓库。
- 膜脂:磷脂、鞘脂、胆固醇,负责把细胞内外隔开并容纳膜蛋白。
五大类各自的骨架差异值得记牢:脂肪酸只有一条烃链加一个羧基;甘油三酯是甘油借酯键挂三只"脚";磷脂在此基础上把其中一个脂肪酸替换成磷酸团接极性头部;鞘脂以鞘氨醇为骨架而非甘油;固醇则是四环稠合的甾体,最典型的便是胆固醇。记住这张"骨架表",后面读代谢通路时就不会把"脂肪酸 β-氧化"和"胆固醇合成"混为一谈——它们吃的是完全不同形状的原料。
膜脂的存在极度依赖一个词——两亲性。以磷脂为例,头部是磷酸与胆碱/氨基乙醇等极性基团(亲水),两条长脂肪酸尾巴是非极性烃链(疏水)。把磷脂丢进水里,它不会乖乖溶解,而是自动让疏水尾避开水、亲水头朝水,排队形成一定的结构。
二、从胶束到双层膜:浓度是开关
当膜脂浓度很低时,分子只是散在表面;一旦超过一个临界浓度,它们会自发聚成胶束(单层、疏水尾向内)或双层膜(疏水尾相对、亲水头朝两侧水相)。这个临界浓度记为 CMC。
CMC 的量级与分子几何有关。锥形的单尾分子(如胆盐、皂)倾向形成胶束;而圆柱形的双尾磷脂更倾向铺成双层。下面的算例把"浓度没过 CMC 是单体、越过 CMC 全体自组装"这个二元转变变成一行行输出,同时也演示了怎么把表面压力这类可测量与"自组装发生没有"连起来。
cmc = 1e-4 # mol/L(磷脂一般为 < 10^-6,皂类约 1e-3) label = {False:"仍以单体为主", True:"自组装成胶束/双层"} for c in [1e-8, 1e-6, 1e-4, 1e-3, 1e-2]: on = c >= cmc print(f"浓度 {c:6.0e} M -> {label[on]}") # 表面张力随浓度下降在 CMC 处出现转折(示意) import math for c in [1e-8,1e-6,1e-4,1e-2]: tension = 72.0 - 45.0 * (0.5*(1+math.tanh((math.log10(c)-math.log10(cmc))*3))) print(f"{c:6.0e} M 表面张力≈ {tension:.1f} mN/m")
表面张力在 CMC 前后出现一个明显拐点,这一可测量特征正是实验上确定 CMC 的手段。它把"分子自动排队"从看不见的猜想变成一条用张力计几分钟就能画出来的曲线。这段算的就是那个朴素又关键的现象:浓度没过 CMC 是一堆孤立分子,一过 CMC,全员开工建膜(或胶束)。
三、脂肪酸长链与不饱和度改熔点
脂肪酸熔点由链长与双键数量共同决定。碳链越长,分子间范德华接触面越大,越难熔化。而碳链中的顺式双键会让链"折一下",使分子不能紧密并排,显著降低熔点。这就是橄榄油(富含不饱和)常温为液态、而黄油(室温呈固态)含较多饱和脂肪的原因。
def mp_guess(carbons, double_bonds): base = -60 + carbons * 3.5 # 每碳约 +3.5°C base -= 14.0 * double_bonds * 2 # 顺式双键折断链、大幅降熔点 return base for name, c, db in [("月桂酸12:0",12,0),("棕榈酸16:0",16,0), ("硬脂酸18:0",18,0),("油酸18:1",18,1), ("亚油酸18:2",18,2)]: print(f"{name:10s} 近似熔点 {mp_guess(c,db):+5.0f} °C") # 室温取 20°C:熔点低于室温者为液态 print("液态脂肪酸 -> 室温下多为油状(不饱和或短链)")
硬脂酸(18:0)明显高于油酸(18:1),尽管只差一个双键——这就是"顺式不饱和键把链掰断"的直观量化;再多一个双键(亚油酸)熔点继续下探。把这条规律外推,你就能用它"读"食品标签:动物油多负甘油三酯与饱和脂肪所以凝固,植物油含顺式多不饱和故低温仍流动。这也是食品工业"氢化"把双键补满、从而把蔬菜油变"人造黄油"的道理——代价则是生成反式脂肪酸对心血管的不利影响。
四、胆固醇:膜里的"硬骨头"与"软垫"
胆固醇是四环甾体,含一个极性羟基头与一个扁平疏水骨架。它插在磷脂疏水区里,扮演"温控填料":温度高时,它限制磷脂链运动让膜更"僵";温度低时,它阻碍链紧密结合让膜更"软"。一言蔽之,胆固醇把膜流动性"钉"在一个不宽不窄的窗口里。这种性质对神经鞘膜、红细胞膜的稳定尤其重要。
# 胆固醇如何把流动性"钉"住:高温抑制、低温抬高,模拟一个窄窗口 def order(T): # 不含胆固醇:随温度单调降低 return 1.0 - 0.02 * (T - 20) def order_with_chol(T): # 含胆固醇:抑制高温端、拉升低温端,形成平台 high = 1.0 - 0.012 * (T - 20) low = 0.78 - 0.006 * (T - 20) return min(high, max(low, 0.72)) for T in [15, 25, 37, 45]: print(f"{T}°C 无胆固醇序参量 {order(T):.2f} | 含胆固醇 {order_with_chol(T):.2f}")
裸脂双层的"序参量"随温度一路下滑;加进胆固醇后,高温端被限速、低温端被托底,序参量落在一个窄平台里——这就是"胆固醇稳定膜流动性"的数值直觉。胆固醇太多会加厚膜的刚性、太少则膜过软,这正是临床上要控制胆固醇、而细胞又离不开它的两面性。
图 1-1 磷脂双层与胆固醇示意
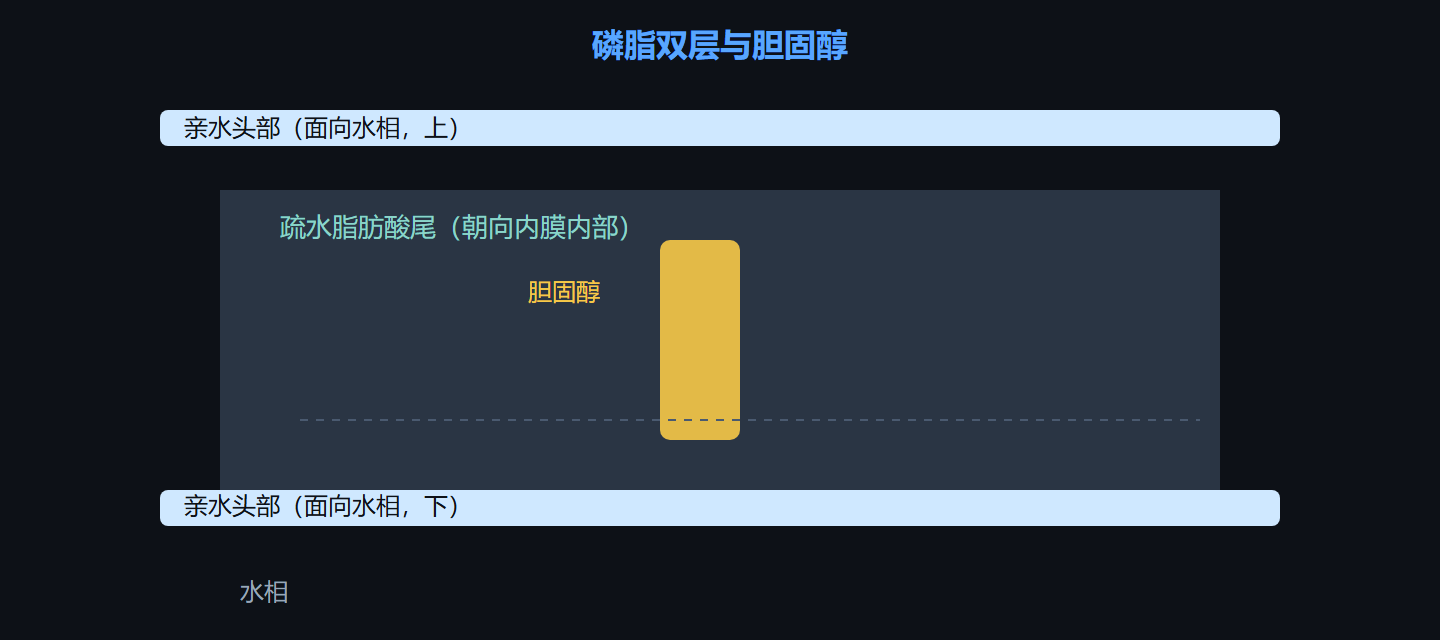
图中分层展示了磷脂尾部如何相对而亲水头朝外的双层骨架,以及胆固醇如何"楔"在疏水区。这张图是第 5 章脂代谢、第 7 章膜受体信号共同的"物理底图"。
五、临床与实验落点:去垢剂、溶血与膜功能
溶血性磷脂与去垢剂本质上都靠"扰乱膜双层、超过 CMC 就破坏膜"起作用,这是理解"为什么一滴溶血试剂的影响远大于等量单体"的钥匙。细胞膜胆固醇比例异常还会改变膜蛋白活性,这在许多疾病(如高胆固醇血症驱动的动脉粥样硬化)中被放大。
# 去垢剂溶膜:浓度 < CMC 只插入单体;> CMC 才造成成片溶解 req = 1e-3 # 去垢剂有效溶解膜所需浓度(示意) dose_low = 1e-5 dose_high = 5e-3 print("低剂量: 约", "只增韧性、几乎不溶膜" if dose_low<req else "已开始溶膜") print("高剂量: 约", "把膜组分装进胶束带走(细胞膜被溶解)" if dose_high>=req else "仍不够")
这一对比让你理解为什么实验室提取膜蛋白必须把去垢剂浓度拉过 CMC,而普通清洗剂浓度一高就会把细菌/红细胞膜撕开。DNA、蛋白、膜的分离与纯化,前前后后都踩在这条"浓度到没到 CMC"的分界线上。
本节要点回顾
- 五大类:脂肪酸、甘油三酯、磷脂、鞘脂、胆固醇,骨架各异、功能不同。
- 两大派:储存脂(甘油三酯)与膜脂(磷脂/鞘脂/固醇)。
- 两亲性是根基:亲水头+疏水尾 → 浓度超过 CMC 后自组装成胶束或双层。
- 熔点可算:链长拉高、顺式双键拉低熔点,亦关乎氢化与反式脂肪。
- 胆固醇是温控填料:把膜流动性钉在窗口内,过量与不足都出问题。
- 日常推演:去垢剂溶膜、脂肪储能在体内全靠同一条自组装逻辑。