1.4 核苷酸与核酸:结构与信息存储
1.4 核苷酸与核酸:结构与信息存储
本节摘要:核酸是细胞的"信息档案"——DNA 把遗传蓝本存起来,RNA 把它转译成功能。本节从嘌呤嘧啶碱基讲到核苷、核苷酸,再讲到磷酸二酯键如何把它们连成一条带 5'→3' 极性的链,最后用算法可复现地解释 GC 含量如何决定双链的熔解温度、以及碱基互补配对为何让"复制不出错"成为可能,并延伸到密码子、tRNA 折叠等结构如何撑起信息流。
学习目标
阅读完本节,你应当能够:
- 拼出核苷酸三层结构:碱基、戊糖、磷酸
- 说明 DNA 与 RNA 在糖与碱基上的两点区别,以及由此带来的结构偏好
- 理解磷酸二酯键的 5'→3' 极性,并说出它对复制、转录、测序的意义
- 计算任意序列的 GC 含量并估算熔解温度,据此设计 PCR 引物
- 解释碱基互补配对(A-T、G-C)在复制保真与损伤修复中的角色
一、核苷酸:碱基、糖、磷酸的三明治
核酸单体是核苷酸,它由三块拼起来:一个含氮碱基、一个五碳糖、一个或多个磷酸。碱基分两大类——嘌呤(A、G,双环)与嘧啶(C、T/U,单环);糖则决定它是 DNA 还是 RNA。拿走磷酸剩下的"碱基+糖"叫核苷,再加磷酸才是核苷酸,也就是核酸的原料。下表把这块"三明治"的所有零件钉清楚:
| 层次 | 内容 | 举例 / 备注 |
|---|---|---|
| 碱基 | 嘌呤(双环)/ 嘧啶(单环) | A、G / C、T、U |
| 戊糖 | 核糖 / 脱氧核糖 | RNA 用核糖,DNA 用脱氧核糖 |
| 磷酸 | 1–3 个磷酸 | 三磷酸如 ATP 供能 |
密码子层面的信息存在碱基,能量与信号层面的信息往往也由核苷酸衍生物(比如 ATP、cAMP,它们正是由高能磷酸键或环化带来的功能)参与。理解核苷酸先记住一句:它既是建筑材料,又是能量与信号货币。这就解释了为什么核苷酸在教材里反复出现却总是"身兼数职"。
二、DNA vs RNA:只差两处却各司其职
- 糖:DNA 用脱氧核糖,RNA 用核糖。多出的羟基让 RNA 更活泼也更易被水解。
- 碱基:DNA 用胸腺嘧啶(T),RNA 用尿嘧啶(U)替代 T。
还有结构差异:DNA 通常是稳定的双螺旋,RNA 常为单链且可自发折叠成复杂结构。RNA 的 2'-羟基让它既能与别的分子形成更多氢键,又更容易被碱水解,这使得 RNA 适合"临时搬运"而把蓝图交给更稳定的 DNA 来长期保管。正是因为 RNA 既能存信息又能折叠出催化活性(核酶),才有了"RNA world"假说——生命最早可能由 RNA 启动,再让 DNA/蛋白质来接管。
三、磷酸二酯键与极性:链只能从 5' 往 3' 长
核苷酸的 3' 羟基与下一个核苷酸的 5' 磷酸之间形成磷酸二酯键,链因此有严格的方向性。读者记住 5'→3' 极性的现实意义:复制、转录、测序都是沿着这条方向读写的,方向错了实验就全乱。DNA 聚合酶只能往 5'→3' 方向延伸新链,这对第 6 章理解"前导链/后随链不对称复制"是前提。
四、GC 含量与熔解温度:一条可复现的算法
G-C 碱基对有三条氢键而 A-T 只有两条,所以 GC 越高的双链越难拆开,熔解温度 Tm 越高。下面用一段任何读者都能在自己的机器上复现的 Python,把"算 GC、估 Tm、比引物"一次做完。
def gc_content(seq): seq = seq.upper() gc = sum(1 for b in seq if b in "GC") return gc / len(seq) if seq else 0.0 def tm_estimate(seq): seq = seq.upper(); gc = gc_content(seq); n = len(seq) if n <= 14: return 64.9 + 41 * (gc - 0.41) # 短引物近似 return 81.5 + 16.6 * (gc - 0.5) # 长序列近似 for pr in ["GATTACA", "GCCGCCGCGCAG", "ATCGATCGATCGAT", "GCGCGCGCGCGC"]: print(f"{pr} len={len(pr)} GC={gc_content(pr):.0%} Tm≈{tm_estimate(pr):.1f}°C")
从输出你能看到:同样长度的引物,GC 含量越高 Tm 越高。PCR 设计引物时要求正反引物 Tm 接近(说到底是让两条引物在差不多同一温度"退火"到目标区),这既是分子生物学的日常规程,也是一条你可亲手验算的守恒律。高 GC 区域(如某些启动子,含有 CpG 岛)正因为 Tm 高、难拆开,经常是扩增与测序的难点,同时也是甲基化调控的富集区——这又和第 6 章基因表达调控接上了。
五、DNA 双螺旋:互补配对是"纠错"的根
两条链靠碱基互补配对(A-T、G-C)合在一起,一条链序列决定另一条链序列。配对既让复制可直接"看模板抄",也让损伤检测能通过"哪条链多出一处不匹配"来找错。不过更大意义在于信息冗余:即便单链损伤,通常也能借互补链修复回去。
def complement(seq): table = str.maketrans("ATCG", "TAGC") return seq.upper().translate(table)[::-1] # 反向互补(沿 5'->3') seq = "ATGCGTACGAT" print("原链 5'-", seq, "-3'") print("互补 3'-", complement(seq), "-5'")
反向互补的输出告诉你:只要给出任意一条链,另一条链的序列就完全确定。这种"一条链携带两条链的信息"的冗余正是修复机制(如切除修复、错配修复)能挽回损伤的物理基础。
图 1-2 DNA 双螺旋与碱基配对
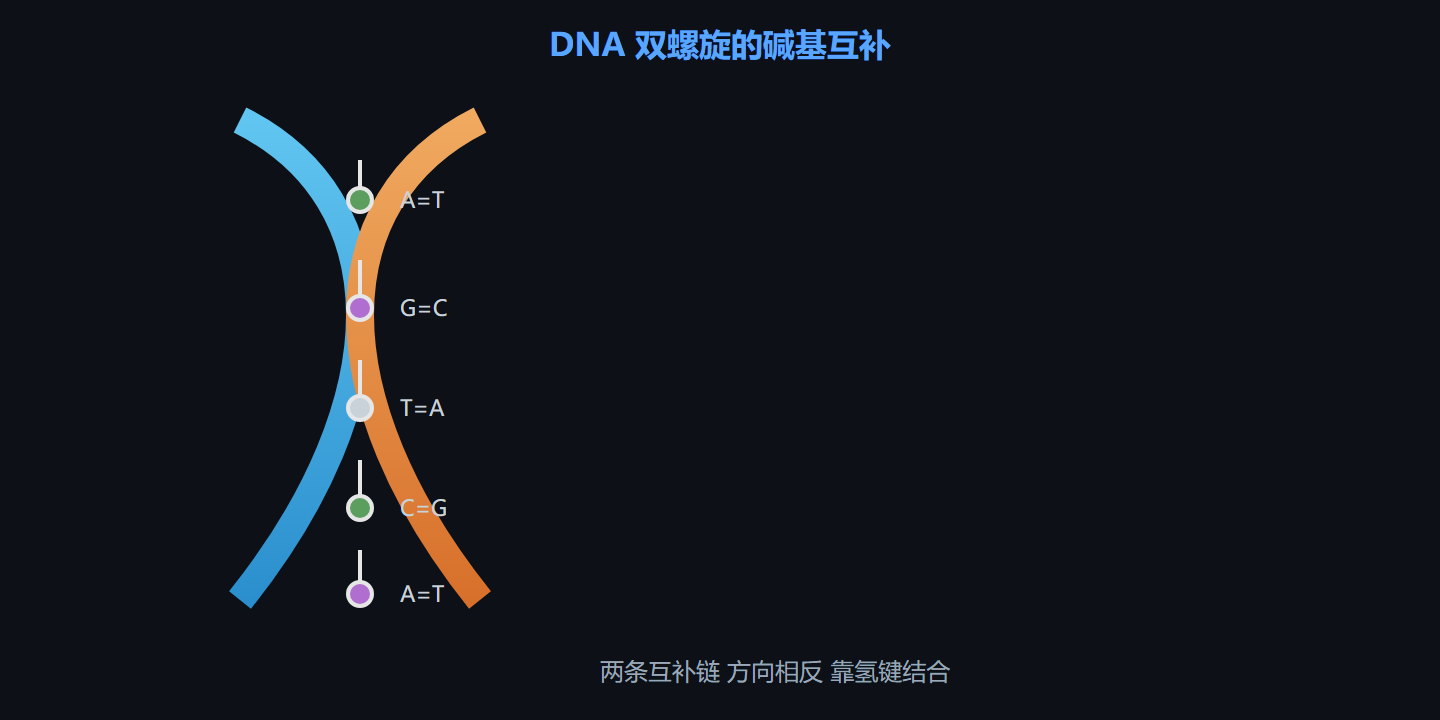
图中两条反平行的糖-磷酸骨架夹着互补配对的碱基对。这正是 DNA 既稳定又可复制、还自带"另一半序列"可修错的全部原因。
六、从结构到功能:活体里的核酸
线粒体携带自己的环状 DNA;某些 RNA(如 tRNA 的"三叶草")靠自身碱基配对折叠成三级结构去执行"搬运"职能。RNA 的折叠能力还撑起了核酶、核糖开关(riboswitch)这类"靠结构感知浓度再决定表达"的分子——它们无不依赖本节这套碱基配对规则。可以说:本节的配对规则不只是存储,也实时撑起了转录、翻译和多种 RNA 的功能。第六章会把这份蓝图如何被转录、翻译讲清楚。
本节要点回顾
- 三层结构:碱基 + 戊糖 + 磷酸;嘌呤双环、嘧啶单环。
- 两处差别:DNA 用脱氧核糖+T,RNA 用核糖+U,决定活性与结构偏好。
- 5'→3' 极性:磷酸二酯键带来方向,是复制、测序、转录的方向约定。
- GC 影响稳定性:三条氢键 vs 两条氢键,GC 高则 Tm 高、链更难拆。
- 互补配对:既保证复制保真,又提供损伤修复的"另一份参考"。