2.1 氨基酸:结构与理化性质
2.1 氨基酸:结构与理化性质
本节摘要:20 种标准氨基酸共享同一个骨架(氨基、羧基、α 碳、一条侧链),差别全在侧链。本节按侧链的极性、带电与形状把氨基酸归成几组,重点讲带电侧链与等电点如何被 pH 摆布,并把 pI 和任意 pH 下的净电荷做成两段可运行算例——这是判断蛋白质亲疏水区域、走电泳以及理解酶活性中心电荷状态的起点。
本节导读
阅读完本节,你应当能够:
- 说出通用氨基酸骨架的结构并解释"L 型、α 氨基酸"的含义
- 按侧链把 20 种氨基酸归入非极性/极性/酸性/碱性/芳香等组别
- 计算二酸、二碱氨基酸在不同 pH 下的净电荷并求出 pI
- 判断侧链如何决定某段多肽在溶液中是亲疏水还是带电
- 解释为什么半胱氨酸的巯基与脯氨酸的环结构有特殊化学地位
一、一个骨架,二十种侧链
每种标准氨基酸都是同一个配方:一个中心碳(α 碳)连着—个氨基、一个羧基、一个氢,以及一条可变侧链 R。侧链不同,氨基酸在水里的"性格"就不同——有的爱水、有的厌水,有的随时带正电、有的带负电。
按侧链可以把 20 种粗略分组:
- 非极性/疏水:甘、丙、缬、亮的烷基,苯丙、色、甲硫等带芳香或硫醚疏水基。
- 极性不带电:丝、苏、天冬酰胺、谷氨酰胺、酪、半胱,能形成氢键但中性。
- 酸性:天冬氨酸、谷氨酸,侧链羧基在生理 pH 下带负电。
- 碱性:赖、精、组,侧链氨基/胍基/咪唑基带正电(组氨酸在生理 pH 附近尤其"摇摆")。
- 芳香族:苯丙、酪、色(含苯环),既是疏水又参与色氨酸/酪氨酸的荧光检测。
这是几乎所有蛋白质折叠的"语言":折叠时疏水侧链倾向于缩进内部避水,极性带电侧链倾向于朝外或形成盐桥。想懂折叠,就得先懂这张分类表。
二、等电点可算:带电侧链怎么时时变化
每个氨基酸都有至少两个可电离基团(氨基、羧基),有的还有第三个。所谓等电点 pI 就是整体净电荷为零的 pH。对只有氨基和羧基的氨基酸,pI 就是两个 pKa 的平均;对带酸性或碱性侧链的,取相邻两个"转折"的 pKa 的平均。
def pI(pkas): # 取使净电荷跨零位的一对相邻 pKa 的平均 pkas = sorted(pkas) return (pkas[-1] + pkas[0]) / 2 if len(pkas) >= 2 else pkas[0] # 中性氨基酸:氨基 ~9.7,羧基 ~2.3 gly = pI([2.34, 9.60]) # 天冬氨酸:α羧2.09 + 侧链羧3.86 + α氨基9.82 asp = pI([2.09, 3.86, 9.82]) # 赖氨酸:α羧2.18 + α氨基8.95 + 侧链氨基10.53 lys = pI([2.18, 8.95, 10.53]) print("甘氨酸 pI:", round(gly, 2)) print("天冬氨酸 pI:", round(asp, 2)) print("赖氨酸 pI:", round(lys, 2))
算出来甘氨酸约 5.97、天冬氨酸约 3.0(酸性蛋白 pI 低)、赖氨酸约 9.7(碱性蛋白 pI 高)。这一对比说明:等电点完全由可电离侧链"加码"——这正是为什么在高 pH 碱性缓冲液里,酸性蛋白跑到前面而碱性蛋白落在后面。
三、净电荷随 pH 的完整曲线
光有 pI 还不够,实验里常有"我要在某 pH 下知道这个蛋白带多少电"的需求。以下是模拟一次电泳前给待测肽段逐点扫 pH,看净电荷如何翻转:
def net_q_COOH(pka, pH=7.0, charge=1): frac_depro = 10**(pH-pka)/(1+10**(pH-pka)) return -charge * frac_depro def net_q_NH2(pka, pH=7.0, charge=1): frac_proto = 1/(1+10**(pH-pka)) return +charge * frac_proto def charge_of(pkas_carbox, pka_amino, pka_side=None, kind='acid', pH=7.0): q = net_q_COOH(pkas_carbox[0], pH) + net_q_NH2(pka_amino, pH) if pka_side is not None: q += (net_q_COOH(pka_side, pH) if kind=='acid' else -net_q_COOH(pka_side,pH)) return q for pH in [2, 4, 6, 7.4, 9, 11]: qa = charge_of([2.09], 9.82, 3.86, 'acid', pH) # Asp ql = charge_of([2.18], 8.95, 10.53, 'base', pH) # Lys print(f"pH={pH:>3} Asp 净电荷 {qa:+.2f} | Lys 净电荷 {ql:+.2f}")
Asp 在酸性 pH 下接近中性、到生理偏碱则趋近 -1;Lys 反之在中性时已接近 +1、要到很高 pH 才归零。两条曲线一个往下、一个往上,各自在 pI 处穿过零轴。这种"电荷- pH 轨迹"正是等电聚焦、离子交换层析能分开不同蛋白的根本依据,也是设计多肽药物的等电点时要提前算清楚的理由。
四、两条"特殊"侧链:半胱氨酸与脯氨酸
半胱氨酸的巯基很特别:它能在氧化条件下两两形成二硫键(-S-S-),把肽链"焊"在一起,对稳定分泌型蛋白的三级结构至关重要。脯氨酸则因侧链折回连到 α 碳上形成一个五元环,肽键灵活性被锁死,经常出现在转角处、会折断 α 螺旋。两者都小,却都藏大功能。
# 二硫键 vs 弱疏水:氧化环境里两条链是否"焊死" ratio_red = 1e-3 def disulfide_prob(redox_ratio, K=1e-2): return 1 / (1 + 1/(K*redox_ratio**0.5)) print("强还原环境(如细胞质) 二硫键成键倾向:", f"{disulfide_prob(1e-3):.0%}") print("强氧化环境(如胞外/内质网) 成键倾向:", f"{disulfide_prob(1e-5):.0%}")
细胞质是还原性环境,所以胞内蛋白很少靠二硫键;而分泌蛋白大多在氧化性的内质网里形成,靠巯氢与氧反应焊出二硫键——这是"半胱氨酸去哪、哪里就有救生索"的分子级例证,也是为什么还原剂(DTT、β-巯基乙醇)能拆开蛋白二硫键用于变性电泳的原理。
五、一个实验落点:等电聚焦与电荷分布
等电点聚焦(IEF)让蛋白在 pH 梯度里各自停在等点电的位置,靠的就是我们算的 pI 差。同理,蛋白在 SDS 电泳下按分子量分,而利用 pH 与 pI 做"等电点柱层析"则是纯化的常规手段——这直接关联第 8 章分离技术。理解"侧链决定 pI、pI 决定迁移"是这三处实验的共同地基。
图 2-1 氨基酸净电荷随 pH 变化
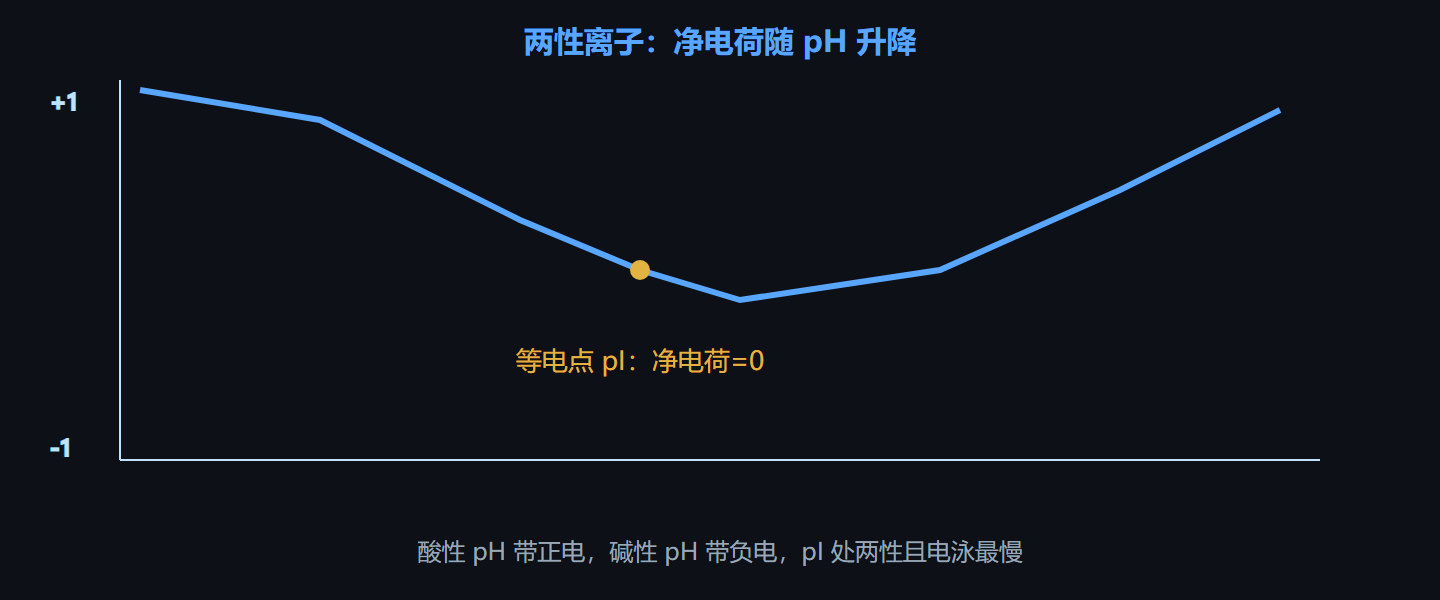
在等电点 pI 处氨基酸净电荷为零,这是等电点聚焦与电泳分离的第一个依据。
本节要点回顾
- 通用骨架:氨基+羧基+氢+可变侧链,20 种标准氨基酸仅侧链不同。
- 四大组别:非极性疏水、极性不带电、酸性、碱性(组氨酸生理 pH 附近会摇摆)。
- 等电点 pI:整体净电荷为零的 pH;二酸/二碱取相邻两个 pKa 平均。
- 净电荷可扫:电荷随 pH 的完整曲线是做电泳与层析分离的依据。
- 特殊残基:半胱靠巯基成二硫键(分泌蛋白尤其依赖),脯氨酸五元环锁死角度。
- 迁移靠 pI:等点聚焦、层析等实验全建立在这条可算的分子性质上。