2.2 蛋白质的空间结构与折叠
2.2 蛋白质的空间结构与折叠
本节摘要:蛋白质的一级结构(氨基酸序列)会自发折叠出四级层次:一级序列挑出肽键,二级局域螺旋与折叠板由氢键稳定,三级是整个多肽的三维骨架,四级是多个亚基组装成复合体。本节用多个算例估算多肽长度与二级结构占比、把"分子量↔残基↔螺旋长度"随手换算,解释折叠由疏水效应驱动、由分子伴侣协防,并量化错折叠如何通向淀粉样疾病。
学习目标
阅读完本节,你应当能够:
- 说出蛋白质结构的四个层级并各举典型二级单元
- 解释疏水效应在折叠中的"发动机"作用
- 用算例把"序列长度、分子量、二级结构占比"联系起来
- 说明分子伴侣与二硫键如何帮助折叠/稳定成形
- 指出错误折叠(如 β 淀粉样沉积)为何指向疾病
一、四级结构:从序列一路堆上去
一条多肽先有一级结构(线性序列,靠肽键连),再在局部折出 α-螺旋(每圈 3.6 残基、靠链内氢键)与 β-折叠(相邻肽段靠氢键并排成片),这叫二级结构。把整条链的二级单元在空间里排布成真实三维形态,是三级结构。若干多肽链(亚基)再组装成四级结构,比如血红蛋白就是两条 α 链加两条 β 链的四聚体。
三级结构的形状大致分两类:纤维状(如胶原)提供拉伸强度,球状(如酶、抗体、转运蛋白)把亲水壳外围着疏水核,以便溶于水又包裹活性位点。掌握"球状 vs 纤维状"这个粗略二分,能帮你在读结构图时快速判断这个蛋白是"干活的"还是"撑腰的"。
二、一个数量级的直觉:序列长短决定占位
我们先用算例感受"一个残基多重、一段螺旋约几个残基"。这层换算在做蛋白质建模、表达纯化、估算泳道分子量时非常常用。
aa_per_spiral = 3.6 pitch = 0.54 # nm,每圈轴向螺距 def spiral(n): turns = n / aa_per_spiral return turns, turns * pitch for n in [40, 100, 400]: turns, length = spiral(n) print(f"{n:>3} 残基 → {turns:.1f} 圈 α 螺旋,轴向约 {length:.0f} nm,分子量约 {n*110} Da") # 球状蛋白"半径 vs 残基数"的经验律估(radius ~ 1.33 * N^0.33 nm) def sphere_radius(n_res): return 1.33 * n_res ** 0.33 for n in [100, 300, 1000]: print(f"约 {n:>4} 残基 → 估算球状半径 {sphere_radius(n):.1f} nm")
当分子量反推残基数,或用经验律估一个结构域的大小,就能判断"这条蛋白该长成多大的一坨"。凡与凝胶电泳、凝胶过滤层析打交道的人,都靠这类换算把"泳道上的条带"翻译成"分子大概是多大、几个亚基"。
三、折叠的驱动力:疏水效应与分子伴侣
折叠最主要的"发动机"是疏水水合:溶液里的水想少"供养"非极性残基,于是那些疏水侧链被挤进分子内核,把亲水带电侧链留在表面。这与第 1 章讲的两亲性同一源头。下面的算例演示"疏水暴露面积越小、溶度越占优"如何单向推动折叠。
# 疏水骨架进水的"惩罚"驱动折叠:表面积越小越占优 def free_penalty(surfaceA2, gamma=0.03, T=310): # 疏水表面与水接触的自由能代价,kcal/mol 量级 R = 1.987e-3; kcal = 0.018 * surfaceA2 # 每 A2 表面约 18 cal/mol return kcal for area in [2000, 6000, 12000]: print(f"暴露疏水面积 {area:>6} Ų → 折叠代价约 {free_penalty(area):.0f} kcal/mol")
展开态暴露大量疏水面积,折叠则把它们埋进核内、大幅削减这一代价——这就是漏斗往低能走的"引擎"。但折叠也不是随意降落,而是一条"漏斗"状能量路径(下图)。分子伴侣(如热休克蛋白)并不告诉链该怎么折,而是"罩住"折叠中的链,防止它误聚成无活性的大块。
图 2-1 蛋白质折叠漏斗
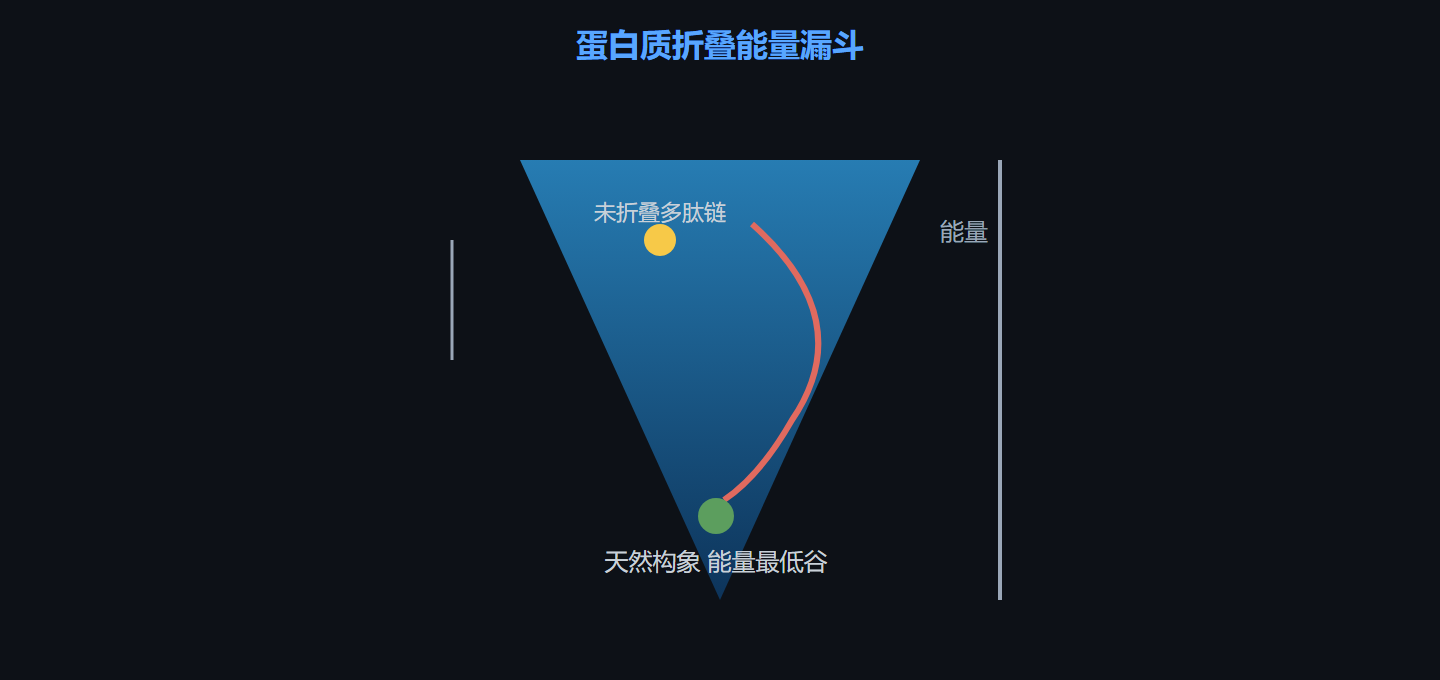
漏斗图传达的是:折叠并不是在所有构象里随机乱逛,而是朝更低自由能的方向收敛;中途的错误产物会被伴侣兜住重折。这也解释了为什么温度稍高就易出错——能量波动把链推离漏斗底部。而二硫键则把成熟的分泌蛋白构象"焊固",正如第 2.1 节所讲。-S-S- 一旦形成,即使后来局部张力存在也会被锁住,因此内质网里氧化环境+伴侣+二硫键三重协作决定分泌蛋白最终形态。
四、错折叠即疾病
若折叠失败或分子伴侣负荷过重,疏水区域互粘会聚成错误聚集物。阿尔茨海默病的 β 淀粉样蛋白沉积、疯牛病致病的朊蛋白,都属于"某个蛋白的错折叠/错构象传染"。下面量化"淀粉样纤维一把就烧断还是越堆越稳"的临界性。
def aggregate_growth(n, k_on, k_off): # 极简成核-延伸:净值 = 生长 - 解离 return k_on * n - k_off for k_on, k_off in [(2.0, 1.0), (1.0, 1.0), (1.0, 2.0)]: net = aggregate_growth(100, k_on, k_off) print(f"k_on={k_on} k_off={k_off} → 每单位时间净增 {net:+.1f}({'倾向延伸' if net>0 else '倾向解散' if net<0 else '临界' })")
当"加上去"比"掉下来"快,聚集就越滚越大并最终自催化扩增——这正说明淀粉样沉积一旦越过某个核化门槛就变得极难逆转,也解释了这类病的病程为何"拖得越久越重"。要理解淀粉样纤维为何难缠,也绕不开氢键主导的 β 折叠重排:大量平行的 β 片在整个纤维长度上靠氢键彼此咬合,异常牢固。
本节要点回顾
- 四个层级:一级序列、二级(α 螺旋 β 折叠)、三级三维形态、四级亚基组装。
- 疏水驱动折叠:非极性侧链入核、极性带电侧链在水面,漏斗模型由能量主导。
- 可算的换算:约 110 Da/残基、3.6 残基/圈、球状半径经验律,把分子量与长度落到直觉。
- 伴侣与二硫键:帮助折叠与反馈错误路线,而非指定构象;分泌蛋白尤赖二硫键。
- 错折叠即疾病:淀粉样、朊病毒是"同一个序列、另一套折法"的临床证例。