2.4 酶的催化机制与活性中心
2.4 酶的催化机制与活性中心
本节摘要:酶是蛋白质催化剂,活性中心是它"动手"的地方。酶不改变反应平衡,只降低活化能,从而让反应快上几个到十几个数量级。本节用阿伦尼乌斯思路算一算"同样的温度、活化能降一截,速度能翻多少倍",再拆解活性中心稳定过渡态、提供酸碱、形成共价中间体这些机制,并说明辅酶如何在活性中心"输血"。最后落到组织特异酶作临床标记、酶抑制剂作药物这两个推演上。
你将掌握
阅读完本节,你应当能够:
- 解释活化能、过渡态与反应速率的关系
- 用算例说明"降低活化能一小步,速率飙升一大截"
- 说出酶稳定过渡态、提供酸碱、共价催化的机制要点
- 判断一种酶为什么能专一识别某种底物(诱导契合)
- 区分辅酶与辅基,说明它们在异构化/转运基团中的角色
一、为什么普通化学慢,酶却极快
多数生物化学反应在室温下的自发速度慢得可怜(可能要数百年),只因为分子要先翻过一道"活化能"的山脊。温度低、碰撞难得、正确取向更难得。酶的价值就在这里:它握着一个能精准"托住过渡态"的口袋,把这座山脊削低,反应随之指数级加快。
import math def rate_ratio(activation_drop_kJ, T=310): R = 8.314e-3 # kJ/(mol·K) return math.exp(activation_drop_kJ / (R * T)) for drop in [20, 40, 60]: print(f"活化能降低 {drop} kJ/mol → 速率约增加 {rate_ratio(drop):.1e} 倍")
算例显示活化能降二三十千焦耳,速率就能涨好几个数量级。温度写成体温 310K,正是生理视角。"酶催化前后反应平衡不变,只是更快到达"由此得到量化解释——这也是"酶快在不改变 ΔG、只改写能垒高度"一句话的数值版。
二、活性中心如何"削低山脊"
活性中心是一小块三维裂隙,只容纳合适的底物(专一性来源)。削低活化能可借多条路:
- 稳定过渡态:口袋内部的电荷与氢键恰好"伺候"过渡态的那点别扭构象,让它不再那么难形成。
- 酸碱催化:活性中心的酸碱残基直接给底物质子或夺质子,改写反应路径。
- 共价中间体:酶先跟底物成共价,把一大步拆成两步小步,总体能垒更低。
- 诱导契合:底物结合让酶轻微"变脸",二者互相适配,这是对"锁和钥匙"模型的重要修正。
下面的算例把"拼出精确取向的碰撞怎么把无效碰撞洗成有效碰撞"粗略量化,体会活性中心是如何靠"对准"换速度的。
# 把反应速率看成 有效碰撞 × 取向正确的概率 def rate_est(collision, orient, barrier_ratio): return collision * orient * barrier_ratio # 溶液里频繁碰撞,但随机取向对得上的概率极低 free = rate_est(1e11, 1e-3, 1e-10) # 自由溶液 in_binding = rate_est(1e11, 1.0, 1e-4) # 被活性中心拿住并正确摆放 print("自由溶液有效反应速率大概:", free) print("活性中心对准后的大概速率:", in_binding) print("加速倍数 :", in_binding / free)
这段数量级对比告诉你:酶同时做了两件事——一是提高局部浓度(把底物聚集到口袋附近),二是把随机碰撞变成定向命中(诱导契合后的正确取向),二者相乘才是"快上下亿倍"的来源。正因为这些机制都在空间上一一铺开,才需要一个活动中心来精确组织它们。
顺带厘清术语:有些酶的催化需要辅助分子——辅因子有时是金属离子,辅酶则常是起运载作用的有机分子(如 NAD+、辅酶 A),它们往返于活性中心"送货"。无需明记每一个名字,先记住"酶负责构思,辅酶负责挪东西"。
三、临床与实验印证:专一性要算账,也能当"标记"
酶的专一性虽好,却不是白给。要识别特定底物就得在活性中心为它"量身定制"结构和电荷,这在进化与表达上都是成本。临床上缺血性心肌病时,肌钙蛋白这种"组织特异的酶(蛋白)"能帮医生定位损伤——正因为它只在心肌高表达,特异"抓"的是心脏损伤信号而不是全身到处都有。
def ratio_of_two(cardiac, skeletal): y, z = 200, 5 # 正常值(示意 U/L) return cardiac / skeletal print("损伤后心肌/骨骼标志物比:", ratio_of_two(150, 4))
只要目标蛋白在"该组织"和"别的组织"的表达丰度差足够大,测定它在血里的峰就能辅助定位损伤部位。同理,肝脏特有的转氨酶(ALT)升高提示肝细胞损伤,就成了"查肝"的常规;一处特异性判断,正是"组织特异表达"这种生化分工化作临床工具的体现。
另一方面,药物设计的半壁江山就是"找一种酶的抑制剂"。下一节会把"抑制什么、按住多紧"变成精确的动力学参数,这也是抗真菌药、他汀类、抗病毒药背后的通用打法。
图 2-3 酶降低活化能的能量面貌
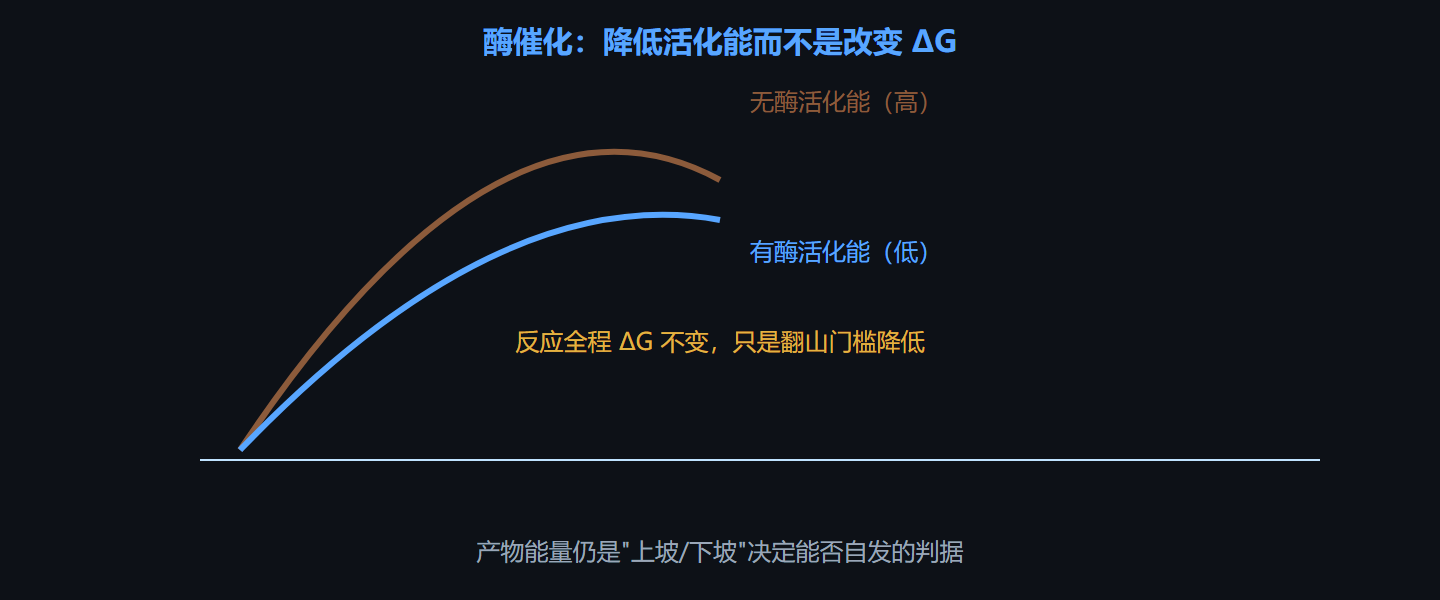
酶的贡献在"把山头削低":同等条件下反应速率暴涨,但热力学方向(ΔG 正负)不受酶左右。
本节要点回顾
- 只降能垒不改平衡:酶缩短到达平衡的时间,但平衡点由 ΔG 决定。
- 可算的加速:活化能降低二三十千焦 /mol,速率可上扬几个数量级。
- 机制多样:稳定过渡态、酸碱、共价、诱导契合,专一性由此而来。
- 数量级来源:高局部浓度+正确取向相乘,才支撑"快上亿倍"的宣称。
- 辅酶/辅基:运载基团与金属元件,是活性中心之外的"输血工"。
- 临床落点:组织特异酶(肌钙蛋白、ALT)作位点标记,酶的抑制剂作药,都由专一性买单。