2.3 蛋白质的功能多样性
2.3 蛋白质的功能多样性
本节摘要:蛋白质家族承担结合、催化、运输、结构支撑、运动、免疫、信号转导等几乎一切生命职能。本节不逐条罗列,而是抓住"结合"这一共同语言:多数蛋白质通过与非共价配体(底物、离子、激素、DNA)的结合发挥功能,而结合强弱用 Kd(解离常数)来量度。本节给出两段 Kd 换算配体占位的算例,并借血红蛋白的氧合/运输、抗体识别、肌动蛋白运动简介各自分工。
本节导读
阅读完本节,你应当能够:
- 说出蛋白质承担的主要功能分类
- 理解 Kd 的定义并换算"一半位点被占据"的配体浓度
- 用解离常数判断结合亲和力高低与占位率
- 用血红蛋白解释协同性结合对运输效率的意义
- 说明结构蛋白与运动蛋白如何靠相互作用撑起形态与位移
一、功能多,但都从"结合"起步
蛋白质林林总总似乎各有千秋,剥开看大多是"某一块表面识别并抓住某个东西":酶抓住底物,抗体抓住抗原,转运蛋白抓住离子与代谢物,受体抓住激素,转录因子抓住 DNA 双链的特定序列。所谓功能,很多就是"在哪、抓什么、抓得多紧"。
按角色可把蛋白质粗分成几大人设:酶(催化)、转运蛋白(hemoglobin、载体蛋白)、结构蛋白(胶原、角蛋白)、运动蛋白(肌动蛋白、肌球蛋白)、免疫蛋白(抗体、补体)、受体与信号蛋白(接激素、传信号)、调控蛋白(转录因子、阻遏物)。掌握了"结合 + 构象变化"这把钥匙,几乎全部这些角色都能被同一套语言读懂。
二、Kd 可算:一个判断"占住没"的工具
解离常数 Kd = (游离蛋白×游离配体) / 复合物。Kd 数值越小,说明结合得越牢。当配体浓度恰好等于 Kd 时,蛋白一半的位点被占满。下面用双重循环把"亲和力 × 配体浓度"地整齐列一遍,读起来一目了然。
def bound_fraction(free_ligand, Kd): return free_ligand / (free_ligand + Kd) print("占位率 = L/(L+Kd)") for Kd in [1e-3, 1e-6, 1e-9]: # 三种亲和力 row = [] for L in [1e-9, 1e-6, 1e-3]: row.append(f"{bound_fraction(L, Kd):5.0%}") print(f"Kd={Kd:6.0e} L=1e-9/1e-6/1e-3 → {', '.join(row)}")
从输出能读出生理规律:亲和力越高(Kd 越小),越低的配体浓度就能让结合接近饱和;而亲和力低又需要高配体才能起效。抗体-抗原结合常进入纳摩尔甚至皮摩尔级别(Kd ≈ 1e-9–1e-12 M),所以极微量抗原也能被抗体敏感地抓到——这是免疫检测灵敏度的分子基础。转录因子与 DNA 的 Kd 常在微摩尔到纳摩尔,因而需要特定序列上浓度都够才稳定结合。
三、血红蛋白:运输 + 协同的教科书
血红蛋白的四级结构让四个氧结合位点之间有协同性:第一个氧的结合会使其余位点更容易结合(正协同),宏观表现就是氧解离曲线呈 S 形。这让血红蛋白在肺部高氧区"抢"氧、在组织低氧区"大方放氧"。
def hill_frac(pO2, P50, n): return (pO2**n) / (pO2**n + P50**n) P50 = 26 for n in [1.0, 2.8]: lo = hill_frac(20, P50, n) hi = hill_frac(100, P50, n) print(f"n={n}: 组织20mmHg占位{lo:.0%} 肺100mmHg占位{hi:.0%} 释氧差{hi-lo:.0%}")
协同(n=2.8)让高低氧两种状态下占位差显著拉大——氧气"该放要放、该拿要拿"更彻底。对照组 n=1(无协同)释氧差明显收窄,说明四聚体结构换来了实打实的运输效率。而 2,3-BPG、H+、CO2 均是异位效应物:它们结合在别处降低氧亲和力、把曲线右移,让运动/代谢旺的组织拿到更多氧——这是氧气供应链上"指挥棒"的量级说明。
四、抗体、结构与运动蛋白的分工速览
- 免疫识别:免疫球蛋白可变区表面像手套一样贴合抗原决定簇,亲和力决定中和有效性(流感疫苗效价高低常就差在一个表位亲和)。
- 结构支撑:胶原蛋白三股螺旋互相缠绕,抗拉伸极强,是骨与皮肤的回弹基础。
- 运动蛋白:肌动蛋白与肌球蛋白把化学能(ATP)变成定向位移,肌肉收缩、细胞游走都靠这对经典组合。
下面的算例把"肌球蛋白一次 ATP 水解的机械功"估算出来,感受能量怎么被换成位移。
ATP_kJ = 30.6 # 水解 1 mol ATP 的自由能变,kJ work = ATP_kJ / 6.02e23 * 1000 # 单分子可用的能量,fJ 数量级 displacement_nm = 8.0 # 一次摆臂约 5-15 nm print(f"单个 ATP 水解可做功约 {work:.1e} fJ") print(f"推动蛋白摆臂约 {displacement_nm} nm——一台分子马达")
肌球蛋白每次水解一个 ATP 就完成一次"摆臂",效率高到像一台分子马达,称得上把"结合"升级为"干活"的终极例子:先是肌动蛋白被抓住,再借 ATP 水解驱动构象变化产生顺向位移,这正是肌肉收缩的微观本质。
图 2-2 蛋白质功能的七大分工
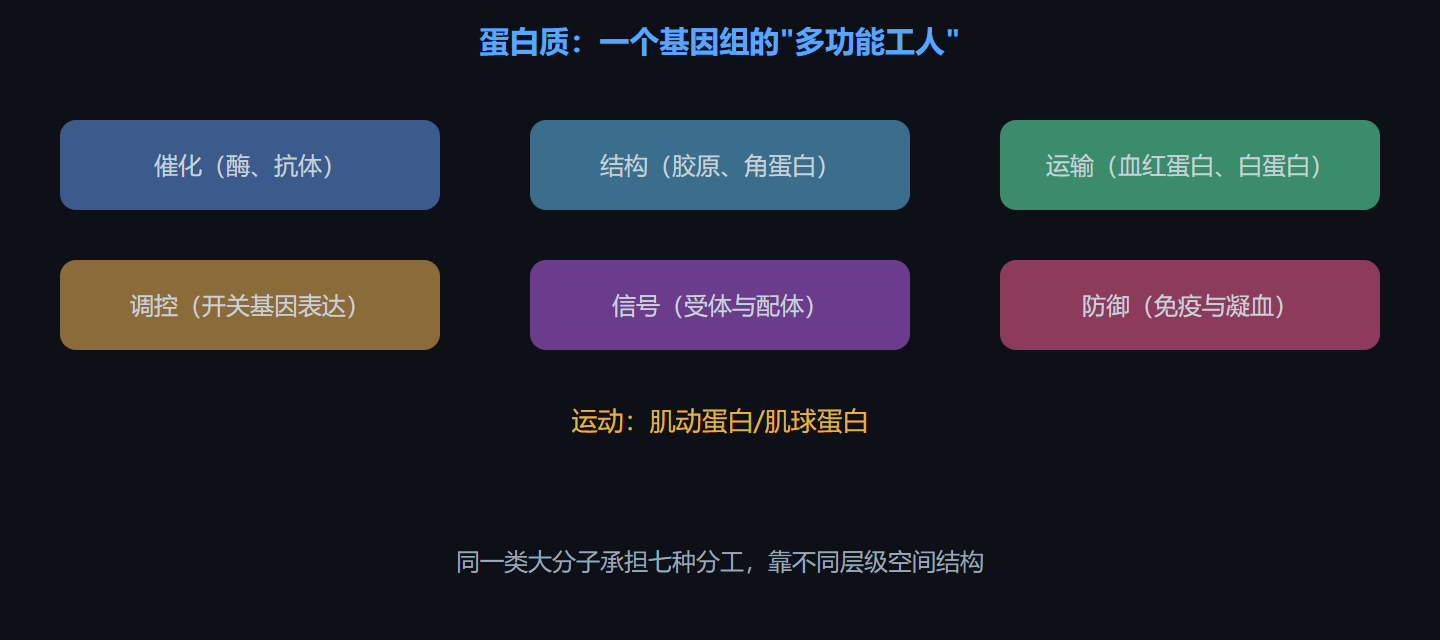
由氨基酸序列决定的空间结构不同,蛋白质被锻造出催化、结构、运输等不同角色,这是"结构决定功能"的展开。
本节要点回顾
- 功能多样但共通"结合":识别底物、抗原、离子、激素、DNA 皆靠非共价相互作用。
- Kd 定亲和:Kd 越小结合越牢;配体浓度 = Kd 时占位一半。
- 亲和力决定灵敏:抗体纳摩尔级亲和,支撑免疫检测;转录因子结合需序列+浓度双满足。
- 血红蛋白协同:S 形氧解离曲线靠四亚基协同,让"拿得下也放得开"。
- Hill 方程可算:n>1 表明正协同,放大器了释氧差,2,3-BPG 等异位调节右移曲线。
- 工程落点:亲和力与占位曲线贯穿药物、疫苗、激素、DNA 识别全链路。