4.1 糖酵解与糖异生
4.1 糖酵解与糖异生
本节摘要:糖酵解在胞质里把一分子葡萄糖拆成两分子丙酮酸,净赚两个 ATP、两个 NADH,是所有细胞都能跑的"保底供能线"。糖异生则在肝/肾里把乳酸、甘油、部分氨基酸变回葡萄糖,供大脑等依赖血糖的器官。二者看似互为逆向,实则在一二三号步各有不同酶,下方有详账。本节将一磅一磅把"无氧净得两个 ATP"算给你看。
你将掌握
阅读完本节,你应当能够:
- 说出糖酵解三阶段(投资、裂解、回收)及十个酶的主要步
- 核算无氧与有氧两种结局下糖酵解的 ATP/NADH 净得
- 解释葡萄糖→葡萄糖-6-磷酸为什么是"锁住"的一步
- 说明糖异生的三个绕行步骤为何不可逆、
- 指出"底物循环"与"放热上加"在血糖调节里的取舍
一、投资、裂解、回收:糖酵解三段账
把十步酶促反应整理成三个阶段最省脑力:
- 投资阶段:葡萄糖先被两次磷酸化、又经历异构化与重排,消耗两个 ATP。
- 裂解阶段:六碳果糖-1,6-二磷酸裂成两个三碳的磷酸丙糖。
- 回收阶段:两个三碳分子各走几步,产生四分子 ATP 与两分子 NADH。
算总账就把投资与回收加总:投入 ATP=2,产出 ATP=4,净得 ATP=2。
# 糖酵解 ATP 净得 atp_in = 2 # 前半段消耗 atp_out = 4 # 后半段每个三碳产2ATP × 2 nadH = 2 net_atp = atp_out - atp_in print("糖酵解净得 ATP:", net_atp) print("同时产出 NADH:", nadH) # 无氧 vs 有氧:NADH 去处 print("无氧(乳酸发酵)把丙酮酸还原成乳酸 回用NADH,净得仍为", net_atp, "ATP") print("有氧则 NADH 送线粒体氧化,2 NADH 约再折算若干ATP")
关键点:无论哪种结局,糖酵解本身只在胞质净得两个 ATP,差别在于 NADH 能否进城变成更多 ATP。这也是"肌肉缺氧只榨出两个 ATP"的分子解释。
二、三个不可逆步:糖酵解的"门钉"
十步里有三步 ΔG°′ 明显为负,几乎不可逆:己糖激酶把葡萄糖磷酸化锁在胞内;磷酸果糖激酶-1(PFK-1)是最重要的限速步;丙酮酸激酶收尾。细胞调控就掐在这三处。特别是 PFK-1,被 ATP、柠檬酸抑制,被 AMP、果糖-2,6-二磷酸激活——它是"能量电量计"最直接的操作对象。
# 不可逆步的直觉:ΔG°′ 为负越多,越"一路下坡" steps = {"己糖激酶": -16.7, "PFK-1": -14.2, "丙酮酸激酶": -31.4} for k, v in steps.items(): print(f"{k}: ΔG°′ ≈ {v} kJ/mol (强下坡,难倒车)")
越下坡的一步越难被逆向做到(因为要额外输入能量去推),这正是"糖异生必须绕行而非逆向还原这三步"的原因。
三、糖异生:绕开那三道门钉
糖异生把乳酸、甘油、氨基酸汇成葡萄糖,主要场所是肝。它不抄近道逆向糖酵解,而是用四个不同的酶"绕"过三处不可逆点,成本是要多耗 ATP 与还原当量。例如从丙酮酸上葡萄糖,要先在线粒体把丙酮酸→草酰乙酸→磷酸烯醇丙酮酸,再沿糖异生特有的糖原途径返程。
下面的算例把它"贵"在哪算出来:一点也不像糖酵解那样靠拆分子赚钱。
# 粗略:糖异生从丙酮酸造葡萄糖,净消耗能量 cost_atp_gtp = 6 # 6 个高能磷酸当量 cost_nadh = 2 print(f"糖异生大约要净耗 {cost_atp_gtp} 个高能磷酸当量与 {cost_nadh} 个NADH") print("对比糖酵解净得 2 ATP —— 一个在建楼、一个在拆楼")
这样一算就明白:饥饿时肝宁可花掉六枚"邮票"去造糖,也要优先喂饱靠葡萄糖活着的大脑与红细胞。这是生存优先于效率的典型设计。
四、底物循环与"白白转圈"的代价
糖酵解与糖异生同时开,会形成无效底物循环(如 F-6-P→F-1,6-P₂ 与水解回 F-6-P,两个方向各自 ΔG 都为负,白白消耗 ATP)。细胞靠别构调控不让它们同时满开,但在某些场景如上臂、棕色脂肪里,"小小转圈"反而用来产热。理解底物循环,等于理解了为什么"代谢'打架'也是有代价的调控手段"。
五、临床落点:乳酸与低氧
剧烈运动时肌肉氧气供不上,能量靠胞质糖酵解应付,NADH 把丙酮酸还原成乳酸回用——所以你跑完会腿酸。乳酸经循环送到肝回收成葡萄糖,这就是"科里氏循环"。若缺血组织大量生成乳酸,血乳酸升高则是代谢性酸中毒的常见线索,与第 3 章阴离子间隙照应。
图 4-1 糖酵解十步的两大阶段
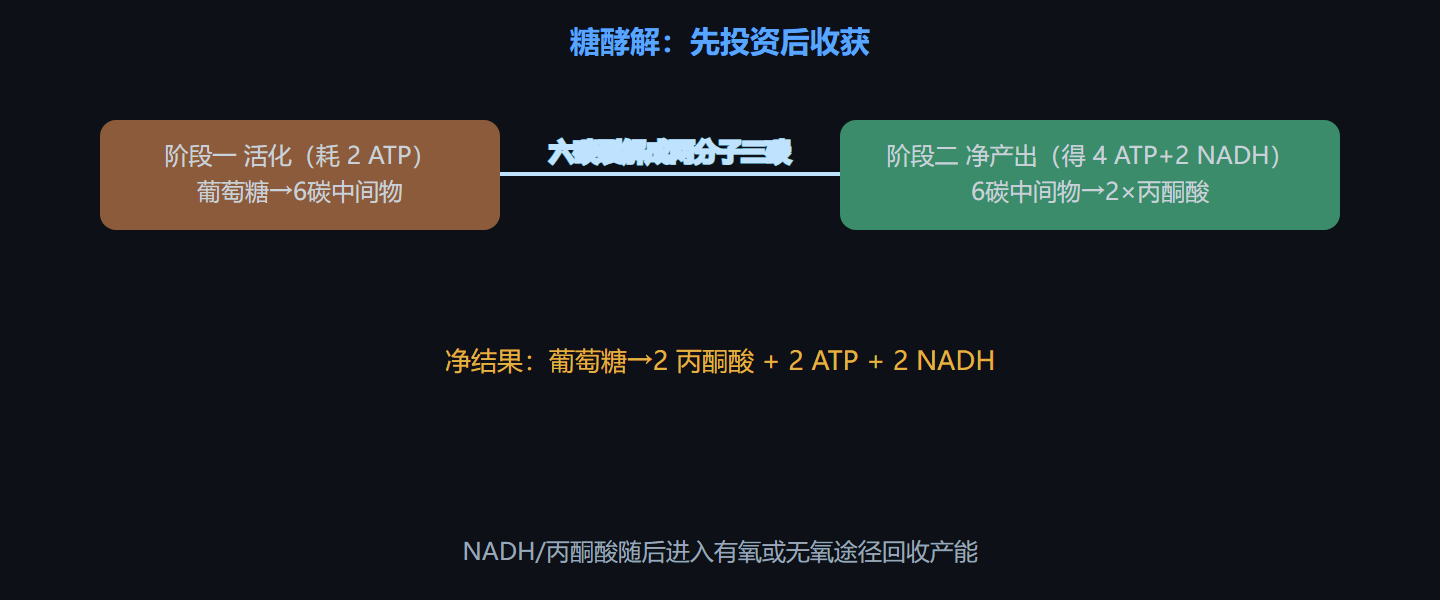
糖酵解前半是"投资"消耗 ATP 活化,后半是"回收"产生 ATP 与 NADH,净得是后面氧化磷酸化的燃料。
本节要点回顾
- 三段账:投资2、裂解、回收4 → 净得2 ATP + 2 NADH。
- 三不可逆步:PFK-1 是主要的限速阀门,受 ATP/AMP/柠檬酸钳制。
- 糖异生绕三道门:肝耗六枚高能币造糖,优先供脑。
- 底物循环有代价:同时双开浪费 ATP,但可用来产热,也是调控开关。
- 临床:乳酸升高→酸中毒线索;科里氏循环把乳酸回炉。