2.2 核酸:遗传信息的编码与传递
2.2 核酸:遗传信息的编码与传递
本节摘要:核酸是储存和传递遗传信息的生物大分子,分为脱氧核糖核酸(DNA)和核糖核酸(RNA)两大类。DNA以双螺旋结构存储细胞的全部遗传信息,RNA则参与信息的读取、传递和执行。遗传信息从DNA到RNA再到蛋白质的流动构成了中心法则,这是细胞生物学最基本的原理之一。
两米长的 DNA 如何装进微米级的细胞核
人类的每个细胞核里装着约31亿个碱基对。把这么多DNA拉直,总长接近两米;而细胞核的直径只有约5微米。这个悬殊的比例说明一件事:遗传信息的储存不只是"序列怎么写"的问题,还有"空间怎么放"的问题。理解了压缩包装,你才能真正明白染色质、染色体和基因表达调控为什么长成今天的样子——包装不是被动地"塞进去",而是主动参与基因的开与关。
学习目标
阅读完本节,你应当能够:
- 画出DNA双螺旋的结构特征,标注碱基配对规则
- 列举DNA和RNA在糖基、碱基和结构上的至少四个差异
- 描述中心法则中转录和翻译的基本过程
- 解释为什么DNA适合做遗传信息的长期储存分子
DNA:双螺旋里的信息编码
1953年,Watson和Crick提出了DNA的双螺旋模型——这是分子生物学史上最重要的一刻。这个模型基于两个关键实验数据:Chargaff发现的碱基比例规律(A=T,G=C)和Franklin拍摄的X射线衍射照片。
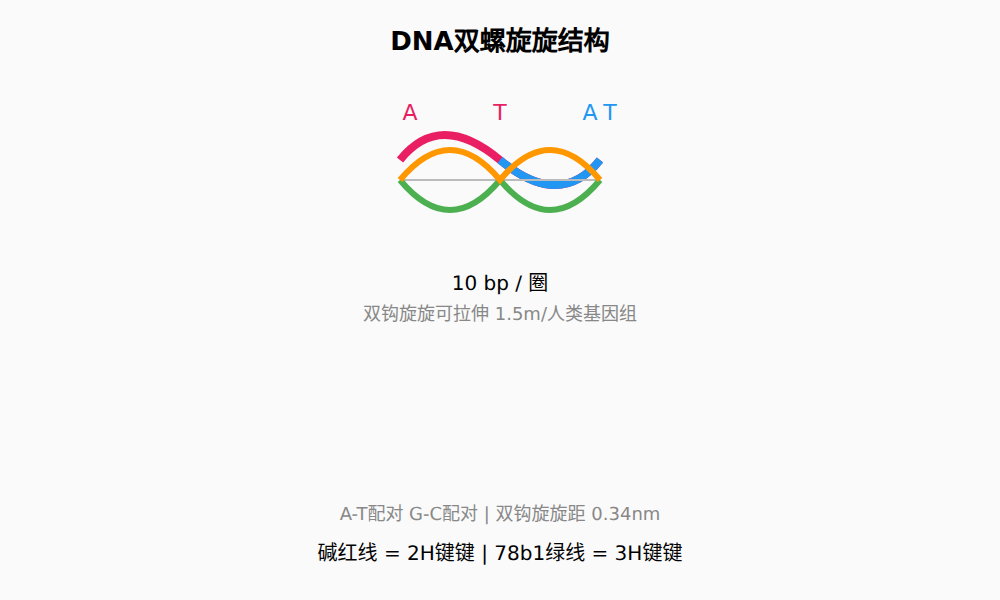
DNA分子由两条反向平行的多核苷酸链组成。每条链的骨架是交替的脱氧核糖和磷酸基团,四种含氮碱基(腺嘌呤A、胸腺嘧啶T、鸟嘌呤G、胞嘧啶C)从骨架上伸出。两条链通过碱基之间的氢键配对:A与T配对(两个氢键),G与C配对(三个氢键)。因为碱基配对有严格的对应关系,知道一条链的序列就能推断另一条——这叫做互补性。
两条链围绕同一个轴缠绕成右手螺旋,直径约2纳米,每圈螺旋约10个碱基对,相邻碱基对的间距为0.34纳米。
DNA为什么适合做遗传信息的储存分子?几个关键原因:
- 双链结构提供了冗余——如果一条链受损,互补链可以作为修复的模板
- 碱基配对保证了复制的忠实性——子链的序列完全由母链决定
- GC含量越高,双链越稳定——因为G-C对有三个氢键而A-T对只有两个
- 磷酸-糖骨架在化学上非常稳定——在正常生理条件下DNA不容易降解
人类基因组包含约31亿个碱基对。如果把这些DNA分子拉直,一个细胞核中的DNA总长约2米——而细胞核的直径只有约5微米。所以DNA必须被高度压缩包装:DNA缠绕在组蛋白上形成核小体,核小体进一步折叠成染色质纤维,最终形成在细胞分裂时可以看到的染色体。
RNA:多面手分子
RNA在化学结构上与DNA有三个关键差异:
| 特征 | DNA | RNA |
|---|---|---|
| 糖基 | 脱氧核糖(缺2'-OH) | 核糖(有2'-OH) |
| 碱基 | A, T, G, C | A, U, G, C(尿嘧啶U替代胸腺嘧啶T) |
| 结构 | 通常是双链双螺旋 | 通常是单链,可局部形成双链区域 |
RNA那个多出来的2'-OH基团不是小事。它使RNA在化学上比DNA活泼得多——更容易被水解。这意味着RNA不适合做长期的信息储存载体(DNA更适合),但更适合做短期功能分子。
细胞内有多种不同功能的RNA:
- 信使RNA(mRNA)——携带从DNA转录来的遗传信息,作为蛋白质合成的模板
- 转运RNA(tRNA)——在翻译过程中把正确的氨基酸运送到核糖体
- 核糖体RNA(rRNA)——核糖体的结构骨架和催化核心(核酶活性)
- 小核RNA(snRNA)——参与mRNA前体的剪接
- 微小RNA(miRNA)——调控基因表达,通过与mRNA结合抑制翻译
- 长非编码RNA(lncRNA)——多种调控功能,目前仍在研究中
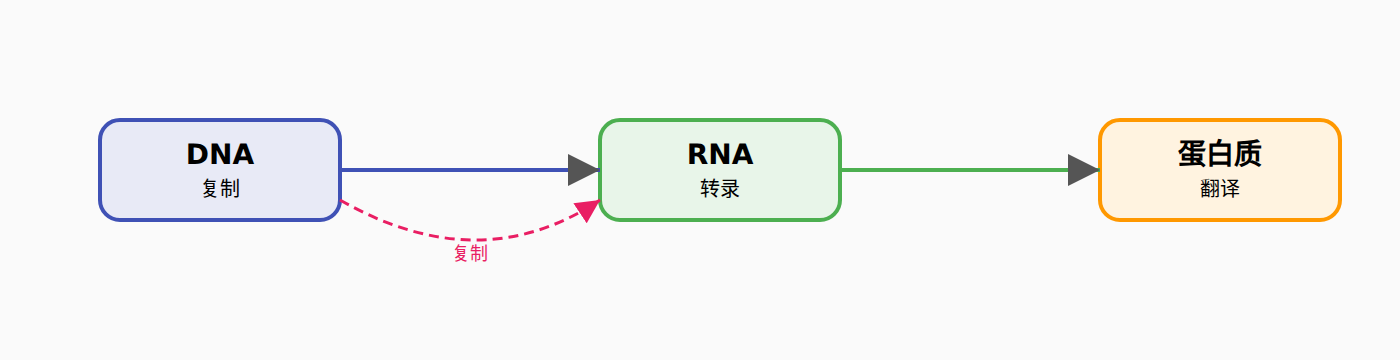
中心法则说信息流向是DNA→RNA→蛋白质。但后来的发现让这个单向箭头变得更复杂:逆转录病毒(如HIV)可以用RNA做模板合成DNA(逆转录);RNA病毒可以直接用RNA做遗传物质;有些RNA甚至具有催化功能(核酶)。所以中心法则更像一个有分支的网络,而不是一条直线。
图:中心法则的信息流向
碱基序列如何编码蛋白质
遗传信息的编码规则叫遗传密码。每三个相邻的核苷酸构成一个密码子,对应一个特定的氨基酸或终止信号。因为RNA有4种碱基,三个一组共有64种可能的密码子——其中61种编码氨基酸,3种是终止信号(UAA、UAG、UGA)。
密码子表是"冗余"的——多数氨基酸由不止一种密码子编码。比如亮氨酸有六种密码子,但色氨酸只有一种。这种冗余性不是浪费:它提供了一种缓冲机制——如果DNA突变改变了第三个碱基,编码的氨基酸可能不发生变化(同义突变),从而降低突变的有害效应。
核酸研究中的经典方法
要从分子层面研究核酸,科学家常用几种互补的技术:
- 凝胶电泳:DNA和RNA带负电荷,在电场中按分子大小迁移,小片段跑得快。结合染色(如溴化乙锭或SYBR染料)可以判断片段长度和纯度。
- Southern杂交:把电泳分离的DNA转移到膜上,用标记探针检测特定序列的存在,用于基因鉴定。
- 聚合酶链式反应(PCR):在体外指数级扩增特定DNA片段,是后续测序、克隆和检测的基础。
- DNA测序:确定碱基的精确顺序。现代高通量测序一次可以读取数十亿碱基,让"读懂基因组"成为常规操作。
这些方法将在第12章详细展开。这里提前提到它们,是为了让你意识到:我们关于DNA结构、复制和表达的知识,几乎全部来自对核酸进行"看得见、分得开、测得准"的分子操作。学习本节时,把结构特征与这些检测手段对照起来,会更容易记住。
一个常见误区是以为"核酸=DNA"。实际上RNA同样是核酸,而且种类和功能远比DNA多样。判断一种分子是不是核酸,看它是否由核苷酸通过磷酸二酯键连接即可——不需要它一定是双链。
要点回顾
- DNA是双螺旋结构,碱基配对规则A-T和G-C,通过互补性保证复制忠实性
- RNA比DNA多一个2'-OH基团,化学上更活泼,适合做功能分子而非储存分子
- 中心法则:DNA→RNA→蛋白质,但逆转录和RNA复制使信息流向更复杂
- 遗传密码由三联体组成,64种密码子编码20种氨基酸+3个终止信号
- 密码子的冗余性(简并性)降低了突变对蛋白质序列的影响
图:DNA双螺旋结构示意