2.3 生物膜脂质与小分子物质
2.3 生物膜脂质与小分子物质
本节摘要:生物膜的骨架由脂质分子构成,其中磷脂是主力。磷脂分子具有两亲性——亲水的头部和疏水的尾部——这种特性使它们在水环境中自发组装成双分子层。胆固醇嵌入膜中调节其流动性,糖脂参与细胞识别。水是细胞含量最多的物质,无机离子(钾、钠、钙等)参与维持膜电位和信号传递,碳水化合物既是重要能源也是结构材料。
一滴油在水面散开,藏着生物膜的起点
如果你往一杯水里滴一滴食用油,油不会溶解,而是浮在水面摊成薄薄一层。这个日常现象背后的物理,正是生物膜的起点:由两亲性分子组成的薄层,会自动把疏水部分藏起来、把亲水部分露出来。磷脂做的不是这件事的"终极版本"——它不仅能摊成单层膜,还能围成封闭的球(脂质体),细胞膜就是在此基础上加了蛋白质和糖之后的结果。理解了自组装,膜的所有性质都不再是死记硬背的结论。
学习目标
阅读完本节,你应当能够:
- 解释磷脂的两亲性如何导致双分子层的自组装
- 比较饱和脂肪酸与不饱和脂肪酸对膜流动性的不同影响
- 说明胆固醇在膜中的双重功能
- 列举水和三种关键无机离子在细胞中的功能
磷脂:两亲性分子的自组装
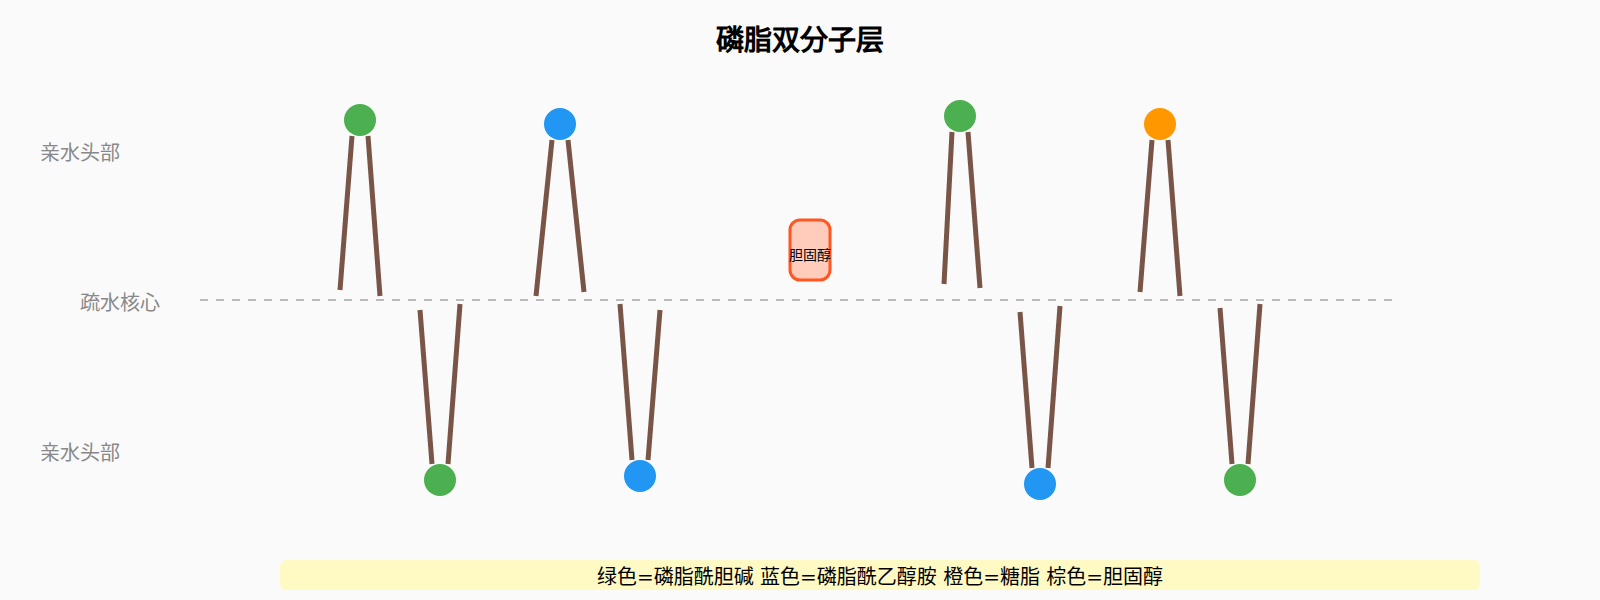
生物膜的核心结构是磷脂双分子层。磷脂分子的结构很有特点:一个亲水的(极性的)"头"和两个疏水的(非极性的)"尾"。
头部通常含有磷酸基团和一个小的有机分子(如胆碱、乙醇胺、丝氨酸或肌醇),可以和水分子形成氢键。尾部是两条脂肪酸链——可以是饱和的(没有双键,碳链挺直)或不饱和的(有顺式双键,碳链有弯折)。
把磷脂扔进水里,疏水尾部会自动避开水、朝向内部聚集,亲水头部朝外与水接触。如果磷脂浓度足够高,它们会自发形成双层膜——两层磷脂尾部相对排列,头部朝向膜两侧的水相。这个过程不需要消耗能量,是热力学自发过程。
这种自发自组装有一个重要推论:膜的破裂和修复也是自发过程——只要脂质分子存在,它们会自动回到双分子层排列。细胞的膜系统因此具有"自愈合"能力。
膜流动性:不是铁板一块
生物膜不是静态的固体层,而是一种二维液体——膜上的脂质分子可以在同一层内自由侧向扩散(侧向扩散系数约每秒1微米),偶尔在两层之间翻转(翻转运动比较少见,因为需要疏水尾部穿过极性的头部区域)。
膜的流动性受几个因素影响:
-
温度。低温下脂质排列紧密,膜变得刚硬(类似凝胶态);温度升高后脂质运动加快,膜变得柔软(液晶态)。两种状态之间的转变温度取决于脂质的组成。
-
脂肪酸的饱和度。饱和脂肪酸的尾部笔直,可以紧密排列,使膜更刚硬。不饱和脂肪酸的顺式双键造成尾部弯折,增大了分子间的间隙,使膜更柔软。这就是为什么冷血动物(和冬天的人类)需要更多不饱和脂肪酸——保持膜在低温下的流动性。
-
脂肪酸链长。短链脂质的尾部间作用力弱,膜更软;长链脂质使膜更刚。
-
胆固醇。胆固醇分子同时有一个小的极性头部(羟基)和一个大的疏水环状结构。它嵌入磷脂双分子层中,在高温下限制脂质过度运动(防止膜太软),在低温下阻止脂质紧密排列(防止膜太硬)。这就像一颗"流体缓冲器"。
图:磷脂双分子层结构示意
糖脂:细胞表面的"身份证"
除了磷脂,膜中还含有糖脂——脂质分子的头部连接着糖链。糖脂的糖链朝向细胞外侧,形成细胞表面的"糖被"(glycocalyx)。
糖被的功能主要是细胞识别。不同细胞类型有不同的糖链组合模式,就像不同的人有不同的指纹。免疫细胞通过识别糖链模式来区分"自己"和"异己"。ABO血型系统的差异就来自红细胞表面的糖链结构——A型血的细胞表面有N-乙酰半乳糖胺,B型有半乳糖,O型两者都没有。
水:生命最被低估的分子
水占细胞重量的70%左右。它的几个独特物理化学性质使它成为生命的理想介质:
- 极高的比热容——能缓冲温度变化,防止细胞因产热而迅速升温
- 高介电常数——使离子容易溶解,是良好的电解质溶剂
- 高表面张力——参与毛细现象和植物的水分运输
- 密度在4°C时最大——冰浮在水面上,保护水生生物过冬
- 氢键网络——既作为反应介质又参与蛋白质和核酸的结构稳定
关键无机离子
几种无机离子在细胞中的浓度差异极大,这种浓度差本身就是一种储能和信息编码方式:
| 离子 | 细胞内浓度(近似) | 细胞外浓度(近似) | 主要功能 |
|---|---|---|---|
| K+ | 约140 mM | 约4 mM | 维持静息膜电位,激活多种酶 |
| Na+ | 约12 mM | 约145 mM | 驱动继发性主动运输,动作电位 |
| Ca2+ | 约0.1微M | 约1-2 mM | 第二信使,触发肌肉收缩、分泌 |
| Mg2+ | 约0.5-1 mM | 约1-2 mM | ATP-Mg复合物的必需组分,核酸稳定 |
钙离子特别值得注意。细胞内游离钙浓度只有约0.1微摩(百万分之一摩尔浓度),比细胞外低近一万倍。这个巨大的浓度差使钙离子成为极其灵敏的第二信使——只需要少量钙离子流入细胞质,就能快速改变酶活性和基因表达。
脂质体:生物膜的工程化应用
理解了磷脂的自组装,就能理解一类重要的应用——脂质体。脂质体是人工制备的球形脂质双分子层囊泡,可以在内部包裹水溶性药物,在膜内嵌入脂溶性药物。
脂质体的价值在于它"长得像细胞膜":进入人体后不容易被免疫系统当作异物清除,而且可以被修饰——在膜表面连接抗体或配体,让脂质体只与特定细胞结合,实现靶向给药。新冠mRNA疫苗使用的脂质纳米颗粒(LNP)正是这一思路的延伸:带正电荷的脂质与带负电荷的mRNA结合,把它们安全送进细胞质。
脂质体还揭示了膜的一个工程学特性:双分子层是热力学最稳定的结构,所以脂质体在溶液中能长时间保持完整,也能在需要的位置与细胞膜融合、释放内容物。这也是细胞用膜泡运输大分子的物理学基础。
要点回顾
- 磷脂的两亲性使其在水环境中自发组装成双分子层,形成生物膜的基本骨架
- 膜流动性受温度、脂肪酸饱和度和链长、胆固醇含量的共同调控
- 糖脂的糖链构成细胞表面的识别标记,ABO血型就是糖链差异的典型例子
- 水的物理化学性质(高比热容、高介电常数、氢键网络)使它成为生命的理想介质
- 细胞内外离子浓度差(尤其是K+、Na+、Ca2+)既是储能方式也是信号编码方式