8.1 糖与脂质:能量的分子形态
8.1 糖与脂质:能量的分子形态
摘要:葡萄糖在溶液中大部分以环状半缩醛存在——第 5 章的"醛 + 醇 = 半缩醛"在分子内重演,并产生新的 α/β 端基异构体(变旋现象的根源)。糖苷键把单糖连成双糖与多糖。脂质则以长链脂肪酸与甘油酯为主体,两亲性驱动生物膜脂双层的自组装。
葡萄糖:一个分子三个知识点
课本上画的葡萄糖六元环,溶液里发生着三件事:
- 开链与环状平衡:C1 醛基与 C5 羟基分子内亲核加成,生成吡喃糖环(六元环,椅式,接近无张力的环己烷骨架)。平衡强烈偏向环状(水溶液中开链形不足 1%)。
- 新手性中心:成环使 C1 变成半缩醛碳,产生 α 与 β 两种端基异构体。C1 的 OH 与 C6 取代基同侧为 α、异侧为 β。
- 变旋现象:新配的 α-D-葡萄糖溶液旋光值会慢慢漂移,因为 α 开环回到开链形再闭环,可变 β——经开链形这座桥,两种环互相转化,直到约 36:64 的平衡。
图 8-1 葡萄糖的环状平衡与糖苷键
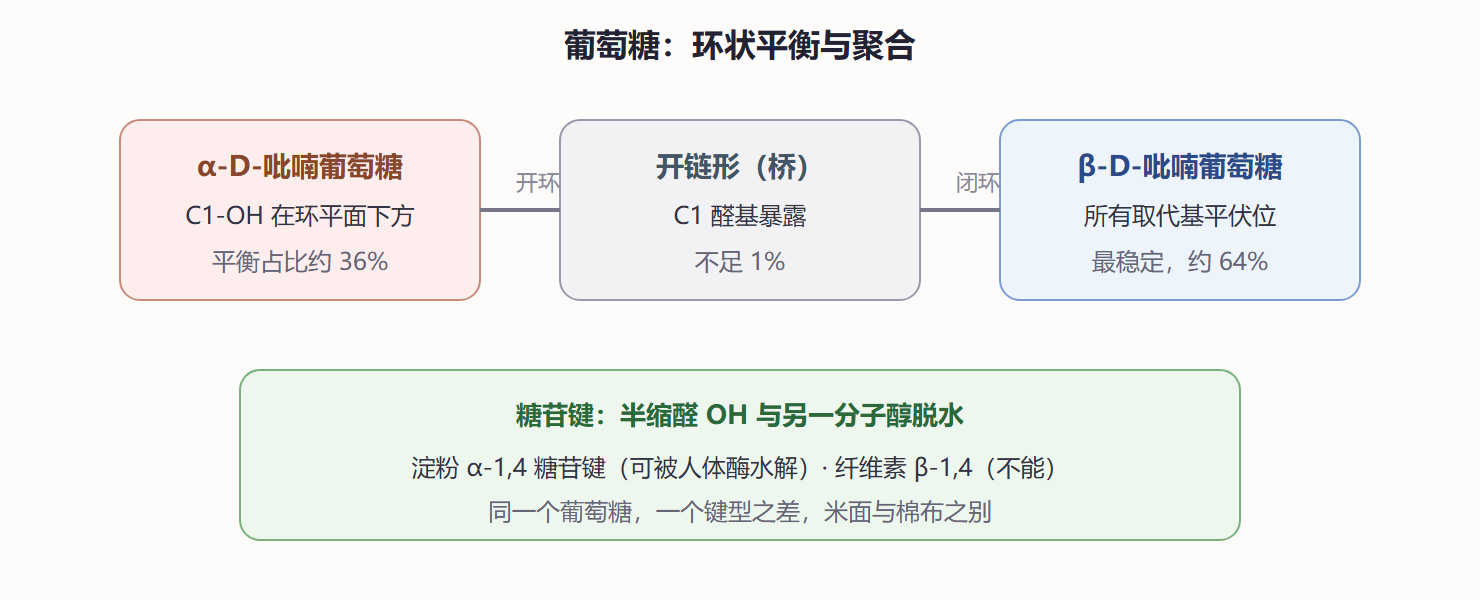
β-D-葡萄糖占优的原因值得咂摸:它的所有取代基都在椅式的平伏位——第 2 章构象分析的直接应用。生物分子偏好低能构象,物理有机规律在体内照常生效。
淀粉与纤维素的对照是糖苷键立体化学的教科书案例:两者都由葡萄糖缩合,仅 α 与 β 之差,人类只能消化前者(缺少水解 β 键的酶),牛则需要瘤胃微生物代劳。
还原性检验也回到开链形:Fehling 试剂、银镜反应都要求醛基——麦芽糖保留半缩醛 OH(有还原性),蔗糖两个单糖的异头碳都被糖苷键锁死(无还原性)。
脂质:两亲性自组装
甘油三酯 = 甘油 + 三个脂肪酸形成的酯(第 5 章酯化在生物体内的版本)。皂化反应把油脂变成肥皂:氢氧根水解酯键,产物脂肪酸钠一端亲水、一端亲油,自发聚成胶束,把油污包进内部带走。
磷脂更精妙:甘油两个位置接脂肪酸链(疏水尾),第三个位置接磷酸胆碱(亲水头)。两亲性 + 尾巴的疏水聚集,让磷脂在水中自发排成脂双层—— heads 朝外接触水,tails 藏在内——这就是所有细胞膜的由来,不需要任何"施工方",热力学自己完成组装。
不饱和度直接影响膜的流动性:脂肪酸链中的顺式双键打引入弯折,堆叠松散,膜更"软"。深海鱼类的膜脂不饱和度高,正是为了在低温维持流动性;黄油室温固态,则因为饱和链整齐堆叠(顺式双键也解释了天然植物油室温液态、部分氢化后变固态的原因)。
本节要点回顾
- 环状半缩醛是葡萄糖的主要形态,α/β 经开链形互变产生变旋
- β 构象优势来自全平伏取代,构象分析直接用于生物分子
- 糖苷键的 α/β 决定营养可及性:淀粉可消化、纤维素不可
- 还原性取决于开链醛基是否保留
- 两亲性驱动脂双层自组装;顺式双键调节膜流动性
动手计算:糖的"能量密度"账
葡萄糖完全氧化 ΔG°′=−2870 kJ/mol,ATP 水解 −30.5 kJ/mol,理论最大 ATP 数约 94,实际细胞产 30-32——能量效率约 33%,与内燃机同量级。糖原分支的设计意义用酶学数字说话:分支点每 8-12 个残基一个,磷酸化酶从非还原端逐个切葡萄糖-1-磷酸,分支让"可同时开工的端点数"指数上升——肌细胞需要 1 秒内动员葡萄糖时,这是架构级解决方案。
# 糖代谢能量账 dG_glc, dG_atp = -2870, -30.5 print(f"理论最大 ATP: {abs(dG_glc)/abs(dG_atp):.0f} 个") print(f"实际 32 个 -> 效率 {32*abs(dG_atp)/abs(dG_glc)*100:.0f}%") # 热力学上限与生物实现的差距——余量维持代谢可逆弹性
数据档案:糖与脂的结构-功能对照
| 类别 | 骨架特征 | 键型 | 功能定位 |
|---|---|---|---|
| 单糖 | D-醛/酮糖,pyranose 优先 | — | 能量与构建单元 |
| 双糖/多糖 | α/β 糖苷键 | 1→4, 1→6 | 储能(α)/结构(β) |
| 甘油三酯 | 甘油+脂肪酸 | 酯键 | 高密度储能 |
| 磷脂 | 甘油+2脂+磷酸 | 两亲性 | 膜骨架 |
| 萜类 | 异戊二烯拼装 | C-C | 色素/激素 |
# 人体储能的分子账本(kJ/g) stores = {"糖原": 17, "脂肪": 37, "蛋白质": 17} for k, v in stores.items(): print(f"{k}: {v} kJ/g") print(f"脂肪更高效的原因: 高度还原、无水储存(糖原带2/3重量的水)") # 分子结构直接解释生理分工
延伸讨论:为什么生命选择糖与脂的化学
糖的多羟基让它同时具备水溶、成键、识别三重功能——细胞表面抗原与血型差异全部由糖链书写;脂的两亲性则被膜的自组装"免费"利用。两者的化学都不是最强键,而是"可逆+可调制":糖苷键可被专一酶水解,酯键可在温和条件下代谢。生命分子的设计哲学与第 7 章合成策略的"选择性预算"异曲同工:不追求最稳定,追求可调度。乳糖不耐受、反式脂肪健康风险等日常议题,都能落到本节的结构-功能表上解释。
糖化学中一个精巧的识别案例收束本节:ABO 血型差异只在糖链非还原端的最后一个糖——A 型多一个 N-乙酰半乳糖胺、B 型换为半乳糖、O 型两者皆无。人体免疫系统识别的正是这一个糖的差别。单糖的种类不多(常见约十种),但连接方式(α/β、1→4 或 1→3、分支)构成的组合空间近乎无限——糖链被称为继核酸、蛋白质之后的第三类生命信息分子,理由在此。
脂质化学还有一个值得记住的工业化故事:不饱和脂肪酸的双键位置与构型决定营养与加工性能,反式脂肪(部分加氢的副产物)被证实升高心血管风险后,各国陆续禁用——替代工艺(酯交换、定向催化加氢)正是围绕本节"双键构型与反应性"的知识展开的。从分子结构到公共卫生政策,链条长但每环都是化学,这也是本册坚持用证据链写法的现实理由。
膜脂的相变温度也是个可算的工程参数:脂肪酸链每加一个 CH2 熔点升约 10-20°C,每个顺式双键降约 30-50°C——细菌靠调整链长与饱和度把膜维持在"液晶态"窗口,深海与温泉物种的膜脂组成差异由此而来。脂质不只是储能仓库,更是自带温控的材料,这一视角把本章与前一章高分子物理自然衔接。