8.2 氨基酸、蛋白质与核酸
8.2 氨基酸、蛋白质与核酸
摘要:20 种标准氨基酸除甘氨酸外都是 L 构型(S 构型为主),以两性离子形式存在,等电点时净电荷为零。氨基酸间脱水形成肽键——酰胺共轭带来的平面性(第 5 章)奠定了蛋白质骨架的几何。核酸以磷酸二酯键连核苷酸,碱基互补氢键与堆积力共同稳定双螺旋。信息从化学结构中自然涌现。
氨基酸:手性的标准件
氨基酸的 α-碳连着氨基、羧基、氢和侧链 R——四个不同基团,天然手性(甘氨酸的 R = H 除外)。生物体只使用 L 型,这让"R/S 与旋光无关、D/L 是构型标签"(第 3 章)有了最重要的实例。
两性化学集中在一个数字上:等电点 pI。溶液 pH 低于 pI 时氨基酸带正电(净 +1),高于 pI 带负电,等于 pI 时净电荷为零、溶解度最低、电泳不动。这一条性质撑起了蛋白质的等电聚焦纯化与酪蛋白在酸奶中的凝沉(pH 4.6 接近其 pI)。
20 种氨基酸按侧链分类记忆最省力:非极性(丙氨酸、亮氨酸等)、极性不带电(丝氨酸、半胱氨酸等)、酸性(天冬/谷氨酸)、碱性(赖/精/组氨酸)。侧链的官能团——羟基、巯基、氨基、羧基、咪唑——全部是第 5 章的老朋友。
肽键:平面性决定蛋白质几何
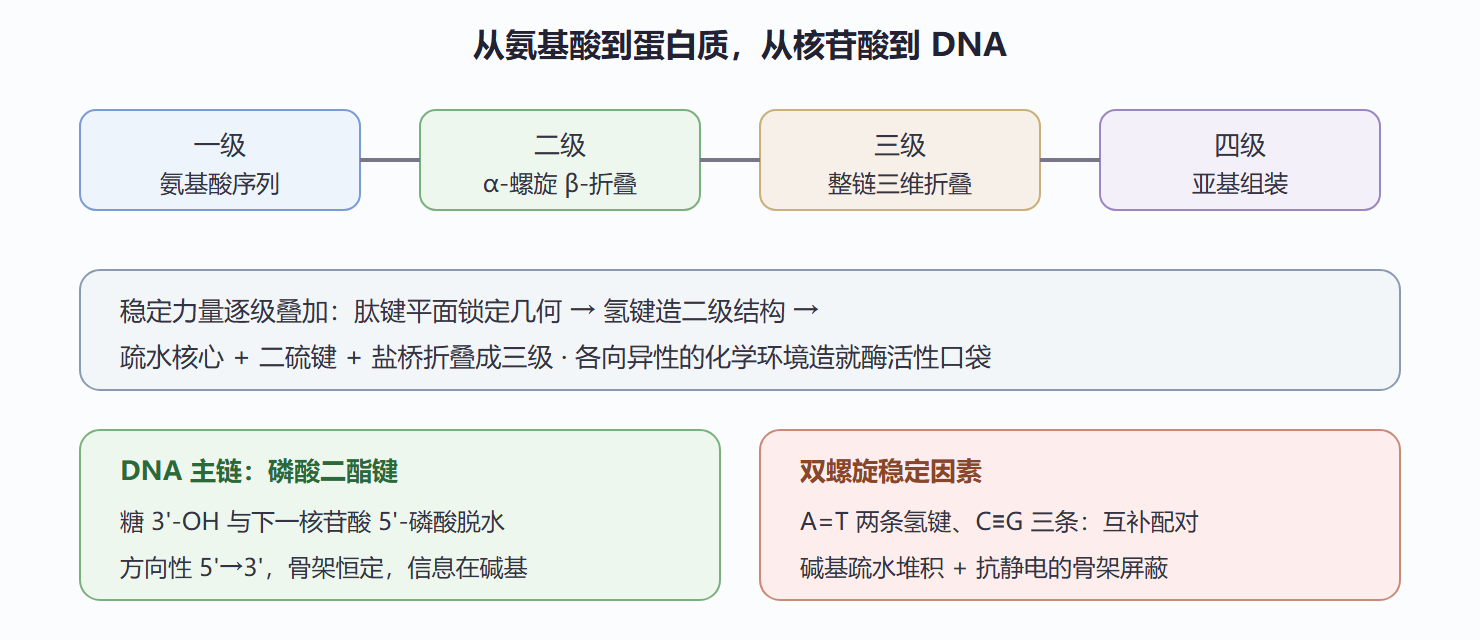
氨基酸的羧基与另一氨基酸的氨基脱水形成酰胺键(肽键)。第 5 章讲过:氮孤对与羰基共轭,C–N 具部分双键性、不可自由旋转、六个原子共平面。这个平面单元是蛋白质二级结构的铰链:
- 平面不能转,可转的只剩两侧的 N–Cα 与 Cα–C 键——蛋白质折叠的全部构象自由度由这两组二面角(φ、ψ)描述
- 肽键有反式偏好(约 1000:1),进一步收紧几何
- α-螺旋(每圈 3.6 个残基、氢键跨 4 个残基)与 β-折叠(平行/反平行链间氢键)就是 φ/ψ 取特定区段的周期解
图 8-2 蛋白质结构层次与核酸骨架
核酸:骨架恒定,信息在侧链
核苷酸 = 磷酸 + 戊糖 + 碱基。糖的 3'-OH 与下一个核苷酸的 5'-磷酸缩合,形成磷酸二酯键——又是一个第 5 章反应(成酯)的生物版。四条小结值得记住:
- 骨架完全恒定,可变的是 A/T/C/G 碱基序列——信息存储的理想载体
- A=T 两条氢键、C≡G 三条:GC 含量高的 DNA 解链温度更高,分子杂交的严格度可由此调温
- 双螺旋两条链反向平行、互补,这直接暗示了复制的半保留机制
- 核糖 2'-OH 的存在使 RNA 化学性质活泼(易水解、可催化)——RNA 世界假说的化学依据之一
三磷酸腺苷(ATP)也是核苷酸家族成员:它供能的方式是水解磷酸酐键(第 5 章酸酐反应性的延伸),释放的能量推动众多热力学不利的反应。
💡 关键直觉:生命大分子没有使用任何"新化学"——半缩醛、酰胺、酯、磷酸酐全是前面章节的反应;生命只是把它们组织在极致的立体化学与催化体系里。
本节要点回顾
- 氨基酸是 L 构型两性离子,pI 处净电荷为零、溶解度最低
- 肽键平面性来自酰胺共轭,φ/ψ 二面角是折叠的全部自由度
- 二级结构靠骨架氢键,三级结构靠疏水核心与二硫键
- DNA 骨架恒定而碱基可变,A=T 两键、C≡G 三键给出互补与解链温度
- RNA 的 2'-OH 使其兼具不稳定性与催化潜力
动手计算:蛋白质结构的"氢键与疏水"合力账
一个氢键约 5-20 kJ/mol,肌红蛋白(153 残基)内部的饱和氢键网络与疏水核心合计稳定化能约数百 kJ/mol——但折叠自由能净差仅 20-60 kJ/mol,因为熵代价巨大。这个"大数相消"解释了蛋白质的 marginal stability:室温下恰好折叠稳定、又保留构象柔性做分子机器。核酸的 Watson-Crick 配对同样是弱力叠加:单对氢键贡献有限,特异性来自堆积+配对的组合误差放大。
# 氨基酸分类的 pI 计算(无侧链解离时) def pI(pka_cooh, pka_nh2): return (pka_cooh + pka_nh2) / 2 print(f"甘氨酸 pI = {pI(2.34, 9.60):.2f}") # 含可解离侧链时取两性离子两侧 pKa 的平均 print(f"谷氨酸 pI = {pI(2.19, 4.25):.2f}(取 α-COOH 与侧链 COOH)") print(f"赖氨酸 pI = {pI(8.95, 10.53):.2f}(取 α-NH3+ 与侧链 NH3+)") # 电泳与离子交换层析的操控参数即此
数据档案:从残基到功能的层级表
| 层级 | 内容 | 主要作用力 | 破坏剂 |
|---|---|---|---|
| 一级 | 氨基酸序列 | 共价肽键 | 蛋白酶/尿素难破坏 |
| 二级 | α螺旋/β折叠 | 骨架氢键 | 尿素、温度 |
| 三级 | 整链折叠 | 疏水+二硫+盐桥 | SDS、还原剂 |
| 四级 | 亚基组装 | 界面弱相互作用 | 变构调节剂 |
# 遗传密码的简并性统计 codons = {} bases = "TCAG" aas = "FFLLSSSSYY**CC*WLLLLPPPPHHQQRRRRIIIMTTTTNNKKSSRRVVVVAAAADDEEGGGG" i = 0 for b1 in bases: for b2 in bases: for b3 in bases: codons[b1+b2+b3] = aas[i]; i += 1 from collections import Counter c = Counter(codons.values()) print(f"64 个密码子 -> {len(c)} 种符号, 亮氨酸 {c['L']} 重、色氨酸 {c['W']} 重") # 简并性集中在第三位——点突变缓冲的分子设计
延伸讨论:中心法则是有机化学的"最大客户"
DNA 复制、转录、翻译的每一步都是第 4-5 章机理的酶催化版本:磷酸酯转移(离去基 pKa 对应的酰基阶梯在第 5 章)、质子转移(第 1 章 pKa 表)、亲核取代(酶活性位点把 SN2 的速率放大 10¹⁷ 倍)。核酶与人工核酸(PNA、TNA)研究则追问"为什么是磷酯骨架与核糖"——化学可能的选项远多于生物实现的一项。理解生命分子化学,就是把本书全部工具做一次综合考试。
蛋白质化学的一个工业注脚:抗体-药物偶联物(ADC)需要把毒性药物精确连接在抗体的特定氨基酸侧链上(通常赖氨酸氨基或半胱氨酸硫基),连接子的化学(第 5 章的酰基活化与点击化学)直接决定药效与安全性。2010 年代以来多个 ADC 药物获批,把本节"氨基酸侧链反应性差异"变成了年销售额百亿美元的工程——基础有机化学与现代医药的接口从未如此直接。