2.3 遗传变异的来源
2.3 · 遗传变异的来源
本节摘要:遗传变异的来源,讲的是"孩子为什么和父母不完全一样"这件事背后的分子机制。变异不是凭空冒出来的,它来自五条具体的路:点突变、插入缺失、同源重组、转座子活动、染色体变异。前两条在单个或几个碱基的尺度上改写序列,后三条在更大尺度上搬动、交换甚至重排整段遗传信息。本节逐一拆开这五条路怎么发生、各自带来什么后果,再落到一个更根本的问题上——变异本身是中性的,是自然选择和遗传漂变把它变成了进化。理解这些来源,是读懂疾病、癌症和物种演化的共同起点。
本节地图
阅读完本节,你应当能够:
- 区分转换与颠换、同义、错义、无义、移码等点突变类型及其后果。
- 解释插入缺失和动态突变的关系,以及复制滑动为什么容易发生在重复序列区。
- 说清同源重组如何在减数分裂中产生新的等位基因组合,以及非等位同源重组的风险。
- 说明转座子是什么、在人类基因组中占多大比例,以及它如何被"驯化"为宿主所用。
- 列举染色体结构变异的主要类型,各举一个疾病例子,并理解变异加选择等于进化这条主线。
一、变异从哪来:进化的原料
先立一个反常识的判断:变异本身没有好坏。一个碱基换掉,可能害命,可能无害,也可能在某个环境里恰好救命。它只是一个"新版本",是生是死,要等环境和时间来裁决。所以问"变异从哪来",其实是问进化的原料从哪来——没有源源不断的新版本,自然选择就没有东西可选,生命就会停在原地。
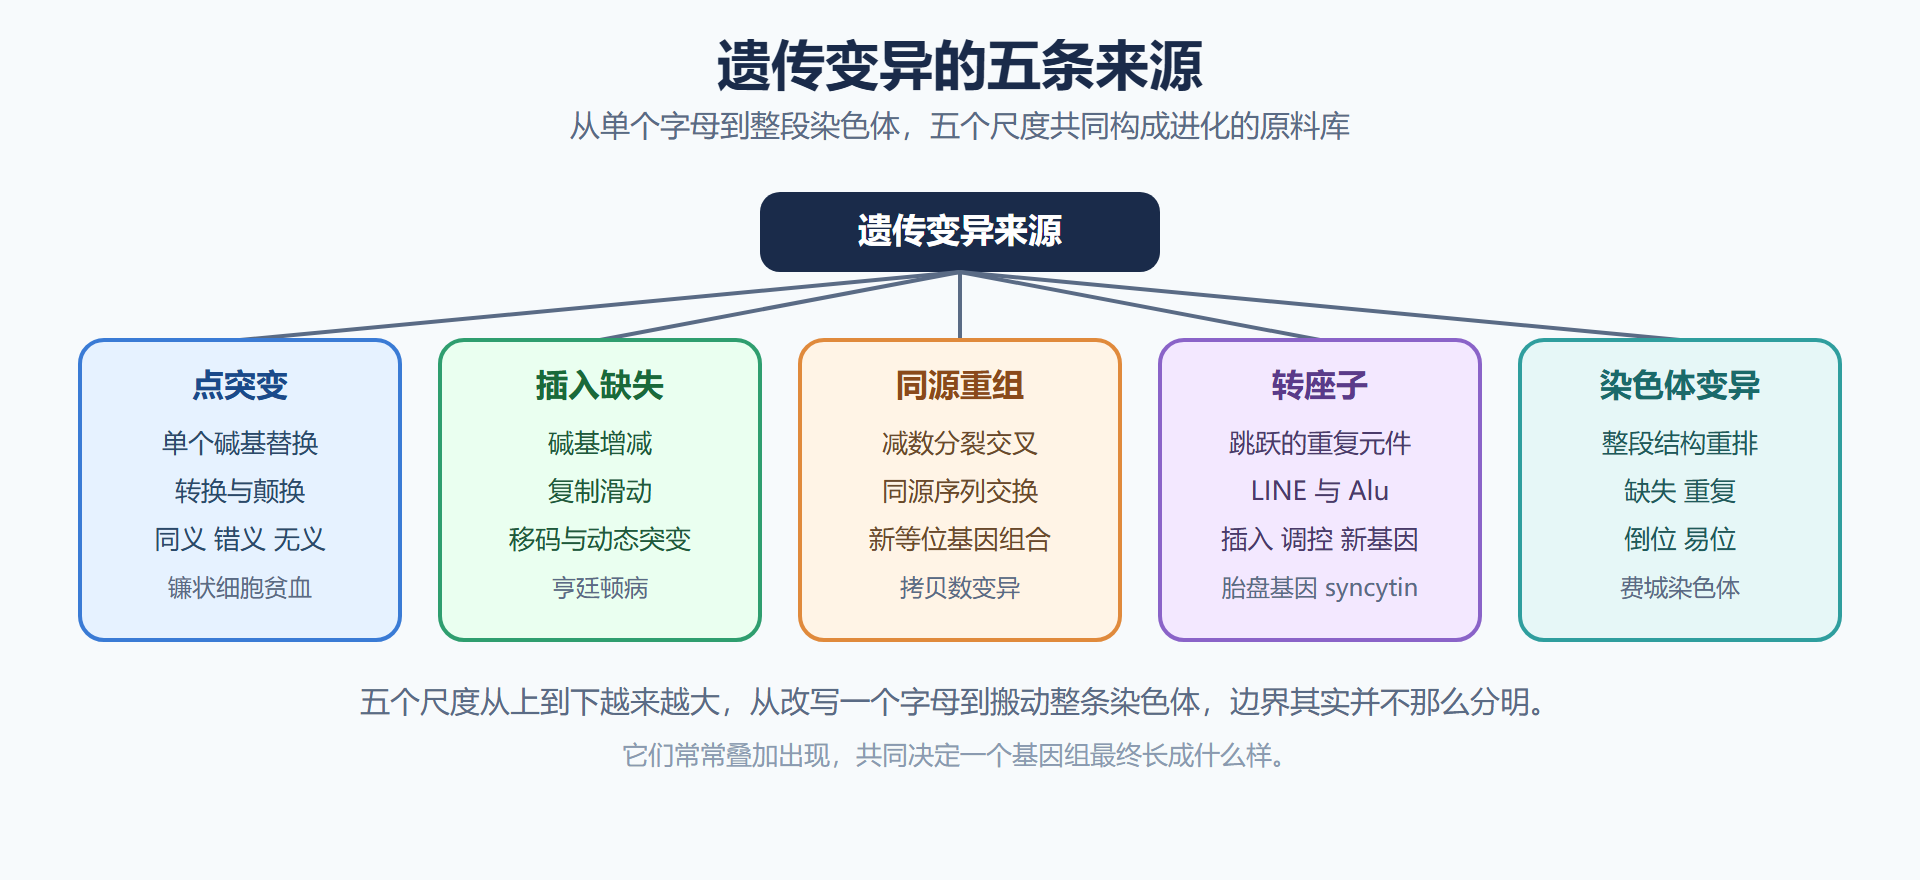
这套原料的生产线,粗略分成两档。一档是序列尺度的小改动,点突变和插入缺失,动的是几个字母;另一档是结构尺度的大动作,同源重组、转座子、染色体变异,搬的是整段甚至整条的遗传信息。两档各有各的机制,也各有各的后果,但它们都指向同一个事实:基因组不是一个一动不动的档案库,而是一本边抄边改、时时在微调的书。理解了这一点,再看任何一份基因组数据,就不会只问"有什么突变",而会接着问"它从哪条路上来、尺度有多大"。
二、点突变:一个字母的代价
点突变是最常见、也最基础的一类,指单个碱基被换掉。它再细分有讲究:如果嘌呤换嘌呤、嘧啶换嘧啶,叫转换;嘌呤和嘧啶互换,叫颠换。因为 DNA 聚合酶校对和化学脱氨基的偏好,自然界里转换比颠换常见得多。
这一个字母换在哪儿,后果天差地别。如果落在编码区,可能有四种结局。同义突变换了密码子但氨基酸没变,靠的是遗传密码的简并性,通常无声无息。错义突变换了氨基酸,轻则微调蛋白功能,重则彻底毁掉——镰状细胞贫血就是血红蛋白里一个谷氨酸被换成缬氨酸,血红蛋白在低氧下聚成硬条,红细胞被挤成镰刀形。无义突变更狠,把一个密码子变成终止信号,蛋白被拦腰截断,多半废掉。移码突变则由非三倍数的插入缺失引起,把下游整个阅读框都推歪,出来的蛋白基本没法用。
落在非编码区的点突变同样不能小看。启动子、剪接位点、增强子上的一个碱基改变,可能不动蛋白结构,却悄悄调高或调低基因的产量。很多癌症相关的单核苷酸多态性就蹲在转录因子结合位点上,像一根手指轻推开关。正因如此,临床上判断一个点突变是"致病"还是"良性的多态",要看它落在编码区还是调控区,再结合它在人群里的频率和功能预测,远不是一锤定音。
三、插入缺失与动态突变
比单个碱基再大一点的,是插入和缺失,合称 indel。它们最容易在重复序列区发生——DNA 聚合酶抄到一长串重复时容易"打滑",多抄或少抄几个重复单元。这就是微卫星序列长度忽长忽短的由来,也是法医鉴定拿它当身份标记的原因。
但"打滑"一旦失控,就会变成动态突变。亨廷顿病、脆性 X 综合征这些病,根源都是某段三核苷酸重复越滚越长,超过阈值后要么产生有毒蛋白,要么让基因沉默。这里有个很反直觉的细节:突变不是一次到位的,而是随代数"渐进式"扩增,所以家系里常见"发病越来越早、症状越来越重"的遗传早现现象。一个重复单元,抄着抄着就抄出了病。
四、重组:减数分裂里的洗牌
如果说突变是在写新词,同源重组就是在洗牌——它不创造新字母,而是把父母两副牌重新切了再拼。减数分裂时,同源染色体并排,先在 DNA 上切出双链断裂,再以对方的同源区为模板修补,这个过程中两条染色体会互换片段,形成交叉。结果是,子代拿到的不再是完整的"爷爷牌"或"奶奶牌",而是一张张重新洗过的新牌。
这套洗牌有双重意义。功能上,它保证同源染色体能正确配对、分开,减少出错;进化上,它把原本连锁在一起的等位基因拆散重排,制造出前所未有的组合。但洗牌也有风险:如果误把两段相似但不完全对应的重复序列当成同源区,就会发生非等位同源重组,直接导致某段基因多一份或少一份——不少遗传病和拷贝数变异就是这么来的。
五、转座子:基因组里会动的段落
转座子是基因组里最像"活物"的部分,它们能把自己复制或剪切下来,插到基因组的另一个位置,所以又叫跳跃基因。别小看它们——人类基因组里有近一半序列,都是从转座子衍生出来的。LINE-1、Alu 这些名字,在基因组注释里随处可见。
它们大多数时候是沉默的,但一旦动起来,就能闯祸或立功。插进基因内部,可能把编码序列拦腰打断;插到调控区,可能给邻近基因带上新的开关。反过来看,长期演化里,宿主也学会反过来利用它们。哺乳动物胎盘发育的关键基因 syncytin,就来自一个被"驯化"的内源性逆转录病毒基因。当年的入侵者,如今成了胎盘的零件。这个例子最能说明:基因组不是一座干净的图书馆,而是一座层层叠叠、新旧杂居的古城。
六、染色体变异:整段的重排
再往上一个尺度,就是染色体级别的结构变异,指几十个碱基以上的大块重排,主要有四种。缺失是丢一段,丢到关键基因就可能单倍剂量不足——Williams 综合征就是 7 号染色体上一小段缺失。重复是多一段,多出来的基因是演化的原材料,人类嗅觉受体基因家族的扩张就靠它。倒位是把一段翻个方向,内容没变,却可能破坏调控或抑制重组。易位是两条染色体互换片段,最出名的是慢性髓性白血病里的费城染色体——9 号和 22 号互换后拼出一个 BCR-ABL 融合基因,成了靶向药的标靶。
还有更极端的复杂重排,比如染色体碎裂,一次灾难性事件里一条染色体被打碎后随机重接,常见于骨肉瘤。这些现象推翻了"癌细胞靠慢慢攒突变"的旧印象,说明基因组不稳定可以在极短时间内剧烈重塑。
| 变异类型 | 作用尺度 | 核心机制 | 典型后果 |
|---|---|---|---|
| 点突变 | 单个碱基 | 复制错配、脱氨基、诱变剂 | 镰状细胞贫血、癌症相关多态 |
| 插入缺失 | 一到多个碱基 | 复制滑动、修复错误 | 移码、微卫星变化、动态突变 |
| 同源重组 | 片段交换 | 减数分裂交叉、同源修复 | 新等位组合、拷贝数变异 |
| 转座子 | 元件跳跃 | 复制或剪切后重新插入 | 基因打断、新调控、新基因来源 |
| 染色体变异 | 大段重排 | 断裂后错误重接 | 缺失、重复、倒位、易位、融合基因 |
图 变异来源分类
七、变异如何成为进化的燃料
把前面五条路合起来看,才能回答那个更大的问题。变异产生的是"新版本",但新版本本身没有方向。一个突变进入配子、传给后代之后,命运由两股力量决定:自然选择会留下适应环境的、淘汰有害的;遗传漂变则纯凭运气让某些变异随机涨落,尤其在小的群体里,运气比选择更管用。有利的慢慢固定下来,有害的退出,中性的就那么漂着。
所以进化的完整公式,其实是"变异加选择"——变异负责源源不断地提供差异,选择负责从差异里挑出适配者。没有变异,选择就断了粮;没有选择,变异只是一堆无意义的噪声。理解了这条主线,再回头看癌症就顺了:肿瘤突变谱像一份"案底",紫外线、吸烟、DNA 修复缺陷都会留下各自的特征,读懂这些特征,就能反推病因、选对药。
还有一个常被问起的问题:变异来得多快?人类基因组每一代大约新增几十个新的点突变,绝大多数落在不碍事的位置。这个看似不起眼的速率,配上数十亿年的演化时间,足以把同一个祖先的后代分化成地球上五花八门的物种——速率的微小差异,在时间的长河里会放大成巨大的分野。
💡 关键直觉:别问"这个变异好不好",要问"这个变异在什么环境里、被谁选择"。同一个镰状细胞突变,在普通环境里致病,在疟疾流行区却因为杂合子能抗疟而被留下——好坏是环境说了算。
⚠️ 常见误区:以为变异都罕见且有害。事实正相反,绝大多数点突变是中性的,真正的害处只落在少数关键位点上。也正因如此,基因组才能在千万年里一边积累变化、一边稳定运转。
要点串联
- 变异无好坏:新版本是中性的,是否保留由自然选择和遗传漂变裁决,好坏是环境给的。
- 点突变:分转换与颠换;落在编码区可有同义、错义、无义、移码四种后果,非编码区突变也能调表达。
- 插入缺失:复制滑动在重复序列区最常见,失控扩增即动态突变,导致遗传早现。
- 同源重组:减数分裂里切段互换,制造新等位组合;误认重复序列则引发非等位同源重组。
- 转座子:占人类基因组近一半,可打断基因或带去新调控,也能被驯化为宿主基因。
- 染色体变异:缺失、重复、倒位、易位四类,费城染色体是易位致病的经典。
- 进化公式:变异提供差异,选择筛选适配,两者缺一不可;肿瘤突变谱正是这条逻辑的医学投影。
到这里,"遗传"和"变异"这两条线已经合流。下一章我们把镜头从单个基因拉远,去看整个基因组怎么被测出来、怎么被比较、怎么被计算。