5.1 群体遗传学原理
5.1 群体遗传学原理
本节摘要:群体遗传学原理讲的是"基因频率为什么会变"。核心工具是哈迪-温伯格平衡——一个描述"什么也不发生"的理想模型,它是衡量真实群体偏离程度的尺子。改变基因频率的只有四种力量:突变提供原料,自然选择定方向,遗传漂变靠运气,基因流做交换。学完这节,你能用这四股力量解释从抗药性到濒危物种的各种群体遗传现象,也为后面读分子进化和人类遗传多样性打好基础。
核心问题
阅读完本节,你应当能够:
- 说出哈迪-温伯格平衡的五个前提,并写出三种基因型的频率分布
- 解释为什么现实群体几乎总会偏离平衡,以及偏离意味着什么
- 区分遗传漂变与自然选择对等位基因频率的不同作用方式
- 判断一个具体现象(如奠基者效应、抗药性上升)背后是哪种力量在主导
- 理解有效群体大小为什么比实际个体数更能说明问题
一、从一个世纪前的一道题说起
1908 年,两个人几乎在同一时间、隔着英吉利海峡,各自独立地解了同一道题。英国数学家哈代和德国医生温伯格都在想:如果一个群体里有一对等位基因,一个的频率是 p,另一个是 q,那么经过一代随机交配,三种基因型的比例会变成什么样?
答案出乎意料地简单,也出乎意料地漂亮:基因型频率会稳定在 p²、2pq、q² 上,而且只要条件不变,它就一代代保持下去。这就是后来写进每一本遗传学教材的哈迪-温伯格平衡。
为什么这道题重要?因为它第一次把"遗传"和"进化"用数学连了起来。在它之前,孟德尔定律解释了个体的性状怎么传,达尔文进化论解释了大尺度上物种怎么变,但中间缺了一环——一个个体的遗传规律,怎么加起来变成群体的演化?哈迪-温伯格平衡补上的正是这一环:它告诉你,如果什么都没有发生,群体的遗传组成本来是不会变的。反过来说,一旦我们观察到它变了,就一定有什么力量在起作用。
二、哈迪-温伯格平衡:一把"什么也没发生"的尺子
先看这个平衡本身。设一对等位基因 A 和 a 的频率分别是 p 和 q,且 p 加 q 等于 1。在理想条件下,三种基因型 AA、Aa、aa 的频率分别是 p²、2pq、q²,三者也加起来等于 1。
这个式子不是硬凑出来的。它的原理很朴素:形成下一代时,配子相当于从基因库里随机抽取。抽到 A 配子的概率是 p,抽到 a 是 q;两个配子随机结合,抽到两个 A 就是 p²,一个 A 一个 a 有两种顺序、共 2pq,两个 a 就是 q²。就像一袋红白两色的球,抽了又放回,抽很多次之后,双红、一红一白、双白的比例自然落在这三个数上。
但要让它成立,需要五个前提同时满足:
- 群体无限大(大得足够抵消抽样误差)
- 随机交配(没有按基因型挑对象)
- 没有突变(不冒出新的等位基因)
- 没有自然选择(所有基因型的存活和繁殖机会一样)
- 没有迁移(不跟外界交换个体)
现实里这五条几乎一条都做不到,所以严格意义的平衡并不存在——而这恰恰是它的价值。它是一把"什么也没发生"的尺子:把观察到的基因型频率和 p²、2pq、q² 的预期一对比,偏离多少,就说明进化力量有多强。
平衡不是静态的宣言,而是统计上的必然。它说的是:在没有外力时,遗传结构有一种内在的惯性。就像掷硬币掷一万次,正面比例会贴着 0.5 走,不是因为有谁在管着硬币,纯粹是大数定律。群体遗传学的推理,就是从"预期是多少"和"实际是多少"之间的差距里,读出进化的信息。
三、四种力量:谁在改写基因库
一旦五条前提被打破一条,平衡就开始松动。推动等位基因频率变化的力量只有四种,我们可以一个一个拆开看。
遗传漂变:小群体里的抽签运气
漂变最容易被人忽视,因为它不靠"适应"说话,纯粹靠运气。每一代传到下一代的配子,只是基因库里的一个随机样本;群体越小,抽样误差越大,等位基因频率就越容易随机地上下波动。
设想一个只剩十只个体的濒危鸟类,某个等位基因此刻的频率是 0.5。下一代因为只有十只个体繁殖,可能碰巧只有三只携带这个等位基因,频率一下子掉到 0.3。这不是这个基因有害,纯属运气。如果群体一直这么小,这个基因最终可能随机地走到 1(固定)或 0(丢失),中间没有任何选择的参与。
漂变的强度由有效群体大小决定,而不是数出来的个体数。因为不是所有个体都同样参与繁殖、性别比例可能失衡、种群大小可能剧烈波动,实际起作用的"遗传有效群体"往往远小于头数。有效群体越小,漂变越猛,多样性流失越快。奠基者效应和瓶颈效应,都是漂变在历史上的两次集中发作:一小撮个体去新地方开枝散叶,或者一个群体遭遇灾变再恢复,都会造成遗传信息的非代表性抽样。
自然选择:有方向的雕刻
和漂变的随机不同,自然选择是有方向的。它通过"存活和繁殖的差异"来工作:带着有利等位基因的个体,平均留下更多后代,于是这个等位基因的频率一代代上升。
选择的方向有好几种。定向选择把一个极端表型往上推,最直观的例子是抗生素环境下的耐药基因——药物一上,耐药菌的优势立刻显现。平衡选择则把多态性按在原地,镰状细胞贫血就是经典案例:杂合子既不发病又抗疟疾,所以那个看似有害的等位基因在疟疾区反而被保留下来。分裂选择则偏爱两个极端,把中间型淘汰。
选择改变频率的速度取决于选择强度和群体大小两个因素。选择很强时,哪怕群体很大,有利等位基因也能快速上升;选择很弱时,它就可能被漂变的噪声盖过去。这一点是理解后面分子进化争论的关键。
基因流:群体之间的搬运工
基因流指的是个体(或配子)在群体之间移动并繁殖。它是"反分化"的力量:迁移一发生,两个群体的等位基因频率就往一起靠,本地好不容易积累起来的差异会被稀释。
基因流有好处也有代价。它能给一个小群体带来新鲜变异,缓解近交衰退;但它也可能"淹没"本地的适应性等位基因,让一个群体难以形成局部适应。保护生物学里人为建生态廊道、让孤立种群互相通婚,就是在利用基因流的正面作用。
突变:一切的源头
突变是慢的,单个位点上每代每碱基的突变率低得惊人,但它是所有其他力量的原材料的唯一来源。没有突变,选择就没有可选的素材,漂变也没有可漂的东西。绝大多数新突变是中性的或轻微有害的,极少数才碰巧有利。突变本身不解释进化,但没有它,进化无从谈起。
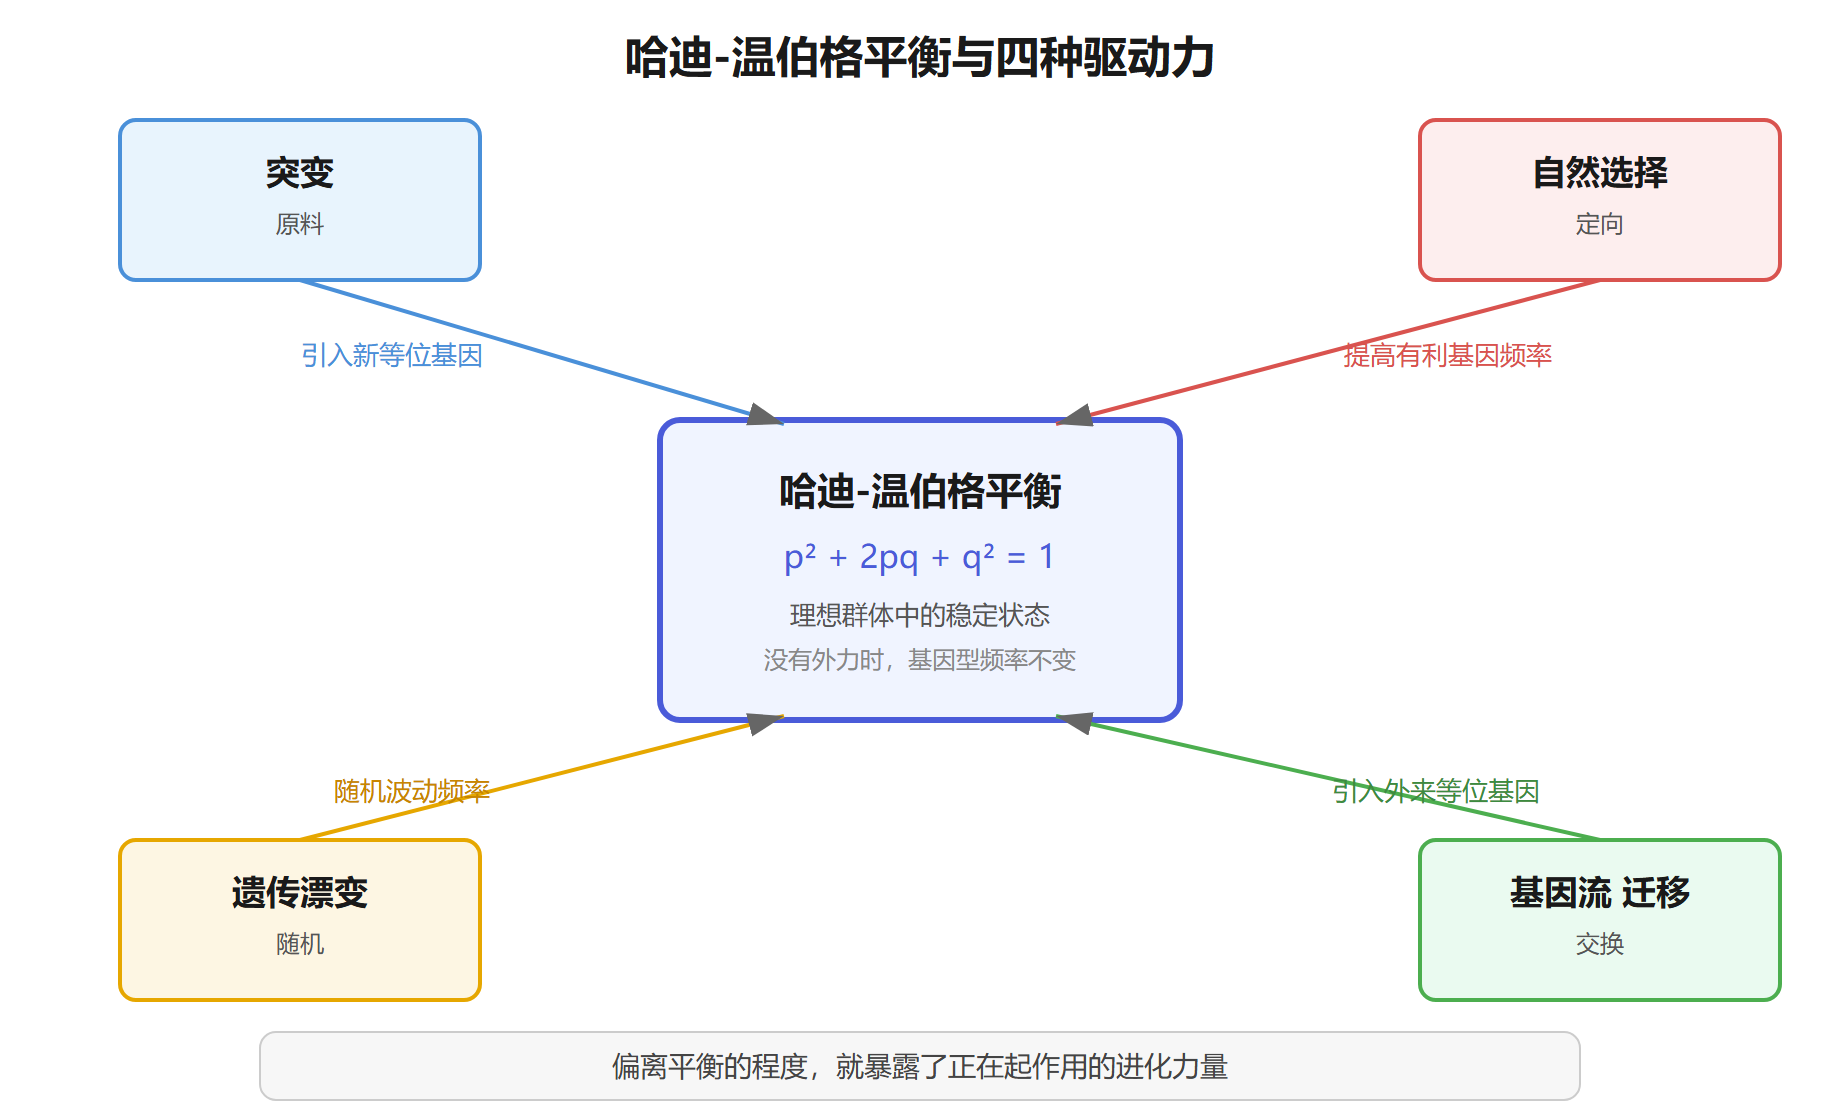
哈迪-温伯格平衡与驱动力
把平衡和四种力量放在同一张图里,关系就清楚了:平衡是中心那个"不受扰动的状态",四种力量从四个方向往里推,各自留下一道偏离的痕迹。
四、当力量叠加:真实群体比模型复杂得多
真实世界里,四种力量几乎从不单独出现,而是同时作用、互相拉扯。一个最常被引用的例子是人类的白细胞抗原(HLA)基因座:它多态性极高,一度被完全归因于病原体驱动的平衡选择;后来发现非洲人群的 HLA 多样性明显高于欧亚人群,而且与群体历史的有效大小高度相关——也就是说,漂变在人类走出非洲的过程中也出了一份力。选择设定了多样性的上限,漂变决定了实际能达到多少。
这种多力交织的局面,光靠笔算已经不够,于是计算模拟成了主力工具。研究者可以在软件里设定群体历史(多次瓶颈、混合事件)、空间结构、选择强度和突变谱,生成大量符合观测的演化情景,再反推哪套参数最合理。解析尼安德特人基因渗入对现代人免疫系统的影响、追踪作物驯化中的选择清除,靠的都是这套办法。
四种力量的分工,可以压成一张对比表:
| 力量 | 对频率的作用 | 对多样性的影响 | 一个典型例子 |
|---|---|---|---|
| 突变 | 极缓慢地引入新等位基因 | 长期提高多样性 | 每个新个体平均约 70 个新发突变 |
| 自然选择 | 定向提高或降低频率 | 提高有利、清除有害 | 抗生素耐药基因快速上升 |
| 遗传漂变 | 随机波动、可能固定或丢失 | 小群体中降低多样性 | 岛屿种群的奠基者效应 |
| 基因流 | 使群体间频率趋同 | 群体内提高、群体间降低 | 生态廊道缓解近交衰退 |
这套原理落到实践里,有两处最常见。一是全基因组关联研究里的质量控制:把每个位点的实际基因型频率和哈迪-温伯格预期一对比,显著偏离的位点往往意味着基因分型出错,得先剔除再往下分析。二是保护遗传学里的有效群体大小阈值:有效群体小于五十时,近交衰退的风险急剧上升;小于五百时,长期维持进化潜力的能力就不足。用微卫星或单核苷酸多态性数据估算有效群体大小,成了濒危物种管理的常规体检。
⚠️ 常见坑:把"偏离哈迪-温伯格平衡"直接当成"有自然选择"。偏离也可能来自基因分型错误、近亲交配、群体分层或迁移,得先排除这些再下选择的结论。
💡 关键直觉:漂变和选择一直在赛跑。判断谁赢,看两件事——有效群体大小和选择强度。群体越小、选择越弱,漂变越占上风。
要点速记
- 哈迪-温伯格平衡:五个理想前提下,基因型频率稳定在 p²、2pq、q²,它是衡量真实群体偏离程度的零模型。
- 偏离即信息:平衡本身几乎不存在,但观察值和预期值的差距,正好暴露了起作用的力量。
- 四种力量各司其职:突变提供原料,选择定方向,漂变靠运气,基因流做交换。
- 漂变看有效群体大小:有效群体越小,漂变越猛,奠基者效应和瓶颈效应是它的极端表现。
- 选择有方向、分模式:定向、平衡、分裂三种选择,分别对应推高、保留、拉开三种结果。
- 现实是多力叠加:HLA 的例子说明,选择设上限,漂变定实际,二者常常共同作用。
下一节,我们把镜头从群体缩到 DNA 序列,看分子进化里中性理论和选择论的百年争论——那是这套数学语言第一次正面撞上真实的序列数据。