6.3 同步:萤火虫给Kuramoto模型上课
6.3 同步:萤火虫给Kuramoto模型上课
摘要:同步研究耦合振子从各自为政走向步调一致的集体现象。本节从萤火虫与心脏起搏细胞出发,装配振子同步的标准模型与序参量,读出临界耦合强度;重点回答「什么拓扑更容易同步」——特征值谱给出的判据与「度分布越宽越难同步」的反直觉结论;登记同步的用途与害处两侧(电网合拍是命,脑电癫痫与桥桥共振是祸)。本节在体系中的位置:放归野外第三间实验室,前五章的谱结构与度分布读数在此兑换成动力学判据。
河边的灯光秀
东南亚的河岸有过一场持续了整晚的演出:成千上万只萤火虫先各自闪烁、互不理睬,随后渐次对齐,最终整棵树整片红树林像装了同一个开关,齐刷刷明灭。没有指挥,没有总谱,每只虫子只看得见邻居的光——整齐从局部互动里自己长出来。生物学里同款演出还有心脏起搏细胞群(它们必须同步放电,否则心脏不会跳)与经期同宿舍的女性;工程里则有电网——数十台发电机的转子必须严格同频同相,相位差一漂,保护系统立刻跳闸。
把这类现象抽象成数学,主角是耦合振子:每个节点带一个相位并以自己的自然频率旋转;每时间步,邻居的相位差以强度「拽」它一把——离群的被往回拉,领先的被拖住等大家。模型的极简版只要一行直觉:相位的变化率 = 自然频率 + 耦合强度 × 邻居相位差的正弦和。正弦因子保证「差半圈时拉力反向」的物理直觉,耦合强度是全剧唯一的全局旋钮。
序参量:给「合拍程度」一支温度计
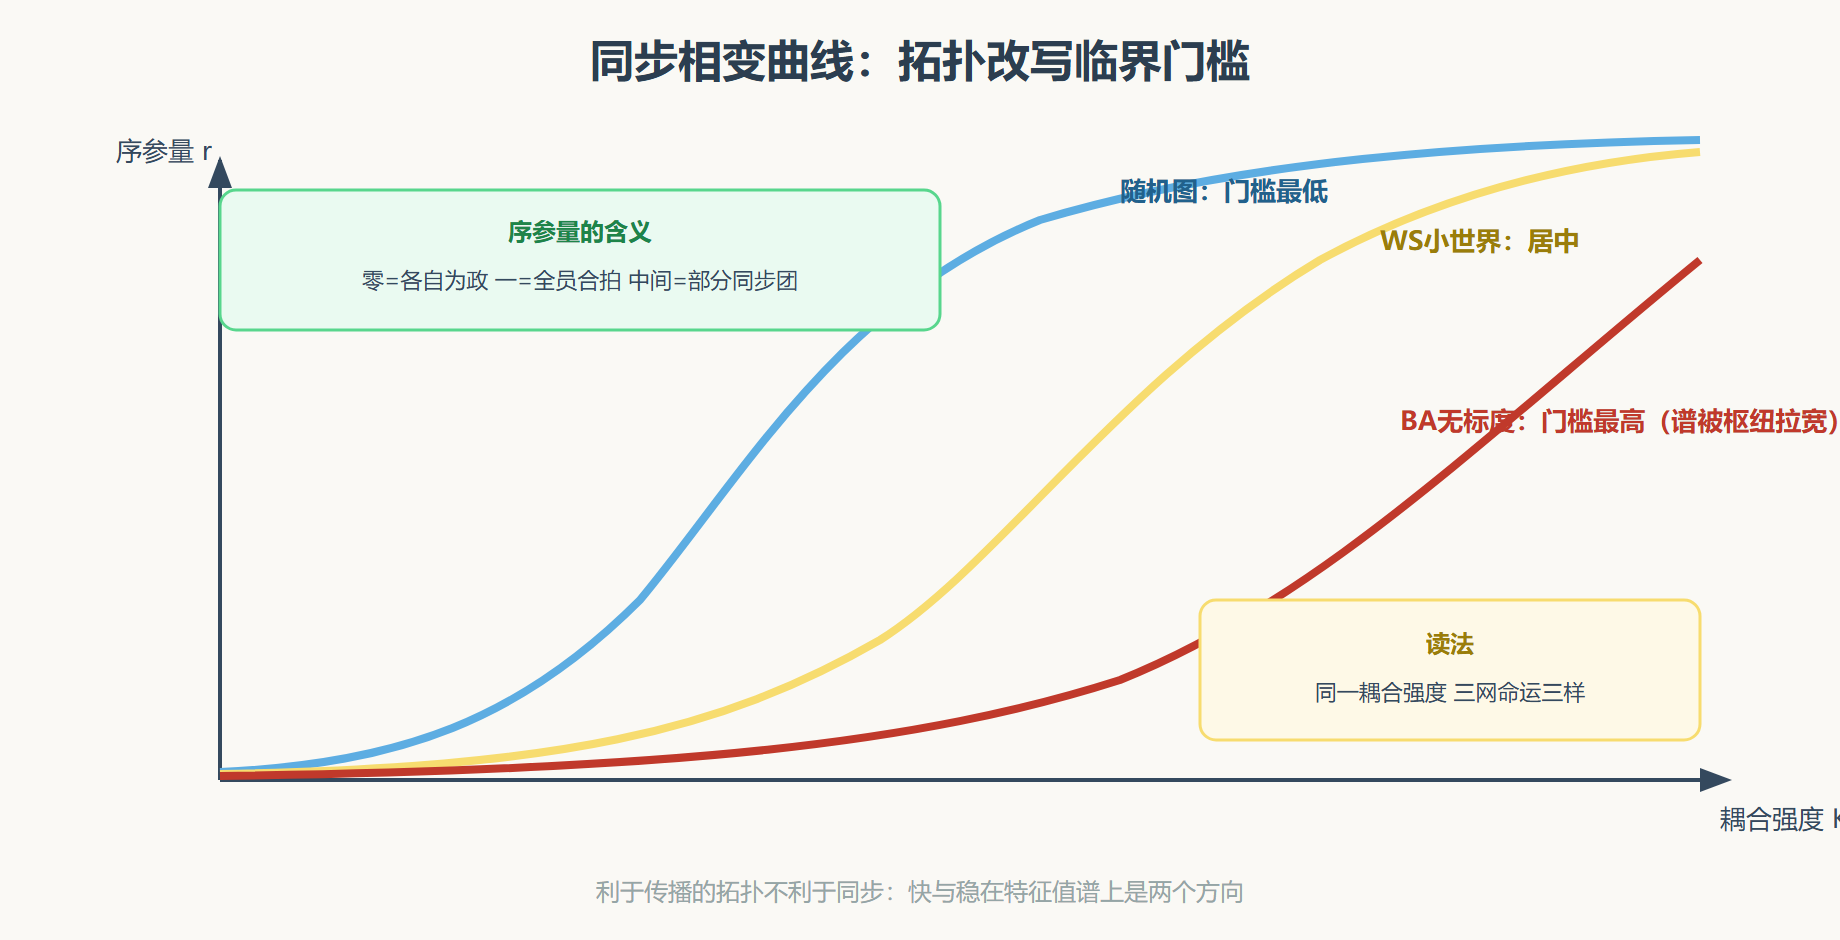
集体行为需要读数。序参量定义为一群单位相位向量的平均向量的长度:完全散乱时正负相消、长度趋零;全体同相时向量叠加、长度为一。从零到一,就是从自由散漫到整齐划一。模型的招牌实验由此展开:耦合弱时序参量贴地(各转各的);跨过某个临界耦合,一小簇振子先结成同步团,序参量抬头;耦合继续加,同步团滚雪球,序参量一路上扬直至全员合拍——二阶相变的完整曲线,与第 5 章渗流的巨分量曲线是表亲。
import networkx as nx import random import math def kuramoto_order(G, K, steps=800, dt=0.05, seed=7): """网络Kuramoto:返回稳态序参量(相位欧拉积分)""" rng = random.Random(seed) theta = {v: rng.uniform(0, 2 * math.pi) for v in G} omega = {v: rng.gauss(0, 1) for v in G} # 自然频率异质 for _ in range(steps): dth = {} for v in G: pull = sum(math.sin(theta[u] - theta[v]) for u in G[v]) dth[v] = omega[v] + K / max(1, G.degree(v)) * pull for v in G: theta[v] = (theta[v] + dt * dth[v]) % (2 * math.pi) sx = sum(math.cos(t) for t in theta.values()) / len(theta) sy = sum(math.sin(t) for t in theta.values()) / len(theta) return math.hypot(sx, sy) ER = nx.gnp_random_graph(200, 8 / 199, seed=1) BA = nx.barabasi_albert_graph(200, 4, seed=1) print("耦合强度K | ER序参量 | BA序参量") for K in [0.2, 0.5, 1.0, 2.0, 4.0]: print(f"{K:9.1f} | {kuramoto_order(ER, K):8.2f} | {kuramoto_order(BA, K):8.2f}")
扫描读数呈现教科书式的相变曲线,且两网门槛有别——这就把问题引向本节的主菜:拓扑如何改写同步命运。
拓扑判据:什么网络更好同步
线性化后的同步问题落到特征值上:耦合矩阵的特征值谱拉开一个「同步窗口」,窗口越宽越难全员合拍——判据浓缩为「最大特征值与最小非平凡特征值之比越小越好」。把第 3、4 章的形态读数接到这个判据上,结论颇具戏剧性:度分布越异质,谱越宽,越难同步。无标度网络的枢纽是同步的麻烦制造者——少数高度节点把特征值谱的上端拉飞,形成「枢纽拖累全员」的格局;同配的豪区结构也会加宽谱。这与直觉相撞:小世界(短路径)常被说成「利于同步」,肥尾也常被说成「利于传播」——但利于传播的拓扑恰恰不利于同步:传播要的是快,同步要的是稳,快与稳在谱上是两个方向。缓解手段在结构侧:加权(按度给边配阻尼)、分层同步(先小圈合拍再圈间合拍),脑网络正是「模块化 + 富人俱乐部加权」的自然样本。
import networkx as nx def sync_eigen_ratio(G): """谱判据:拉普拉斯最大特征值 / 最小非平凡特征值(越小越好同步)""" L = nx.laplacian_matrix(G).astype(float) ev = nx.laplacian_spectrum(G) ev = sorted(ev) return ev[-1] / ev[1] if ev[1] > 1e-9 else float("inf") graphs = { "随机图": nx.gnp_random_graph(200, 8 / 199, seed=1), "WS小世界": nx.watts_strogatz_graph(200, 8, 0.1, seed=1), "BA无标度": nx.barabasi_albert_graph(200, 4, seed=1), } for name, G in graphs.items(): print(f"{name}: 谱比 {sync_eigen_ratio(G):6.2f}")
典型读数排序:随机图谱比最小、WS 次之、BA 最大——同度预算下,异质性越强越难同步。形态学的读数又一次预定动力学的命运,本册的定理式主线(结构写剧本)在同步实验室再次兑付。
图 序参量的相变与拓扑的门槛
同步的害处:当好现象变成病
同步不是一律的美德,野外账本两侧都厚。要同步的一侧:电网频率、心脏起搏、无线通信的时钟对齐、合唱与合奏。怕同步的一侧:癫痫发作是脑区神经元的病理性过度同步——治疗思路之一竟是「去同步刺激」,用微弱扰动把病态合拍打散;伦敦千禧桥开通当天的摇晃,是行人步伐无意识同步激起了桥的共振,工程解法是装阻尼器打破人桥耦合;办公室里此起彼伏变成齐声的笑声与鼓掌,是社会同步最无害的版本。同步的开关在结构上——这既是威胁也是钥匙:识别「病态同步的种子节点」、设计去同步的边加权,都是结构动力学的现役课题。
💡 关键直觉:同步研究的核心不是「振子多整齐」,而是「整齐如何从无序中自发涌现、又被什么结构条件推动或阻断」。萤火虫不需要指挥,电网调度员却要天天防着过度同步——同一门科学的两副面孔。
本站收束
- 耦合振子模型一行直觉:自然频率 + 耦合 × 相位差正弦;序参量给合拍程度测温
- 临界耦合是二阶相变:与渗流曲线同族;拓扑改写门槛位置
- 谱判据:最大与最小非平凡特征值之比越小越好同步;异质度分布拖累同步
- 「利于传播的拓扑不利于同步」:快与稳在谱上方向相反
- 同步有善恶两面:电网与心脏要它,癫痫与桥梁共振怕它;开关在结构侧
下一间也是最后一间实验室:节点不再是振子而是观点与策略——舆论与博弈,看共识与合作如何被边表决定。