7.2 生物网络:从蛋白质到大脑
7.2 生物网络:从蛋白质到大脑
摘要:生物网络横跨分子到器官的尺度——蛋白质相互作用、基因调控、代谢与脑连接组。本节按「建图噪声—形态签名—功能兑现」的流程巡检四类网络:相互作用网的肥尾与模块、调控网的前馈回路(motif 检验的旗舰现场)、代谢网的蝶形结构、脑网络的小世界与富人俱乐部;收尾讨论 hub 作为药物靶点的双重身份与争议。本节在体系中的位置:物种志第二展室,第 5.4 节零模型方法在生物学的主场。
别急着羡慕生物网络:先问边是怎么测出来的
生物展室的第一课是建图课,因为这个领域的边不像社交平台的「好友」那么直白。蛋白质相互作用网的边来自高通量实验:两种蛋白能否结合,靠酵母双杂交或亲和纯化这类筛选测定——每一类方法都有系统性的假阳性(实验条件下才结合、体内根本不碰面)与假阴性(膜蛋白难溶、瞬时结合漏检)。基因调控网的边带方向与符号(激活或抑制),数据来自表达相关性或染色质结合实验——「相关」与「调控」之间隔着因果的鸿沟。代谢网的边是生化反应的底物—产物关系,教科书级可靠,但「通量」随环境剧烈变化。脑连接组分结构(解剖纤维束)与功能(活动相关)两种口径,前者稀疏昂贵,后者相关不等于连线。
建图噪声直接改写形态读数:假阳性把随机边撒进网络,稀释聚类、压平肥尾;假阴性删掉枢纽的低置信边,读数随置信阈值摆动。生物网络研究的报告规范因此多一条军规:形态结论必须标注数据来源与置信过滤口径——同一物种的「蛋白质网络」在不同数据库里能读出不同的度分布,这不是理论打架,是建图口径打架。
形态签名:三个层次的「结构对齐功能」
尽管有噪声,生物网络的形态签名依然清晰,而且结构与功能在每个层次上互相咬合。
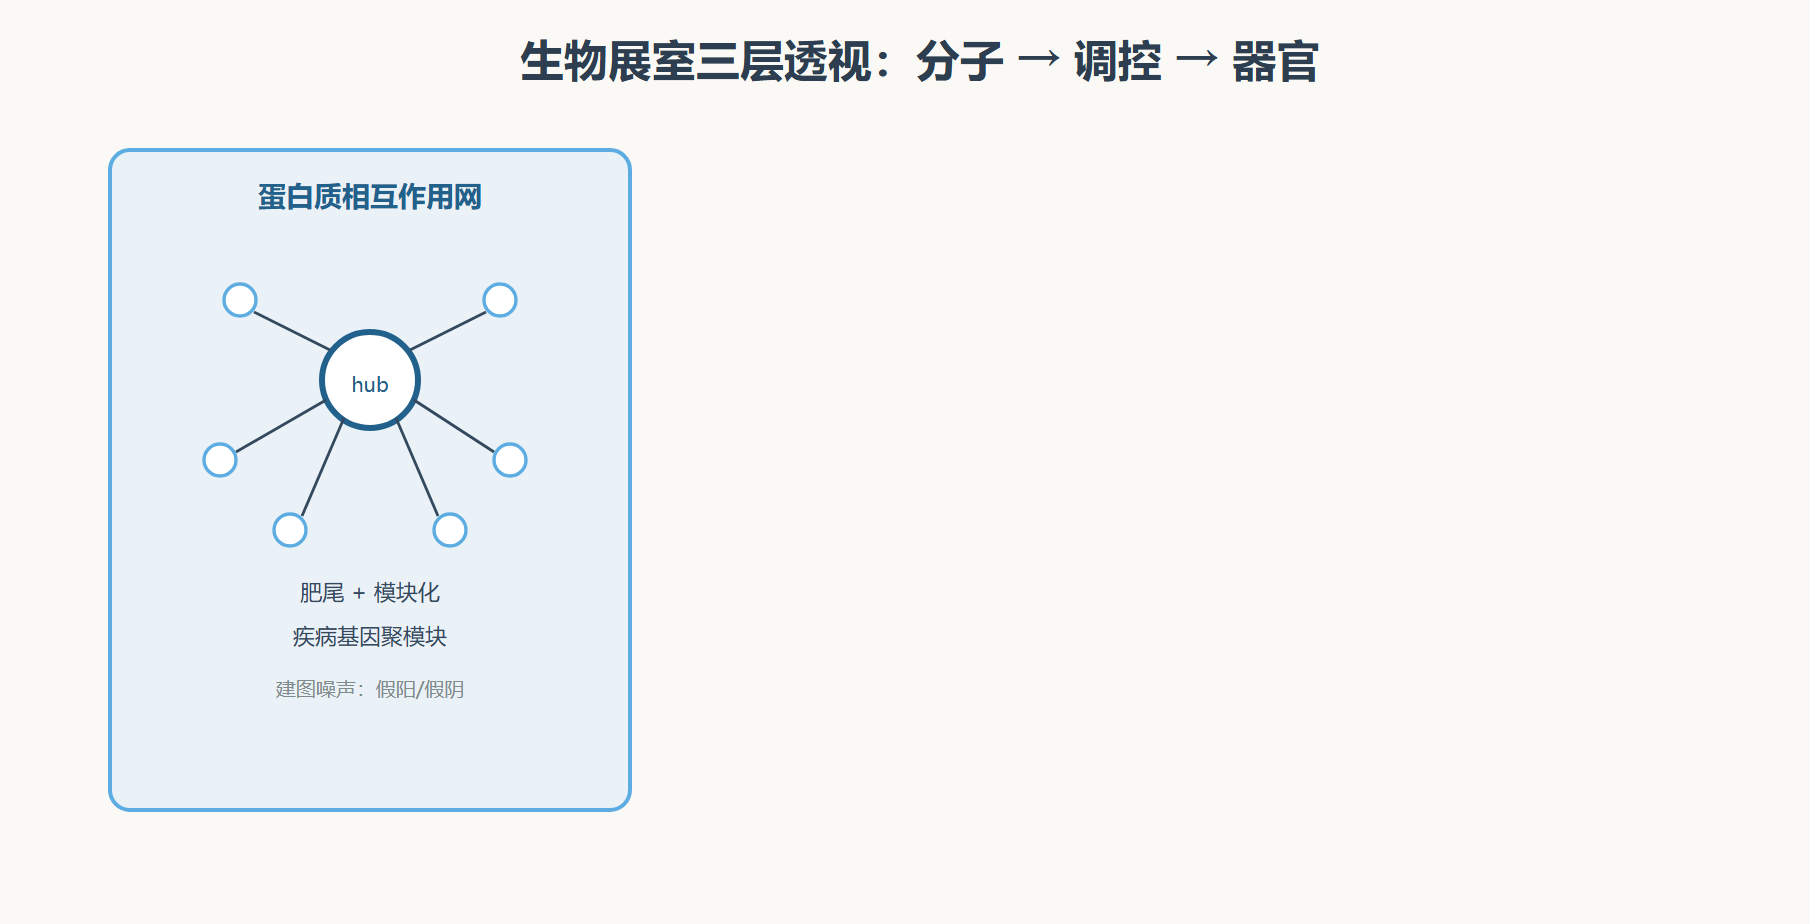
**分子层:肥尾加模块。**蛋白质相互作用网的度分布重尾,少数枢纽蛋白(常是转录因子、信号通路的核心节点)连接惊人;网络同时呈模块化——社团检测切出的模块与细胞通路、蛋白复合物高度对齐(第 3.3 节登记的「结构社团对齐功能分区」在这里是日常工作)。临床含义直接:疾病基因不是随机撒点的,它们倾向于聚在同一模块里——「疾病模块」假说由此成为网络医学的工作框架,为「同病不同因、不同病同模块」提供了结构解释。
**调控层:回路零件。**转录调控网络是 motif 检验的旗舰现场(第 5.4 节的方法原产地):与保度零模型相比,三节点前馈回路(A 激活 B,A 与 B 共同激活 C)显著过量,而简单的三链回路显著缺失。功能解释漂亮:前馈回路是「信号滤波器」——只有持续存在的输入才能穿透到输出,瞬时噪声被滤除;发育过程需要「确认再确认」的稳健开关,进化反复选用这套电路。零模型检验在这里不是统计装饰,它发现了「进化偏爱的零件」。
**器官层:小世界加富人俱乐部。**脑连接组(无论线虫的全体神经连接还是人脑的分区纤维)稳定呈现小世界形态:局部聚类保证功能分区的内部加工,短路径保证全局整合——高聚类与短路径的平衡被认为是「分工与协同」的结构妥协。人脑还多一项醒目签名:富人俱乐部——高度脑区之间彼此密集互联(比按度的预期更密),构成信息交通的「骨干网」。临床侧的读数同样锋利:神经退行性疾病的病理蛋白沿网络传播(结构扩散模型解释病灶分布),精神疾病的连接组偏离有可检测的指纹。
import networkx as nx def rich_club_check(G, top_frac=0.05): """富人俱乐部初检:头部节点之间的互连密度 vs 网络均值""" deg = dict(G.degree()) n_top = max(2, int(G.number_of_nodes() * top_frac)) top = {n for n, _ in sorted(deg.items(), key=lambda x: -x[1])[:n_top]} inside = G.subgraph(top) dens_in = nx.density(inside) dens_all = nx.density(G) return dens_in, dens_all # 用合成网络对照:BA的富俱乐部 vs 同规模随机图 BA = nx.barabasi_albert_graph(600, 4, seed=3) ER = nx.gnp_random_graph(600, 8 / 599, seed=3) for name, G in [("BA合成网", BA), ("ER随机网", ER)]: d_in, d_all = rich_club_check(G) print(f"{name}: 头部互连密度 {d_in:.2f} vs 全网密度 {d_all:.2f} " f"(比值 {d_in/d_all:.1f})")
BA 网的头部互连密度显著超全网均值(优先连接的副产品:老节点彼此早就连过),ER 的比值贴着一。真实脑区网络的读数落在 BA 一侧——富人俱乐部是「结构大于随机」的又一次胜诉,检验思路与第 5.4 节一脉相承。
功能兑现:hub 的双重身份
生物网络把第 4 章「双面枢纽」的剧本演成了生存现实。鲁棒面:分子网络的肥尾赋予它对随机突变的高度缓冲——绝大多数基因是低度的「边缘零件」,敲除后系统照跑;这解释了基因组冗余性与「多数基因敲除无表型」的实验事实。脆弱面:靶向敲除枢纽蛋白常是致死的——枢纽是「不可替换的中央零件」。
药物靶点的争议恰好卡在这条缝上。直觉派主张打 hub:一个靶点瘫痪整个通路,药效宏大。反对派立刻抬出毒性账:hub 同时服务于多条 indispensable 通路,打它等于无差别轰炸正常细胞功能——「可药性」与「中枢性」经常负相关。当前的折中方案是网络医学的模块思路:不打最中枢的 hub,打疾病模块与正常功能模块交界面上的「模块特异性节点」——药效聚焦病灶模块,毒性波及面可控。结构读数(度、介数、模块归属、瓶颈属性)在这里从学术图表变成了靶点筛选的过滤器。
图 生物网络三层透视
本站收束
- 生物网络建图自带噪声军规:形态结论必须标注数据来源与置信口径
- 相互作用网:肥尾 + 模块化;疾病模块假说是网络医学的工作框架
- 调控网:前馈回路显著过量(零模型检验),功能是滤除瞬时噪声的稳健开关
- 脑网络:小世界(分工与协同)+ 富人俱乐部(骨干网);病理沿结构扩散
- hub 双重身份:敲除致死(脆弱面)与药物靶点候选(机会与毒性之争);折中打「模块特异性节点」
下一展室从生命体切换到人工系统:互联网与电力网——工程师的设计与无心的涌现同台展出。