2.7 从序列到演化:比较基因组学与演化树
2.7 从序列到演化:比较基因组学与演化树
本节摘要:把尺度从个体拉到物种,比较基因组学回答"这段序列从哪来、发生了什么"。本节讲清直系与旁系同源的区分、共线性怎么看、怎么用一组直系同源基因建出物种演化树。
同源:一切比较的起点
两个物种的相似序列来自共同祖先,这个关系叫同源。同源内部还要再分家:物种形成事件分开的拷贝叫直系同源(ortholog),基因复制事件分开的拷贝叫旁系同源(paralog)。区分它们不是抠名词——直系同源通常保留了原始功能,跨物种比较功能时要找的就是它;旁系同源往往走了功能分化(新功能化或亚功能化),拿小鼠的基因 P53 直接去对人 P53 做功能推断,得先确认比较的是直系对直系。人类嗅觉受体基因家族有约四百个成员,彼此都是旁系,正是复制与分化造就了这个家族的规模。
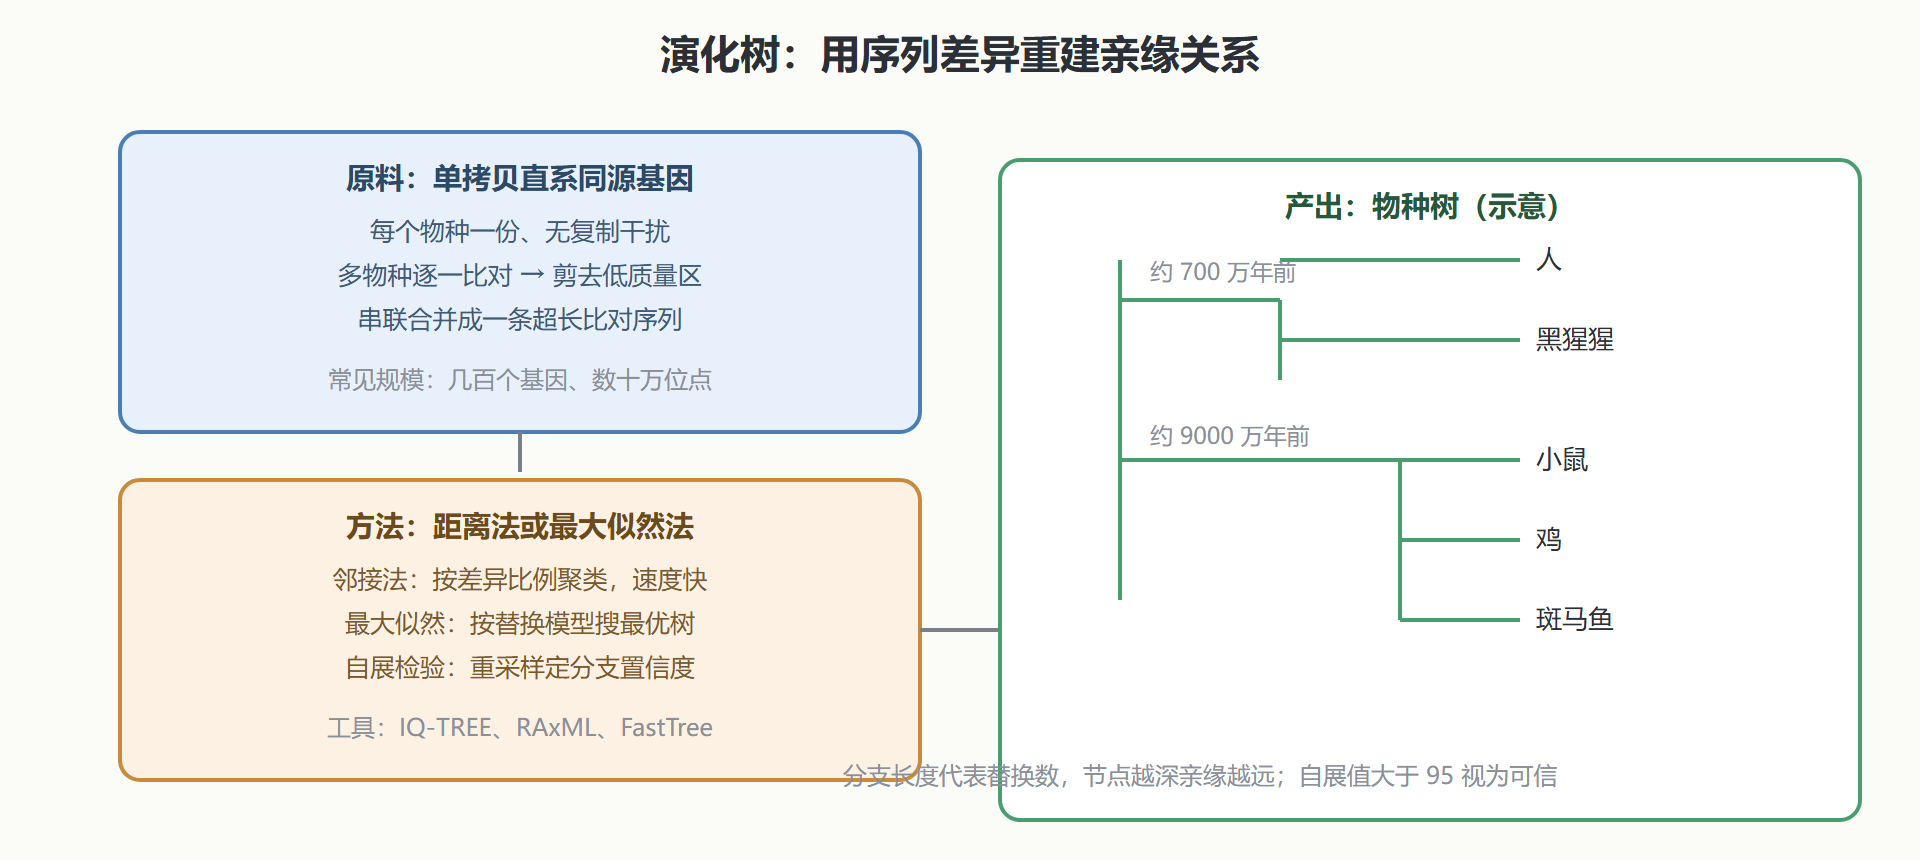
实操上,直系同源用 OrthoFinder、OMA 这类工具从多物种蛋白组里整体推断:先把所有蛋白聚类成族,再在族内按物种分布划分直系组。输出物之一是"单拷贝直系同源基因"列表——每个物种恰好一份、没有复制干扰,这是建演化树的标准原料。
共线性:染色体的历史档案
染色体上的基因排列顺序也会随演化改变:倒位把一段序列翻了个面,易位把一段搬到另一条染色体,重复让一段出现两份。把两个物种的基因组按同源基因连起来看,连线的整体图案叫共线性。人与小鼠的基因组存在二十余个大的共线块,块内基因顺序高度一致,块间则发生了重排——共线性图就是两亿年演化留下的档案照。跨物种比对组装质量也靠它:新组装的基因组与近缘参考共线性整齐,说明没有大的拼装错误;突然的断带与交叉,要么是真重排事件,要么是组装伪影,需要人工核查 pileup。
图:从单拷贝直系同源基因到物种演化树
建一棵像样的演化树
树的原料决定树的上限。单基因建树容易踩两个坑:单个基因的信号可能太弱(替换饱和)或带有基因特有的历史(基因树与物种树冲突),所以主流做法是用几百个单拷贝直系同源基因串联。方法上,快速浏览用距离法(邻接法,MEGA 里点几下就出图),正式发表用最大似然法并指定合适的替换模型(IQ-TREE 会自动选模型)。自展值(bootstrap)是分支的置信度:把序列位点重采样一百次、重建一百棵树,某分支在多少棵树里出现就是它的自展值,低于 70 的分支别拿去讲故事。
读树时记住三件事。分支长度通常代表每个位点的平均替换数,不代表分化时间;要把树变成时间树需要化石校准(分子钟)。树的拓扑才是一级结论:人与黑猩猩互为最近缘物种、再与小鼠合流,这个嵌套次序就是树的结论。长枝吸引是经典陷阱:演化特别快的物种会被算法错放到树基或彼此相邻,拓扑反常时先怀疑长枝,再怀疑结论。
从树到功能推断
演化比较还是功能注释的放大器。一个新测序的基因,在直系同源里九个物种都注释为激酶,第十个物种的拷贝大概率也是激酶——功能保守性沿着树传递,这就是 2.4 节同源注释的理论依据。反过来,直系同源里的"例外"本身就是发现:某个物种的糖酵解酶丢了催化残基,可能提示该物种改了代谢路线。基因家族的扩张与收缩分析(CAFE 等工具)把家族大小变化映射回树上,免疫基因家族在特定谱系的快速扩张常与病原压力相关——这是比较基因组学从"描述亲缘"走向"解释适应"的样板。
基因树与物种树:冲突也是信息
单基因建树还有一个更深的坑:基因树未必等于物种树。基因复制之后再发生物种分化,两个拷贝在物种间的"最近关系"可能与物种关系相反——这是旁系同源干扰建树的机制根源。此外,杂交与基因渗入(物种间的基因流)、不完全谱系分选(祖先多态性随机分配到子代物种),都会让个别基因讲出与物种史不同的故事。哺乳动物早期的快速辐射就留下了大量不完全谱系分选的痕迹,不同基因支持的拓扑各执一词。
处理方式有正反两面。正面:用多个基因(或全基因组位点)合并建模,让多数位点的信号压制少数位点的噪声,专为基因树冲突设计的方法(如 ASTRAL 的汇总物种树思路)还能显式建模分选。反面:冲突本身是发现——某基因的系统位置与物种树系统性不符,可能暗示该区域经历了选择或渗入,人类与尼安德特人的基因交流正是从这类异常里发现的。读到与预期不符的拓扑,先想生物学解释,再怀疑技术错误,这个次序在比较基因组学里屡试不爽。
分子钟:给树配上时间轴
分支长度是替换数,要换算成时间需要分子钟假设——序列替换以大致恒定的速率积累。中性理论给这个假设提供了理论支点,但速率在不同谱系、不同基因间确实波动(世代时间短的谱系替换更快),所以分子钟要做"宽松钟":允许速率沿树分支缓慢变化,用化石记录或已知分化事件做校准点。BEAST 一类工具输出带置信区间的时间树,读法与普通树相同,只是分支长度变成了年份。时间树的实用价值在微生物领域最突出:病原疫情溯源用它推断共同祖先的传播时间,变异株从出现到全球扩散的时线全是宽松钟算出来的。
比较基因组学的几个实战出口
把方法落到产出,这个领域最常见的交付物有四类,每一类都值得知道怎么算。基因家族扩张收缩:统计每个物种里各基因家族的成员数变化,映射到演化树上找异常扩张的谱系——免疫受体家族在某个物种里翻倍,往往对应它与特定病原的军备竞赛。正选择检测:比较同一位点上的非同义与同义替换速率的比值,比值显著大于一提示该基因经历了适应性选择——哺乳动物免疫与生殖相关基因是这类分析的高发区。共线性断裂分析:把近缘物种的基因组对齐,断裂密集的位置提示重组热点或组装伪影,是质量控制与演化研究的双重入口。新基因的起源分析:检查物种特有基因的序列来源(从头起源还是快速分化到认不出),这类"孤儿基因"常承担物种特异的新功能。
四类出口共享同一套原料:直系同源分组、多序列比对、可靠的物种树。这也是为什么本章把方法讲得比结论多——工具会换代,原料与逻辑不会。
💡 关键直觉:比较基因组学的所有方法都是同一条原理的变奏——共同的祖先决定了序列的相似,差异的积累记录了分化的历史。会读树,就读懂了半部生命史。
基因组的故事讲到演化尺度。下一章回到分子本身:基因表达与蛋白功能之间,还隔着蛋白质组这道关。