3.1 DNA损伤的类型与图谱
3.1 DNA损伤的类型与图谱
本节摘要:一次常规的放疗分割剂量(2 Gy)在每个细胞里制造约 1000 以上的单链断裂、约 35 个双链断裂和数以万计的碱基损伤——损伤的"类型学"决定细胞的命运。本节梳理五类主要损伤的结构与频率,讲清直接与间接两条作用路径如何汇合,并解释为什么双链断裂与簇集损伤是真正的危险分子。
一条被数字改写的判决
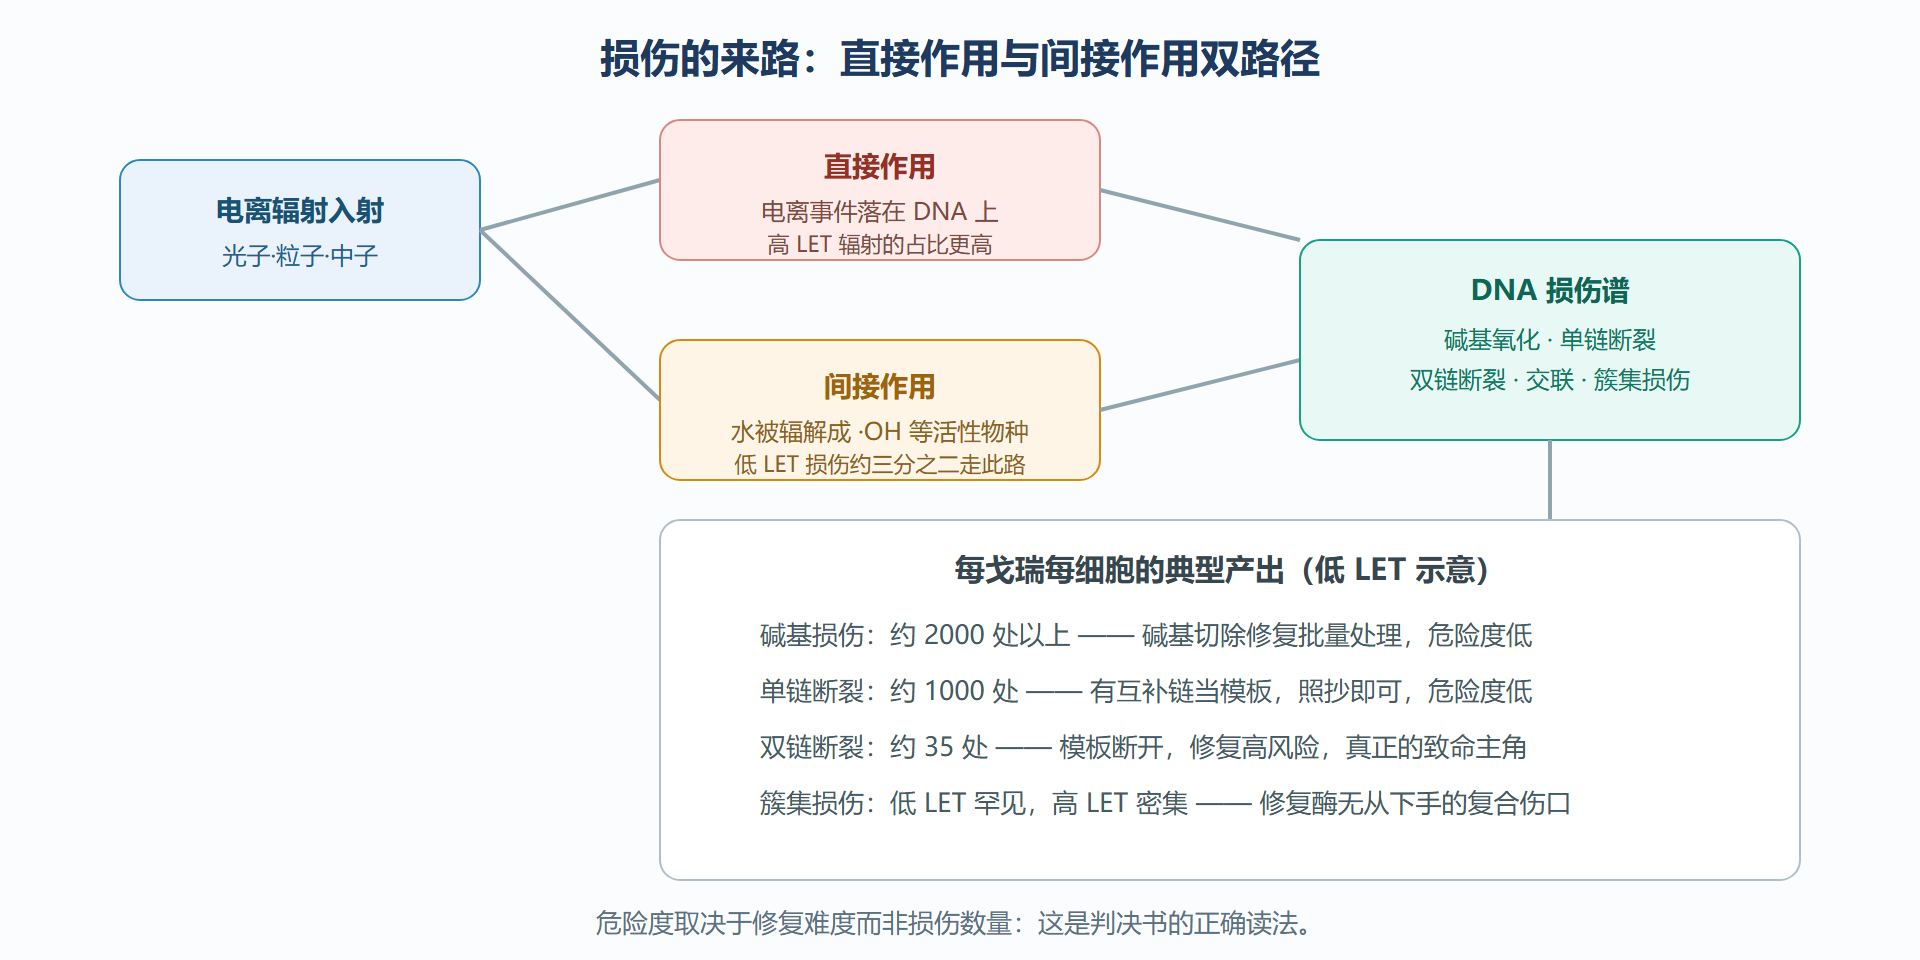
把细胞命运判决书上的关键数字先摆出来。对低 LET 辐射,每戈瑞在每个哺乳动物细胞里大致产生:碱基损伤两三千处(以 8-氧代鸟嘌呤为代表),单链断裂约 1000 处,双链断裂约 35 处,DNA 蛋白质交联数十处。乍看之下,占数量绝对优势的是碱基损伤与单链断裂;但判决书的天平却倾向那 35 个双链断裂——因为碱基损伤有现成的碱基切除修复批量处理,单链断裂可以用未受损的互补链当模板照抄修复,唯独双链断裂让互补链同时断开,模板没了,修复只能靠"把两个断端直接缝起来"或"找同源序列对齐"这类高风险操作。损伤的危险度与其说取决于数量,不如说取决于修复难度:这是理解本节全部内容的钥匙。
还有一个更隐蔽的危险分子:簇集损伤。低 LET 辐射的电离事件沿径迹稀疏分布,两个损伤落在同一段短 DNA(约两个螺旋圈之内,小于 10 个碱基对)上的概率不高;高 LET 辐射的径迹却把电离密集地钉在同一段上,制造出"一段 DNA 上多个碱基损伤加多个断点"的复合伤口。簇集损伤对修复系统是噩梦——修复酶需要先展开、切除、再合成,而伤口本身已经千疮百孔,任何一步都可能出错。这正是第 2 章 RBE 峰值现象的分子实体,也是高 LET 辐射杀伤力强的全部秘密。
图:直接与间接损伤双路径——两条路通往同一个靶
修复技术的进步如何画出损伤地图
损伤图谱本身也是历史的产物,测什么、怎么测,几十年间换了三代技术。早期靠离心沉降与凝胶电泳间接推断断链数量;中和滤膜洗脱与彗星试验(单细胞凝胶电泳)把测量推进到单细胞分辨率——彗星试验里,断链越多、DNA 从胞核拖出的"彗尾"越长,至今仍是环境与职业监测的常用工具。双螺旋之后进入"分子标记"时代:磷酸化的 H2AX(γ-H2AX)焦点与双链断裂近乎一一对应,免疫荧光在显微镜下直接数出每个细胞核里的断点;脉冲场凝胶电泳能分离超大 DNA 片段,测出双链断裂的宏观产出。21 世纪的全基因组学手段则回答"断在哪里":断裂位点的全基因组定位显示,损伤绝非随机撒点——异染色质、高转录活跃区、核膜附近的分布各有偏好,损伤谱因此从"总数统计"升级为"带地址的地图"。这段技术史提醒我们:本节开头那些整齐的数字,是三代方法学叠出来的地基。
损伤分布不是等概率撒点:地址学初窥
全基因组定位带来的最大观念更新,是"损伤在哪里"与"损伤有多少"同样重要。定位研究揭示了几个反直觉的规律。其一,异染色质并不天然安全:压缩状态曾经被认为是防护罩,但断口恰恰偏好出现在复制与转录的机械应力处,晚复制的异染色质区域双链断裂密度不低——"开放才危险"的旧印象被修正为"应力处最危险"。其二,转录是双刃剑:高转录活性区染色质开放、修复通路勤快,日常损伤清得快,但一旦被大剂量打中,活性基因上的断口对细胞功能的打击也更直接。其三,核结构参与命运:靠近核 lamina 的基因座与染色质区间易位频率更高,两个物理相邻的断口被错误缝合的概率,比随机假设预测的高得多——第 3.2 节的染色体易位故事,在这里找到了空间解释。把这些规律合起来,损伤图谱从"数量统计"长成了"地理学":同样的剂量,落点不同,后果的分布就不同。这也是为什么单靠"每戈瑞 35 个断裂"这样的均值,永远解释不了个体与组织差异——均值之外还有地址。
问题:35 个双链断裂听起来很多,细胞为什么平时扛得住?
因为修复产能同样惊人。健康细胞每小时能处理上千处自发损伤(氧化代谢本身就持续制造碱基损伤与断链),35 个辐射断点对一套满负荷的修复系统而言是加班而不是猝死——常规放疗 2 Gy 后的细胞,多数在半天内完成主要修复,这正是分次放疗可行的细胞学前提。真正的危险是质量而非数量:35 个断点里若有一批落在簇集区或关键基因座、或落在 M 期这样修复无门的时相,个别断点就足以致死或致畸。数量决定负载,落点决定命运。
两类交联与修复的账单
损伤清单里还有一栏常被一笔带过:交联。它分两型——DNA 与蛋白质之间的交联(DNA-蛋白质交联),以及 DNA 两条链之间的共价连接(链间交联)。前者阻碍转录与复制的机器通过,后者更狠:两条链被焊死,复制叉一旦撞上直接崩溃,需要专门的切除通路(如 Fanconi 贫血通路参与的协调修复)接力处理。辐射本身制造的交联不算多(每戈瑞数十处量级),但间接作用的醛类产物与某些化疗药物(铂类、烷化剂)是交联大户——这正是"放化疗联合"在分子层面的一个接口:药物负责制造射线不擅长制造的损伤类型,让肿瘤的修复系统顾此失彼。对照查看各损伤类型的"修复账单"还有一层含义:碱基切除修复处理氧化碱基、核苷酸切除修复处理大块扭曲损伤、错配修复纠复制错误、HR 与 NHEJ 处理双链断裂、Fanconi 通路处理交联——每一类损伤都有专属对口,也都有对应的遗传病(通路基因突变导致对特定损伤因子超敏)。这份"损伤—通路—疾病"的对应表,是分子时代放射生物学最漂亮的成果之一:第 1 章那些描述红斑的先驱者不会想到,半个多世纪后,辐射损伤被拆解成了一张可以按图索骥的机器零件清单。
本节要点回顾
- 损伤类型五大家族:碱基损伤、单链断裂、双链断裂、交联、簇集损伤,频率与危险度的排序恰好相反;
- 双链断裂是致命主角:互补链同时断开、模板缺失,修复只能走高风险路线,突变、染色体畸变、细胞死亡多源于此;
- 簇集损伤是高 LET 的指纹:一段短 DNA 上多重损伤叠加,修复系统无从下手,RBE 峰值的分子实体;
- 测量技术三代演进:从凝胶电泳到彗星试验与 γ-H2AX 焦点计数,再到全基因组断裂定位,地图从统计升级为带地址的分布。
下一节我们跟着断点走:断口刚一出现,哨兵如何在几秒内拉响警报,两条修复通路又如何在"快而糙"与"慢而准"之间做出选择。