3.2 DNA损伤修复信号通路
3.2 DNA损伤修复信号通路
本节摘要:断口出现后数秒内,ATM 与 ATR 两位哨兵把局部损伤转成全细胞警报:磷酸化 H2AX 招募修复机器、检查点把细胞周期踩下刹车。本节讲清信号如何传导、非同源末端连接与同源重组如何按"快而糙"与"慢而准"分工,以及修复失败的三种下场——这三条线共同解释了第 2 章存活曲线上的肩区从何而来。
哨兵与警报:损伤如何惊动整个细胞核
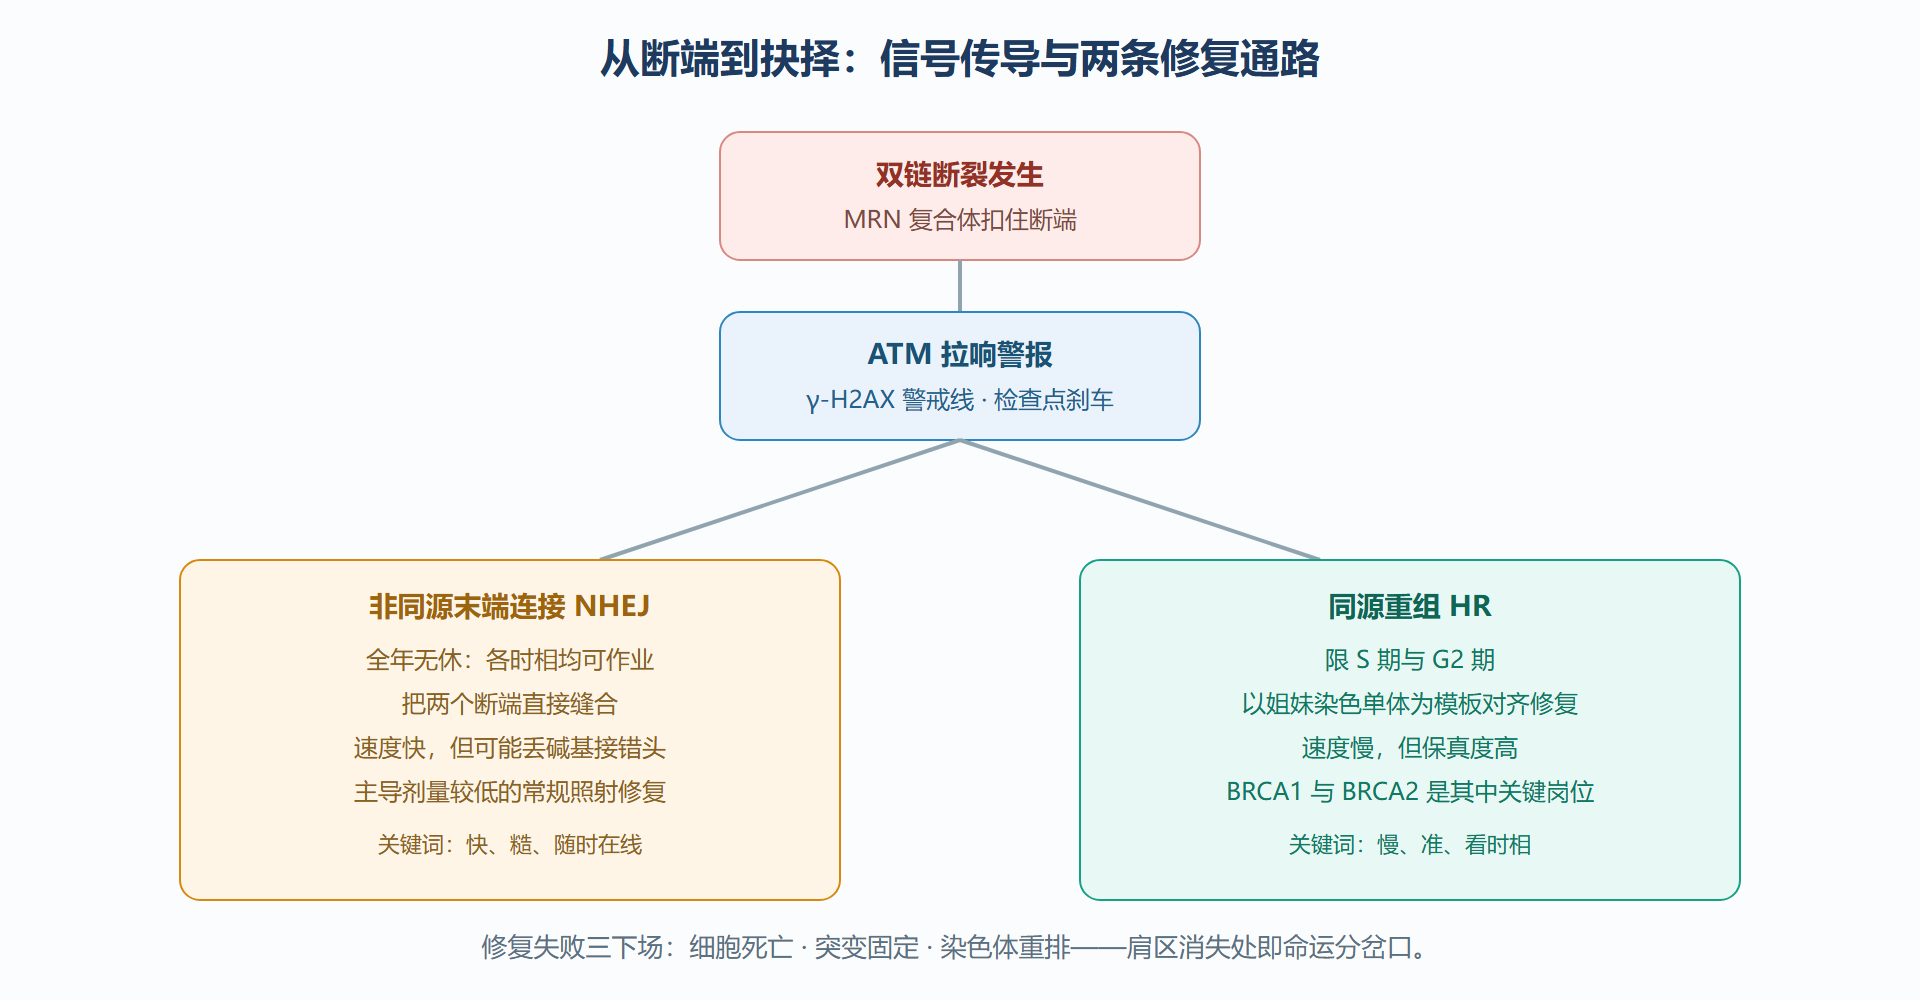
双链断裂的断端刚一暴露,一种环状的蛋白复合体(MRN 复合体)就俯身扣住两个断口,并唤醒坐在断口旁的 ATM 激酶——共济失调毛细血管扩张症突变基因的产物,当年正是通过这种遗传病患者的细胞对辐射极度敏感、检查点全面失灵才发现它的岗位。ATM 被激活后干的头一件事,是给断口周围成千上万个组蛋白变体 H2AX 的尾部加上磷酸基团;这些磷酸化标记(γ-H2AX)像在事故现场拉起警戒线,把修复蛋白成批招募到断口周围——显微镜下,每个焦点大致对应一处双链断裂,这也是上一节 γ-H2AX 焦点计数的原理。信号并不止步于现场:ATM 与另一条由 ATR 哨兵领衔的通路(负责处理单链断裂与复制叉问题)一起,把警报送往细胞周期的"调度室",抑制驱动周期的激酶,让 G1、S、G2 各自的检查点踩下刹车——先停工,再修车。修复与检查点的这套组合拳,就是"辐射后细胞周期阻滞"现象的分子解释,也是第 2 章年龄响应函数背后的调度逻辑。
图:双链断裂的信号分叉——两条修复通路的抉择
快而糙与慢而准:两条通路的分工与竞争
非同源末端连接(NHEJ)是细胞的快速反应部队:识别断端、必要时削剪少许末端、直接把两端连回去。它不依赖模板、任何时相都能开工,是常规剂量照射后修复的主力——这解释了为什么绝大多数细胞(包括休眠细胞)都能扛住轻度损伤。代价是保真度:断端若有损坏,NHEJ 会直接剪掉再接,造成小片段缺失;两个不同位点的断端还可能被错误缝合,埋下染色体易位的种子。同源重组(HR)则相反:它以姐妹染色单体为模板,先大范围切除断端、再"照着对的抄",修复结果与原序列完全一致。但这个流程要求姐妹染色单体在场,因此只在 DNA 复制完成后的 S 晚期与 G2 期可用,且耗时以小时计。BRCA1 与 BRCA2 基因正是 HR 通路的骨干——携带 BRCA 突变的细胞只剩 NHEJ 与其他备用通路可用,断口缝错概率大增,这正是 BRCA 突变携带者易患乳腺癌与卵巢癌的机制侧写,也催生了"合成致死"疗法:HR 已残废的肿瘤细胞,再用药抑制住 NHEJ 的辅助酶(PARP),两条路同时断,肿瘤细胞就被逼进死角。修复通路知识在此直接变成了药物靶点,这是"机制重塑"结出的临床果实。
修复失败的下场有三种,对应三类结局。第一,损伤过重或通路全废,细胞走凋亡或分裂途中的有丝分裂灾难——这是放疗希望看到的结局。第二,修复半途出错但细胞侥幸存活,突变被固定进基因组——这是致癌风险的起点,第 4 章 4.3 节会接着讲。第三,两个断端错误对接,染色体发生倒位、易位等重排——在造血系统肿瘤里,不少标志性融合基因正是这样诞生的。同一条修复通路,同时连接着治疗的疗效、防护的风险与突变的遗产,这种"一体三面"是辐射损伤机制最迷人的地方。
检查点的另一面:为什么刹车本身也是治疗变量
检查点刹车常被讲成纯粹的自我保护,但它的两面性才是临床关注的重点。对正常细胞,刹车给了修复时间窗,这是分次放疗修复红利的前提;对肿瘤细胞,刹车同样是求生通道——受照后的肿瘤细胞若能成功停进 G2,修好断链再进分裂,剂量等于白给。于是"阻断检查点"成了一条增敏路线:WEE1 抑制剂强制细胞带着未修复的断链进入分裂(人为制造有丝分裂灾难),ATR/CHK1 抑制剂在 S 期撕开复制应激的口子,这类药物与放疗的组合正在多个瘤种做临床评估。反过来,p53 缺失的肿瘤失去 G1 刹车、更依赖 S 与 G2 刹车,理论上对检查点抑制剂更敏感——机制分层直接指导用药人群。这些内容放在机制篇的结尾正合适:修复通路不只是"身体的自卫系统",它同时是肿瘤的逃生系统,也是药的靶子系统。同一条通路,三种身份,取决于你站在治疗的哪一边。
问题:修复这么厉害,放疗还有意义吗?
这个疑问其实是把修复能力想象成了绝对防线。修复的三个现实约束决定了放疗的意义:其一,修复保真度有限,被修好不等于修对,突变与染色体畸变照样沉淀(第 3.3 节);其二,修复有时间窗,分次设计的本质就是管理这个时间窗——不让肿瘤把红利吃满;其三,复杂损伤与簇集损伤超出修复产能,这正是高 LET 与增敏策略的发力点。放疗与修复系统的关系不是对抗而是调度:让肿瘤的修复疲于奔命,让正常组织的修复游刃有余。
焦点计数的实战读法
γ-H2AX 焦点计数既然是常用读数,它的读法规范就值得交代。计数有三个经典时间点:受照后几分钟读初始损伤量(焦点数正比于剂量,这是生物剂量学的基础),半小时到数小时读修复动力学(焦点数衰减的快慢反映修复效率),二十四小时后读残留损伤(残留焦点多,提示修复缺陷或复杂损伤——辐射敏感个体的筛查常用这个读数)。读数的三个坑也一并记下:其一,自发焦点有本底(复制应激等日常来源),低剂量测量必须扣本底;其二,焦点与断裂并非严格一一对应(一个复杂损伤可聚成一个大焦点,修复中的区域标记会持续存在),它给出的是近似而非精确计数;其三,细胞周期影响基线(S 期细胞天然多焦点),混合群体读数要分仓。这些规范让焦点计数成为连接第 2 章存活曲线与本章分子机制的实用桥梁:一条衰减曲线,横轴是时间,纵轴是断点存量——修复这个抽象词,在这里变成了可以直接画在坐标纸上的一组点。
本节要点回顾
- 信号链的主干:断端由 MRN 复合体识别,ATM(双链断裂)与 ATR(复制应激)两条哨兵通路把局部损伤转成全细胞警报;
- γ-H2AX 是可数的警戒线:焦点计数与断点数量近似对应,是放射生物学最常用的损伤读数;
- NHEJ 快而糙、HR 慢而准:时相限制决定了细胞周期年龄响应,保真度差异决定了突变风险的高低;
- 修复失败三下场:死亡(治疗所愿)、突变固定(致癌起点)、染色体重排(融合基因之源);
- 机制直接变药:BRCA 突变与 PARP 抑制剂的合成致死,是修复通路研究最成功的临床转化。
下一节我们把镜头拉长:未被修好的损伤不会当场爆炸,而是像涟漪一样在细胞世代间扩散,变成基因组不稳定与旁效应——辐射的影响比剂量沉积的范围走得更远。