2.4 自带工具箱:病毒编码的酶与辅助蛋白
2.4 自带工具箱:病毒编码的酶与辅助蛋白
一句话结论:凡是宿主细胞没有、而病毒复制又必需的反应,病毒就必须把酶打包进行囊——RNA 依赖的 RNA 聚合酶、逆转录酶、整合酶、蛋白酶是最典型的四件。它们只存在于被感染的细胞里,因而是选择性最好的药物靶点;这个事实撑起了半个抗病毒药物工业。
为什么一粒负链 RNA 病毒要在本就狭小的衣壳里塞进一个几百 kDa 的聚合酶复合体?因为宿主细胞根本没有"以 RNA 为模板合成 RNA"的机器——细胞的聚合酶只会拿 DNA 当模板。负链基因组进门后若没有现成的聚合酶开工,它就永远只是一段没有声音的负片。同理,逆转录病毒需要逆转录酶(宿主没有"RNA 到 DNA"的酶),嗜肝 DNA 病毒需要它自己的逆转录酶,HIV 要把 DNA 前病毒缝进染色体就必须带整合酶。而蛋白酶则是另一类逻辑:病毒基因组小,常把多个蛋白串成一条多聚蛋白链翻译,再用病毒蛋白酶精准切割成活性单元——宿主蛋白酶干不了这种定制切割。
四件套逐一清点
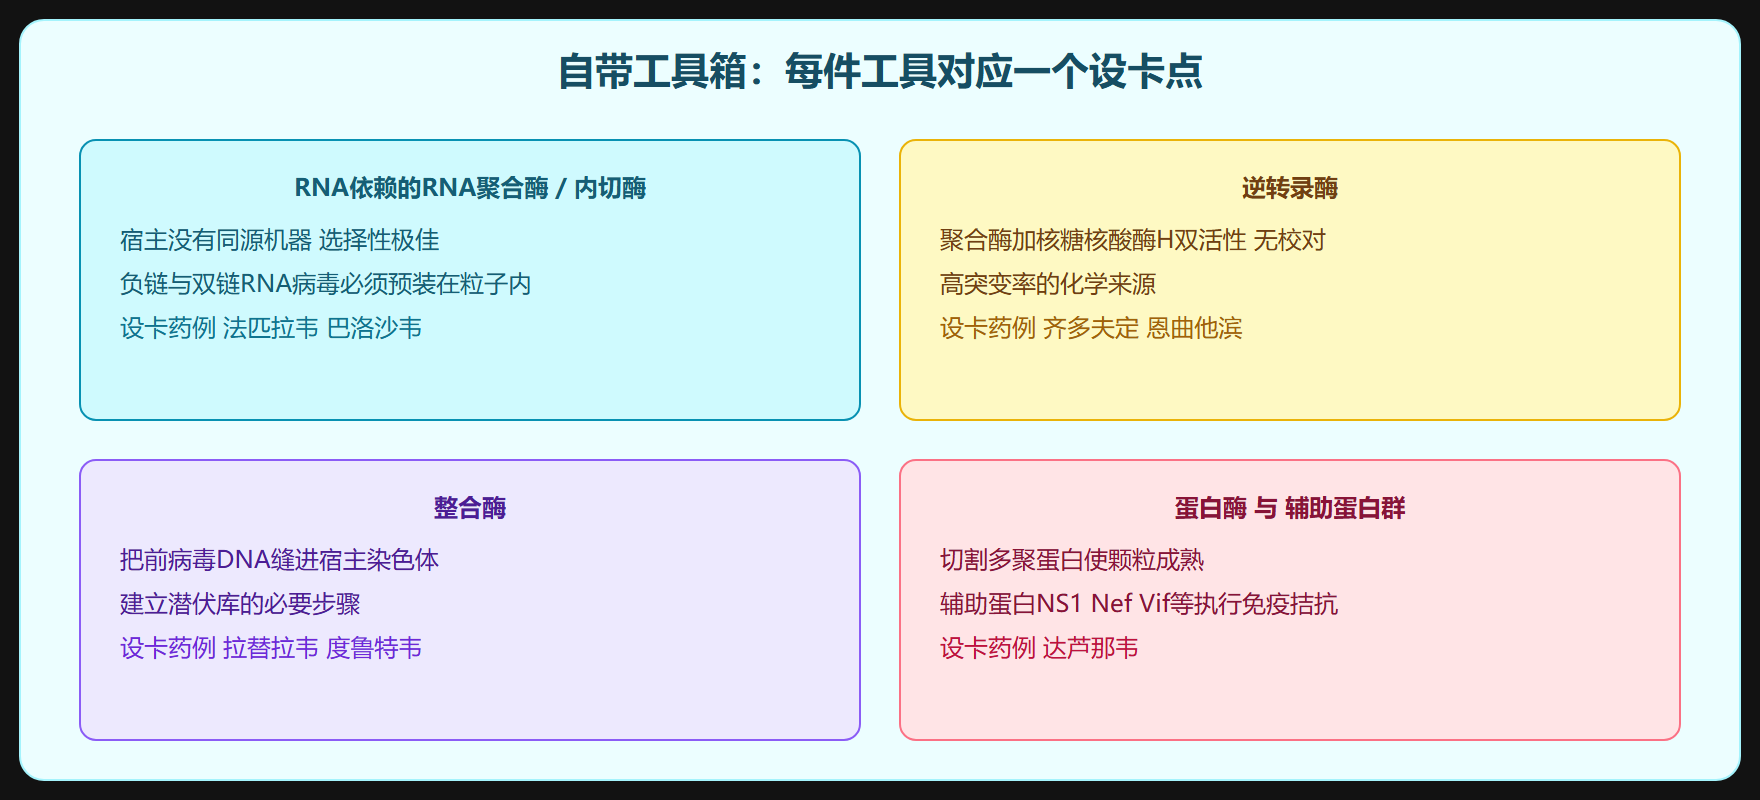
聚合酶复合体。流感病毒的聚合酶是三聚体(PB1 催化核心、PB2 负责"抢帽子"、PA 参与内切切割),这套抢帽子机制很妙:病毒在细胞核里用自身的内切酶把宿主信使 RNA 的帽子结构连着一小段"偷"过来,给自己转录产物戴帽——帽 snatch 帽子掠夺。理解这个机制,就能明白抗流感药巴洛沙韦为什么有效:它抑制内切酶活性,病毒转录全线停摆。
逆转录酶。HIV 的逆转录酶一条肽链兼有两种活性:聚合酶活性加核糖核酸酶 H 活性(降解 RNA 与 DNA 杂合链中的 RNA)。它没有校对功能,每轮复制引入突变——这是 HIV 高变异、耐药屏障低的化学根源。齐多夫定、拉米夫定等核苷类似物全在这一步设卡。
整合酶。把线性双链病毒 DNA 切开一个粘性末端,攻击宿主染色体的磷酸二酯键,把前病毒接上去。整合没有位点特异性,但偏好转录活跃区。整合酶抑制剂(如度鲁特韦)是当代 HIV 治疗的骨干药物。
蛋白酶。HIV 蛋白酶负责把 Gag 与 Gag-Pol 多聚蛋白切成成熟元件;切割不完全的病毒颗粒能出芽但无感染性——"成型却不成熟"。蛋白酶抑制剂(利托那韦、达芦那韦)由此而来,利托那韦低剂量还被用作其他抑制剂的代谢增强剂。
辅助蛋白:小角色大权柄
工具箱里不只有酶。流感 NS1 蛋白结合双链 RNA、拮抗干扰素系统(第 5 章宿主反击时它会再登场);HIV 的辅助蛋白 Nef 下调宿主细胞表面的主要组织相容性复合体和 CD4 分子,Vif 降解宿主限制因子(载脂蛋白 B mRNA 编辑酶催化多肽家族),Vpu 降解系留因子——每一种都是"反防御弹药",命名沿用旧称(负因子等)但功能多与毒力相关。新冠病毒的辅助蛋白里同样有多个拮抗固有免疫的成员。清点这些辅助蛋白的意义在于:毒力的种间差异,常常不在"主机器",而在这些附件——禽流感高致病株与低致病株的关键差别之一就在 NS1 与聚合酶碱性蛋白的几个氨基酸。
一个推论练习:从工具箱反推药物策略
拿丙型肝炎病毒做个完整推演。它是正链 RNA 病毒,基因组进门即可翻译出一条多聚蛋白,由病毒蛋白酶 NS3/4A 切割成熟;复制靠 NS5B 聚合酶;NS5A 是复制复合体的骨架蛋白。三件工具宿主都没有对应物,于是三路设卡:NS3/4A 抑制剂(格卡瑞韦等)、NS5B 核苷类抑制剂(索磷布韦)、NS5A 抑制剂(雷迪帕韦)。三药联合的"直接抗病毒药物"方案把丙肝治愈率推到百分之九十五以上、疗程缩到八到十二周——这个被称为医学史上最成功的抗病毒战役之一的案例,起点正是"清点病毒自带工具箱"这一步。第 8 章展开药物学时,你会看到几乎所有成功案例都是同一推理的重复应用。
易错点
其一,正链 RNA 病毒粒子内通常不带聚合酶(基因组即信使 RNA,进门先翻译出聚合酶),说"RNA 病毒都带聚合酶"是错的; coronavirus 粒子里有少量非结构蛋白但复制酶仍靠翻译产生。其二,"辅助蛋白"不等于可有可无——敲掉 NS1 的流感病毒在干扰素完整的宿主体内几乎复制不动。其三,酶抑制剂耐药的速度与酶的校对能力挂钩:HIV 逆转录酶无校对,耐药突变出现快,所以必须联合用药;DNA 病毒聚合酶有校对,耐药屏障整体更高。
记法:行囊里装的不是工具,是"宿主缺什么"的清单。看见一件自带酶,立刻问两件事——宿主为什么没有它(选择性靶点)?它有没有校对(耐药演化速度)?
工具箱的"选择性原理"与药物设计流程
把本节的核心逻辑抽成一条可复用的设计流程。第一步列清单:写出目标病毒的全套自带酶与辅助蛋白(基因组注释时代这一步是查表)。第二步查同源:逐个查询宿主有没有同源分子——宿主没有或差异大的,是高选择性靶点;宿主也有的(如某些激酶、蛋白酶类),要评估选择性窗口。第三步查校对:靶酶有无校对能力,决定耐药出现速度,进而决定单药还是联合。第四步看时序:靶点在周期的位置决定用药时机(聚合酶靶点要早用,蛋白酶靶点相对靠后仍有效)。这套流程套到 HIV、丙肝、流感、新冠上,能完整复现真实药物史的主要决策——说明"选择性原理加耐药账本"确实是可教的推理框架,而非事后总结。
最后补一个前瞻:宿主靶向药物(广谱路线)走的是另一条原理——牺牲一点选择性换取广谱性(内体酸化抑制剂、亲环蛋白抑制剂),适合"新病毒无自带酶信息"的应急场景。两条路线各有位次:直接抗病毒是精准打击,宿主靶向是广域防御,未来药物库大概率两条腿走路。
补一个快速记忆法:给四件套各配一个"一句话身份"——聚合酶是"抄写员"(宿主没有 RNA 抄写机器)、逆转录酶是"翻译官"(把 RNA 文本转写成 DNA 文本)、整合酶是"装订工"(把新文本订进宿主的大书)、蛋白酶是"裁缝"(把连体衣裁成成衣)。身份记住,靶点与药物自然对号入座。
最后补一条考据:聚合酶"抢帽子"的发现史曾长期卡在技术瓶颈——核内瞬时相互作用的捕捉需要低温电镜与体外重构体系的配合,直到 2010 年代流感聚合酶复合体的高分辨结构批量出炉,巴洛沙韦这类"卡内切酶"的设计才有了精确图纸。工具与药物的这一接力,再次呼应第 1 章的方法论主线。