2.3 包膜与刺突:借来的外衣和入侵的钥匙
2.3 包膜与刺突:借来的外衣和入侵的钥匙
一句话结论:包膜是病毒出芽时从宿主细胞膜上"顺走"的脂质双层,上面镶嵌的病毒糖蛋白(刺突)既是打开下一扇细胞门的钥匙,又是免疫系统识别的主要抗原;外衣与钥匙一体两面,决定了入侵路径、传播条件和疫苗靶点。
回到我们的主角——那粒流感病毒。它的脂膜来自上一个病人的呼吸道上皮细胞膜,膜上绝大多数脂质和蛋白是宿主的"原装货",病毒只把自己的三样东西嵌了进去:血凝素刺突(钥匙)、神经氨酸酶刺突(撤离工具)、基质蛋白 M2(离子通道)。这张借来的外衣带来一系列直接后果:它怕热、怕干燥、怕去污剂和酒精(脂膜被溶解即失活),所以流感病毒在门把手上活不过几小时,而诺如病毒这种无包膜硬壳能熬一周;它必须保持湿润,所以流感靠飞沫传播,而不敢走粪口路线;也因为膜来自宿主,免疫系统必须精确区分"镶了病毒糖蛋白的膜"与正常细胞膜——抗体靶向的主要就是刺突。
刺突蛋白的构造:一把会变形的钥匙
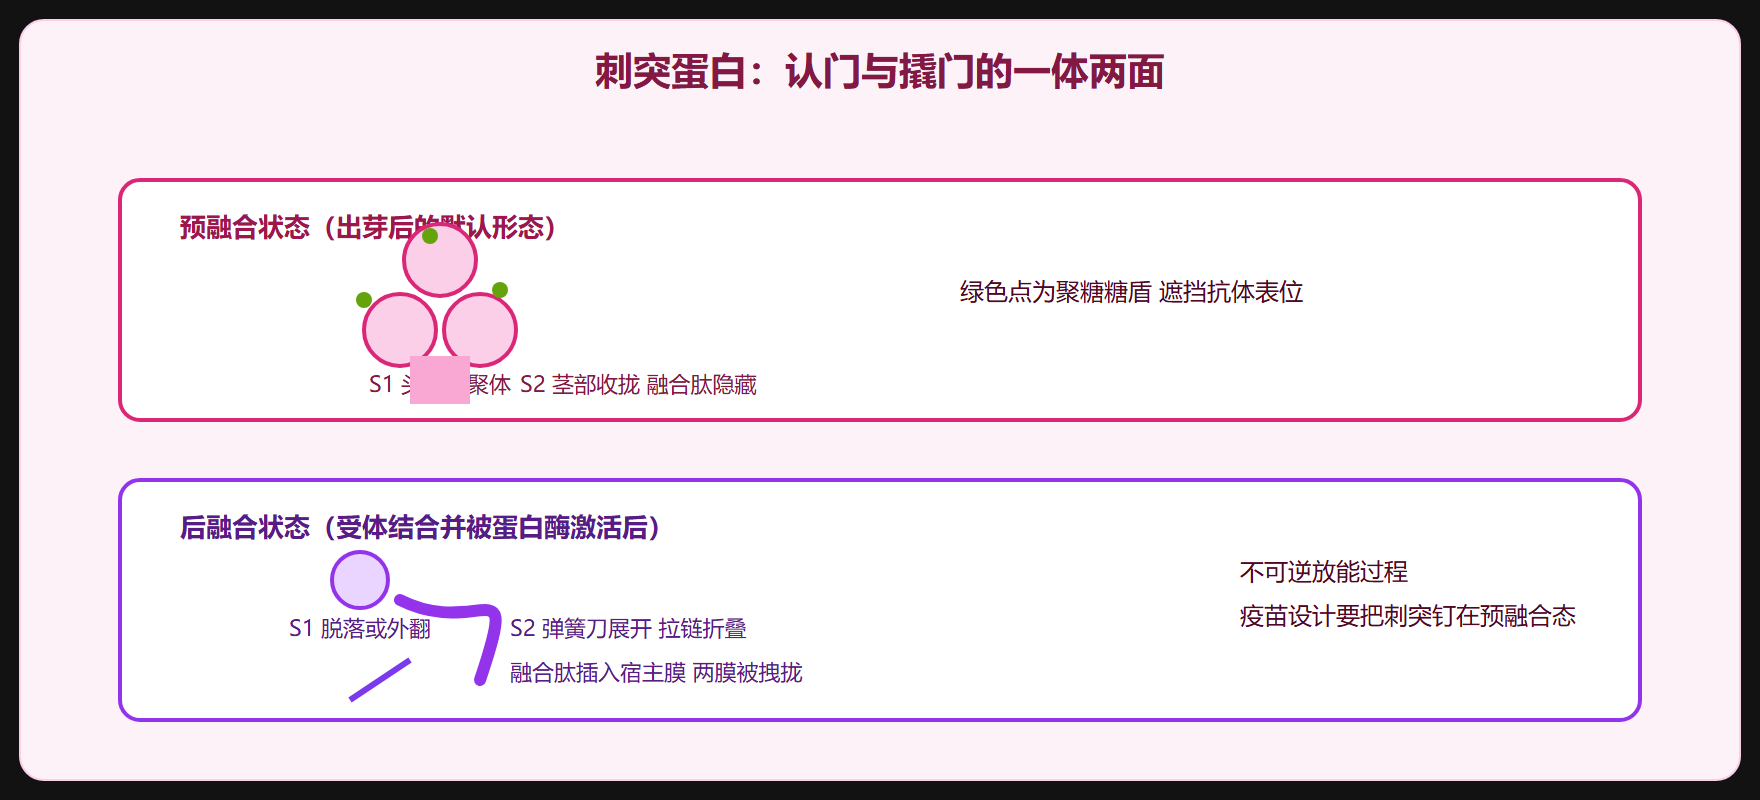
以冠状病毒的刺突蛋白为例,它是个三聚体,每个单体分两个结构域:S1 是头部,含受体结合结构域(RBD),负责"认门";S2 是茎部,含融合核心,负责"撬门"。关键在于 S2 平时折叠收拢,融合肽被藏起来;只有当 S1 结合受体、并且通常在内体酸性环境或附近蛋白酶切割激活后,S2 才像弹簧刀一样打开,把融合肽插进宿主膜,随后两个七肽重复区拉链式对折,把病毒膜与细胞膜拽到一起。这个"预融合到后融合"的构象翻转是不可逆的能量释放过程——理解了这一点,第 3 章的膜融合机制几乎不需要额外记忆。
流感血凝素 HA 同理,只是它被切割成 HA1 与 HA2 两段,切割本身就是激活条件——因此宿主组织里的丝氨酸蛋白酶(如跨膜蛋白酶丝氨酸家族成员)成了病毒嗜性的决定因素之一:哪些组织有能切割 HA 的酶,病毒就能在哪些组织开场。
外衣的账本:有包膜与无包膜的全面对比
| 维度 | 有包膜病毒 | 无包膜病毒 |
|---|---|---|
| 环境耐受力 | 怕脂溶剂、干燥、热 | 耐胃酸、耐污水、耐热 |
| 常见传播途径 | 飞沫、血液、性接触、媒介叮咬 | 粪口、接触、气溶胶 |
| 释放方式 | 出芽,可不杀细胞 | 裂解细胞 |
| 免疫抗原 | 主要瞄准刺突糖蛋白 | 衣壳蛋白表面表位 |
| 疫苗难点 | 抗原漂移快,需更新 | 表位构象刚性,有时难 mimick |
| 代表 | 流感、HIV、新冠、疱疹 | 诺如、脊灰、腺病毒、乳头瘤 |
这张表不是对照记忆用的,而是推理工具:拿到"此病毒经粪口传播、酒精消毒无效",基本可断定无包膜;反过来"对酒精和含氯消毒剂都不敏感"的肠道病毒爆发,院感处置必须升级为机械清洁加含氯消毒。
糖基化:给钥匙套上糖盾
刺突蛋白穿膜而出,要在内质网与高尔基体里加工,宿主的糖基转移酶会在它表面挂上一串串聚糖。对病毒这是免费的伪装:聚糖遮住蛋白表位,抗体难以接触下方的关键区域;聚糖本身是"自我"样分子,免疫原性弱。HIV 包膜 gp120 的糖基化位点超过二十个,聚糖覆盖面积可观,是 HIV 疫苗迟迟无法成功的核心障碍之一。冠状病毒刺突同样糖基化,但密度低于 HIV——这解释了为什么新冠刺突疫苗可行而 HIV 疫苗三十年未成。糖盾厚薄,是评估任何包膜病毒疫苗可行性时要先看的一眼。
疫苗工程师为什么盯住"预融合构象"
这里提前埋一颗第 8 章的种子。呼吸道合胞病毒(RSV)疫苗研发坎坷了半个世纪,早期用灭活全病毒免疫反而导致疾病增强,后来结构生物学发现:稳定的抗原形态是预融合构象上的关键表位(site Ø 等),而刺突一旦翻转到后融合态,这些顶级中和表位就消失了。解决方案是蛋白质工程——引入额外的二硫键与填充脯氨酸(如新冠病毒刺突的 2P、6P 稳定化突变),把刺突"钉"在预融合形态。mRNA 疫苗与蛋白亚单位疫苗的保护力,很大程度上建立在这类构象锁定之上。装备清单的这一条,直接改写了疫苗学史。
易错点
其一,"包膜"不是所有动物病毒都有,也不是动物病毒专属——有包膜与无包膜的区分跨宿主域存在。其二,刺突≠唯一表面蛋白:流感还有神经氨酸酶,HIV 有 gp41 与 gp120 之分,把"刺突"当成单一蛋白是常见口误。其三,脂膜来自宿主意味着"包膜病毒的膜蛋白"中混有少量宿主蛋白(如组织相容性复合体片段、宿主膜蛋白残余),这对免疫病理和诊断都偶有影响。
一句工程直觉:看一个包膜病毒,先问三件事——刺突叫什么、被什么酶激活、聚糖有多厚。三问答完,它的入侵路径(第 3 章)、免疫逃逸潜力(第 5 章)和疫苗难度(第 8 章)都已心中有数。
刺突蛋白的"三重身份"总结
把本节与后文的接口收拢成一张身份清单:刺突是入侵机器(受体结合加膜融合,第 3 章两节的主角)、是主要抗原(中和抗体的第一靶位,第 5 章)、是疫苗的核心免疫原(第 8 章所有主流路线的设计起点)。三重身份叠加意味着一个推论:任何针对刺突的干预(疫苗、单抗、抑制剂)都会受到同一约束——功能保守区不敢大变。这既是病毒逃逸的极限,也是广谱设计的希望所在。反过来,病毒的应答工具箱包括:构象屏蔽(受体结合域平时收拢)、糖基化盾、切割位点多样化、以及免疫显性区的诱导(让抗体去打"次要部位")。攻防的全部要点都围绕"表位暴露度与功能约束的交集"展开。
一个实用观察训练:读文献或新闻提到某新变异株"刺突蛋白有若干突变"时,先看突变的位置注释——落在受体结合域与 N 端结构域的多为免疫逃逸相关,落在furin切割位点附近的可能影响嗜性与传播,落在茎部的多为结构稳定相关。位置先于数量:一个关键位点的替换比十个无关位点累积更值得警惕。
补一个记忆锚点:把包膜病毒与无包膜病毒对消毒剂的敏感性差异记成"脂包膜怕皂"——肥皂与酒精破坏脂膜,所以流水洗手与醇类消毒对流感新冠这类包膜病毒高度有效;而诺如这类裸壳病毒只能靠含氯消毒剂与机械力清除。这条常识在家庭与医院场景里每天都在用,其原理正是本节的外衣账本。
再补一组数字感:流感颗粒表面的血凝素刺突约数百个,新冠刺突每颗粒平均只有二三十个且多数处于闭合构象——刺突密度与开放比例的差异,直接影响抗体"够不够得着"与中和难度,也是两种病毒疫苗表位设计策略不同的结构原因之一。数量与构象,从来是结构免疫学的一等公民。