4.1 转录与翻译:接管细胞的合成机器
4.1 转录与翻译:接管细胞的合成机器
一句话结论:病毒基因表达的核心问题是"怎么让细胞的机器优先造我的货"——DNA 病毒借用宿主 RNA 聚合酶但重写启动子偏好,RNA 病毒自造聚合酶并用各种非常规手段抢核糖体;表达的时间级联(早中晚)把整条流水线排成一张时间表。
承接第 3 章:基因组已在复制区落位。现在的任务分两步——先造出"工具"(聚合酶与调控蛋白),再造出"零件"(结构蛋白)。工具和零件必须按顺序来,因为结构蛋白造早了没有基因组可包、聚合酶造晚了复制无从谈起。病毒的答案是基因表达的时序级联。
转录:七条剧本各异的路
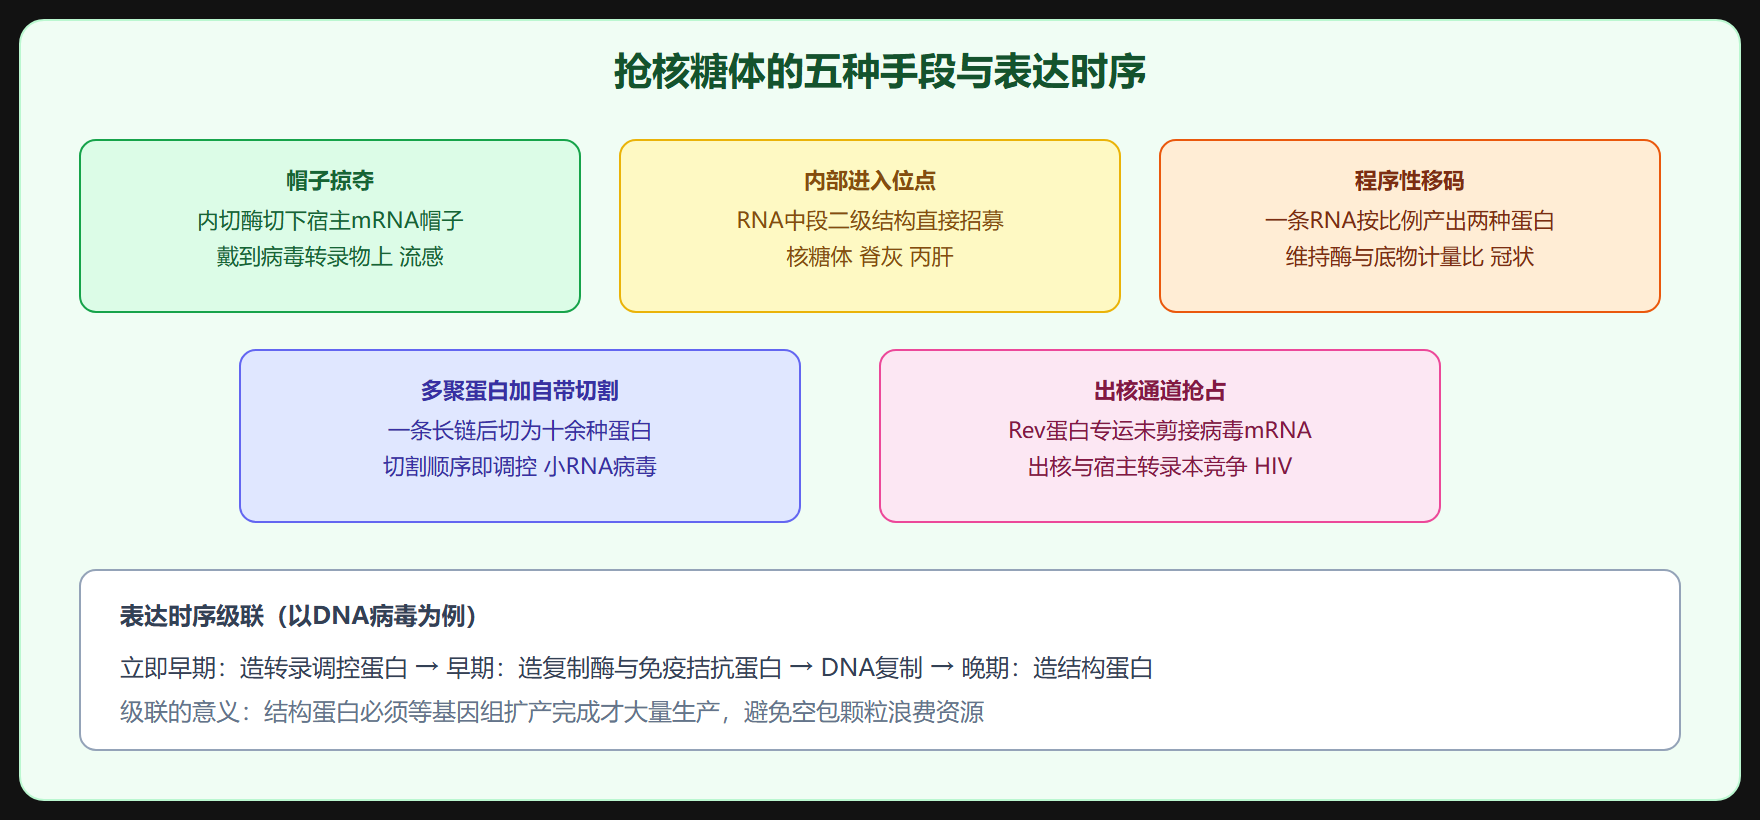
第一类的 DNA 病毒(如腺病毒)最"省心":宿主 RNA 聚合酶二现成可用,病毒只需提供强启动子。腺病毒把表达分成早期(E1A 等调控蛋白)与晚期(结构蛋白)两段,E1A 是总开关——它同时激活其他早期基因并劫持细胞的转录因子。疱疹病毒更精细,立即早期、早期、晚期三段级联,立即早期蛋白负责打开后续时段。
第四类正链 RNA 病毒(如脊髓灰质炎)压根不需要转录启动:基因组就是信使 RNA,进门直接落到核糖体上。第五类负链(如流感、麻疹)必须用粒子带来的聚合酶先合成信使 RNA——流感甚至在细胞核里干活,用第 2 章讲过的"帽子掠夺"给自己的信使 RNA 装上真帽子。第六类 HIV 走两步:逆转录成 DNA 后整合,再由宿主聚合酶二转录,产出的信使 RNA 经剪接后既当翻译模板又被包装进颗粒。
翻译:抢核糖体的五种手段
核糖体认的是帽子结构与起始因子,病毒的花招围绕这两样展开。其一,帽子掠夺(流感,转录层面解决)。其二,内部核糖体进入位点:脊灰病毒与丙肝病毒在 RNA 中段放一段特殊二级结构,核糖体直接结合其上起译,绕过帽子检查;同时脊灰病毒还降解宿主的帽子结合复合物亚基,让"戴帽子的宿主信使 RNA"全部停摆,核糖体专属供应病毒。其三,移码与通读:冠状病毒在复制酶基因的 RNA 假结结构处按约两成概率程序性移码,一条 RNA 依不同比例翻译出两种蛋白,既省基因组又保证酶与底物的化学计量。其四,多聚蛋白策略:脊灰病毒整条基因组翻译成一条长链,再由自带蛋白酶切成约十种成熟蛋白,切割顺序本身就是调控。其五, mRNA 出核竞争:HIV 的Rev蛋白专门把未剪接与单剪接的病毒信使 RNA 运出细胞核,与宿主信使 RNA 抢输出通道。
换班:宿主蛋白合成的关闭
接管不是比喻。脊灰病毒蛋白酶切割真核起始因子四G,宿主帽子依赖翻译全部停摆,而病毒靠内部进入位点继续翻译——一家工厂从此只出一类货。流感用病毒核蛋白与聚合酶竞争宿主剪接与出核机器;腺病毒阻断宿主信使 RNA 的出核;疱疹病毒降解宿主 DNA 并接管核内空间。关闭宿主翻译还有一个隐藏收益:减少抗病毒蛋白(如干扰素刺激基因产物)的产出,为第 5 章的免疫对抗提前铺路。当然也有代价——工厂停摆太狠,细胞很快坏死,病毒必须赶在塌方前出货,这又回到"时间窗"这条主线。
一个定量视角:计量比为什么重要
用伪代码把冠状病毒移码的逻辑抽象出来,看"比例调控"如何用一段序列解决化学计量问题:
问题: 下游聚合酶需求量少 上游蛋白需求量大 但两者编码在同一条基因组RNA上 手段: 在两段读码框交界处放置滑动序列与假结 核糖体经过时以概率p发生减一移码 产出比: 聚合酶帧产物 ∶ 上游帧产物 ≈ p ∶ (1-p) 冠状病毒p约为百分之五到二十 效果: 不需要额外调控蛋白 一段RNA自发维持 酶与底物的化学计量 推论: 移码率p一旦被小分子锁定在零 聚合酶断供 复制停摆 —— 现实中的 移码抑制剂研发路线
这个例子值得咀嚼:病毒的"调控"常常不靠新造调控蛋白,而是把物理化学性质(二级结构、概率事件)直接编码进序列——用信息换基因的又一次交易。
易错点
其一,"晚期基因"不等于"结构基因全部":不少病毒的结构蛋白里也有早期表达的小幅本(参与复制复合体),分类术语别绝对化。其二,负链病毒的信使 RNA 才需要"抢帽子",正链病毒的基因组自带帽子(或用其他起译策略),别把帽子掠夺安到冠状病毒头上——冠状病毒用的是 mRNA 帽化酶(非结构蛋白十与十六)给自己加帽,机制完全不同。其三,剪接不是 DNA 病毒专属:流感也剪接(用宿主剪接机器从同一段产生 M2 与 M1),逆转录病毒大量依赖剪接变体。
一句直觉:把病毒基因表达想象成"换班公告"——谁先表达、谁压谁、谁走非常规通道,读任何病毒基因组注释时先找这三样,表达策略的骨架就立起来了。
表达策略与干预的接口清单
把本节的非常规手段逐条对接到干预现实:帽子掠夺对应巴洛沙韦(卡内切酶);内部进入位点对应着脊灰与丙肝的翻译抑制剂研发(如靶向 IRES 的小分子与 siRNA 思路);程序性移码对应在研的移码锁死小分子;多聚蛋白切割对应 HIV 与丙肝蛋白酶抑制剂(后者即"直接抗病毒"三支柱之一);出核抢占(Rev)对应早期研究过的 Rev 抑制剂。清单显示:表达策略的每一种花样,都至少孵化过一个真实的药物项目——表达调控是抗病毒药物最密集的矿区之一。
另一个值得收藏的实验视角:双荧光报告系统(早晚期启动子分别驱动不同颜色)可以在活细胞里直接"看"表达时序的切换,宿主翻译关闭则可用同位素标记或核糖体图谱技术定量——核糖体足迹测序能一次性读出"感染后每一分钟核糖体在翻译谁",是当前研究翻译劫持的主力工具。工具与机制的这一对应,延续了第 1 章"工具定义学科"的主线。
补一个对照记忆:宿主 mRNA 的"一链一蛋白"与病毒的"一链多蛋白、一切多用(移码、剪接、切割)"是两套信息经济学——前者冗余可靠,后者紧凑但错一步满盘输。正因如此,病毒的翻译调控元件(内部进入位点、假结、蛋白酶切割位点)常成为药物筛选的"可成药RNA结构"新前沿。
最后补一个跨科对照:植物病毒的翻译劫持方式与动物病毒不同(植物细胞没有典型的帽子依赖扫描起始,许多植物 RNA 病毒用翻译增强子与三撇帽子类似物),但"用宿主没有的调控元件换取基因组紧凑"的原则完全一致——原则跨域成立,方案各写各的,这正是演化收敛在分子层面的展示。
再补一条经验法则:判断一个病毒"表达速度的量级",最快的线索是它的基因组极性——正义链进门即译(小时级内出现首批蛋白),负链要先转录(晚一到两小时),DNA 病毒的早期蛋白通常更晚。临床上的"暴露后预防窗口"与这个时间量级直接挂钩,机制时间轴与处置时间轴在这里重合。