4.2 基因组复制的分子策略
4.2 基因组复制的分子策略
一句话结论:无论哪类病毒,基因组复制都要回答两个工程问题——模板从哪来(复制中间体与复制酶的选择)、新链怎么不出错到崩盘(校对、修复与重组);复制在膜修饰的"复制工厂"里进行,既浓缩原料又躲开免疫监视。
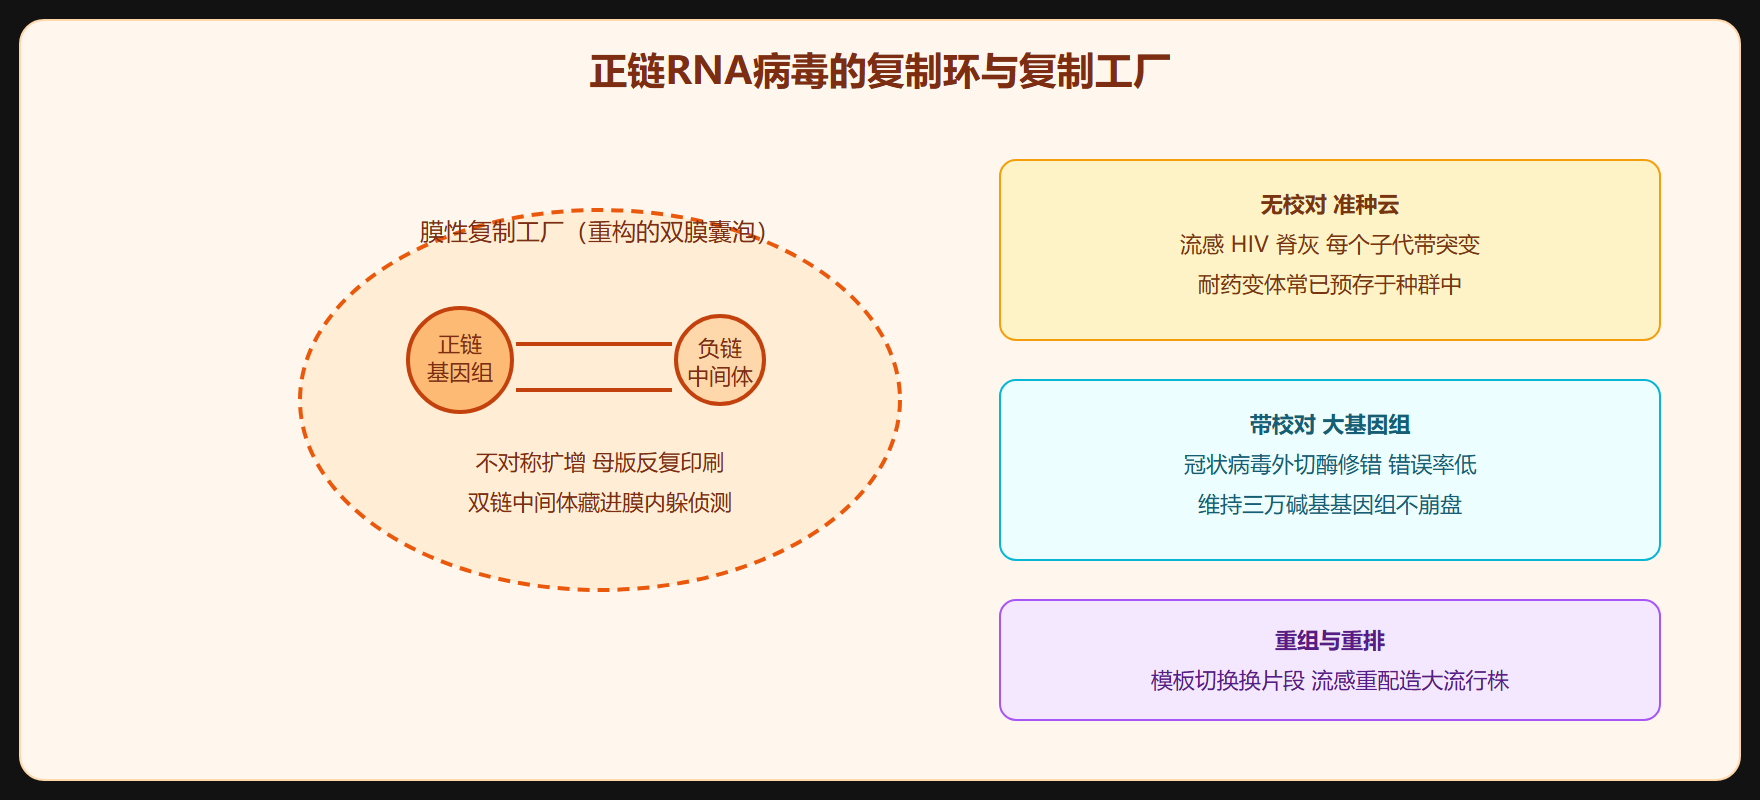
第 4.1 节造好了聚合酶等工具,本节让流水线全速运转。先看一条通用闭环:正链 RNA 病毒的复制循环是"正链先拷贝出负链(复制中间体),负链再批量产出正链"。注意比例失衡——负链通常只有正链量的几十分之一,一个复制中间体当母版,反复印出成千上万条子链。这个不对称有道理:负链不能翻译、不能被包装,攒多了是浪费;但它也是软肋,双链 RNA 中间体正是宿主模式识别受体最爱的报警信号,所以复制复合体都躲在膜泡里干这活。
复制的空间组织:膜性复制工厂
电镜下感染细胞胞质里出现的双膜囊泡,不是病变废物,而是病毒的"厂房"。脊髓灰质炎、诺如、冠状病毒都在重构的膜结构上组装复制复合体:聚合酶、模板、新生链全部锚定在膜曲面上。这样做有三重收益——底物局部浓度拉高几个数量级;双链 RNA 中间体被膜遮蔽,躲开视黄酸诱导基因蛋白一与黑色素瘤分化相关蛋白五的侦察;复制与包装就近衔接。流感则在细胞核里复制,转录与复制共用聚合酶,靠核蛋白的磷酸化状态决定同一聚合酶"这次是转录还是复制"——同一台机器,两种模式,调控信号切换。
DNA 病毒与逆转录病毒各自的关键发明
DNA 病毒复制要解决"线性末端复制问题"( lagging strand 末端缩短):疱疹病毒把基因组做成环形避免末端丢失,或末端带末端重复序列与包装信号;腺病毒用蛋白引物起始复制,回避 RNA 引物被切除后的末端缺损。乙肝病毒的策略最绕:基因组是部分双链的环状 DNA,进门先补齐成共价闭合环状 DNA(cccDNA),再经由 RNA 前基因组逆转录扩增—— cccDNA 微染色体盘踞在肝细胞核里,现有药物只能抑制逆转录而不能清除它,这是"功能性治愈难"的结构性原因,第 8 章治疗一节将回到这张图纸。
逆转录 HIV 的复制有一段"倒叙":在脱壳后的衣壳内,逆转录酶以 RNA 为模板合成负链 DNA、核糖核酸酶 H 水解 RNA 链、再合成正链,形成双链 DNA 的过程在靠近核孔时才完成。整合后,前病毒基因组的复制从此借道宿主:细胞每分裂一次,就免费替病毒拷贝一份——这是慢性感染的经济账。
出错的生意:突变、校对与重组
第 2 章的乘法(基因组长度乘错误率)在这里变成现实生产线。无校对的 RNA 聚合酶让每个子代基因组平均带零到几个突变,种群因此是"准种"——一团动态的变异云,而非克隆。准种给治疗两个教训:单一药物下,耐药突变体早已存在于云中,用药只是替它筛掉竞争者(联合用药的原理);减毒活疫苗的稳定性也取决于其准种宽度。
冠状病毒带外切核糖核酸酶(非结构蛋白十四)做校对,错误率压到其他 RNA 病毒的几分之一,因此敢养三万碱基的大基因组——但校对也意味着对破坏校对的核苷类似物更敏感(瑞德西韦的部分原理是"骗过校对掺入"或抑制聚合酶)。重组与重排则是另一种"纠错":模板切换让同源片段互换,负链分节段病毒的重排(流感基因重配)直接换装整段基因——大流行株的生成车间就在共感染细胞里。
案例复盘:新冠变异株是怎么"下线"的
把本节机制连起来跑一遍。一个感染者气道里同时存在多个毒株的情形并不罕见;共感染细胞里,两株病毒的负链中间体在同一复制工厂相遇,聚合酶跨模板切换产生重组,或八段式的重配在流感中直接换段。多数重组体有缺陷,但偶尔一个"传播增强加免疫逃逸"的组合被筛出——Delta 的刺突突变组合、Omicron 的血清型偏离,都是准种云被人群免疫压力反复筛选的产物。注意因果链的方向:变异是复制化学的必然产物,选择压力只决定谁能留下来。第 7 章流行病学一节会给出选择压力如何在人群尺度运作的模型。
易错点
其一,"复制"与"转录"在 RNA 病毒里常共用同一聚合酶,区别只是产物的命运(包装 vs 翻译),别当成两台机器。其二,负链中间体不能叫"反义基因组病毒"——术语上负链病毒产生的是"复制型正链(反基因组)",方向别绕晕:负链病毒先造正链反基因组,再以它为模板造更多负链基因组。其三,准种不等于"每个变异都能致病"——绝大多数突变有害,云的宽度代表适应性潜力,不是毒力潜力。
一句直觉:复制车间有三件套——模板、聚合酶、藏身膜;分析任何 RNA 病毒复制时,先找它的膜工厂长什么样,药物与免疫研究都围着这个工厂转。
复制知识的三个干预接口
复制机制的每个特征都对应一类干预思路。膜工厂依赖:复制复合体需要宿主脂代谢(脂肪酸合成、磷脂酰肌醇激酶)提供膜材料——宿主靶向的脂代谢抑制剂在多种 RNA 病毒上显示广谱活性,代价是选择性窗口要精细拿捏。校对缺失:核苷类似物容易蒙混过关(瑞德西韦、法匹拉韦、索磷布韦全系此原理);面对有校对的冠状病毒,"能骗过校对"成为分子设计的附加要求。模板切换:重组既是变异来源也是工具——体外的重组系统(感染性克隆、反向遗传)本质是研究者借用病毒的模板切换能力改写基因组,第 8 章的疫苗株组装正是建立在本节的分子机制上。
给研究者与高阶读者的一个提醒:复制速率的测量高度依赖方法——用报告基因测"表达速度"、用 qPCR 测"基因组增长"、用噬斑测"感染性产出",三者时钟不同、不能直接互比。文献里"复制更快"的结论要先问用的是哪个钟。这个习惯将贯穿第 7 章的诊断判读:数字的含义永远附着在测量方法上。
补一个数量级参照系:一轮感染周期内,一个细胞产出的子代基因组通常在一万到十万份量级,而一个感染性颗粒只需一份基因组——这种巨大的"产能冗余"既是病毒对药物压制与免疫打击的缓冲(少量残余即可反弹),也是 DI 颗粒栖身的空间。数量级感是理解病毒动力学(第 7 章)与治疗策略(第 8 章)的共同底座。
最后留一道思考题:如果一种新的广谱药物能可逆抑制所有 RNA 依赖的 RNA 聚合酶,它对哪些 Baltimore 类的病毒会无效?提示有三——不经过 RNA 中间体的 DNA 病毒、自带 DNA 聚合酶的痘病毒、以及依赖宿主聚合酶的那几类。这道题综合了第 1、2、4 三章的分类与复制知识,答对即说明"族谱加流水线"的双层框架已经建立。