2.2 荧光与磷光
2.2 荧光与磷光
本节摘要:分子吸收光子后并不总是把能量变成热——相当一部分会以更长波长的辐射重新放出,这一"红移再发射"就是荧光;若经三重态兜了一圈、延迟达毫秒级才发光,则称磷光。两者的能级图是理解量子产额、寿命测量、光漂白与氧传感的共同钥匙。
本节对应旅程中光子身份被改写的一站:吸收之后原地重生为另一粒光子。第 4 章的探针设计、第 5 章的术中导航都建立在这套机制上。
从一个反例说起
新手常以为"探针越亮越好"。可实际做活体实验的人都知道,亮度翻倍往往伴随背景也翻倍,信噪比纹丝不动。真正拉开差距的是另外三个量:激发谱与发射谱的间隔(斯托克斯位移)、发射态的存活时长(荧光寿命)、以及这个态在光照下会不会永久报废(光稳定性)。这三个量全部写在那张看似枯燥的雅布隆斯基能级图上。先看图,再看它如何解释一切。
核心机理:一张图管四种现象
分子吸收光子后从基态跃迁到第一单重激发态的高振动能级,在一皮秒内以振动弛豫掉到该态的最低振动态;停驻数纳秒后放出一粒长波长光子回到基态——这段停驻时间就是荧光寿命。如果系间窜越把它甩进三重态,那里禁阻程度高、出口窄,停留可达微秒到毫秒级,出来的就是磷光。围绕这张图有四个必考推论:
- 为什么发射总比激发更红:弛豫先把高振动能级的能量耗掉了,发射只能从最低振动能级出发,能量损失决定了斯托克斯位移;
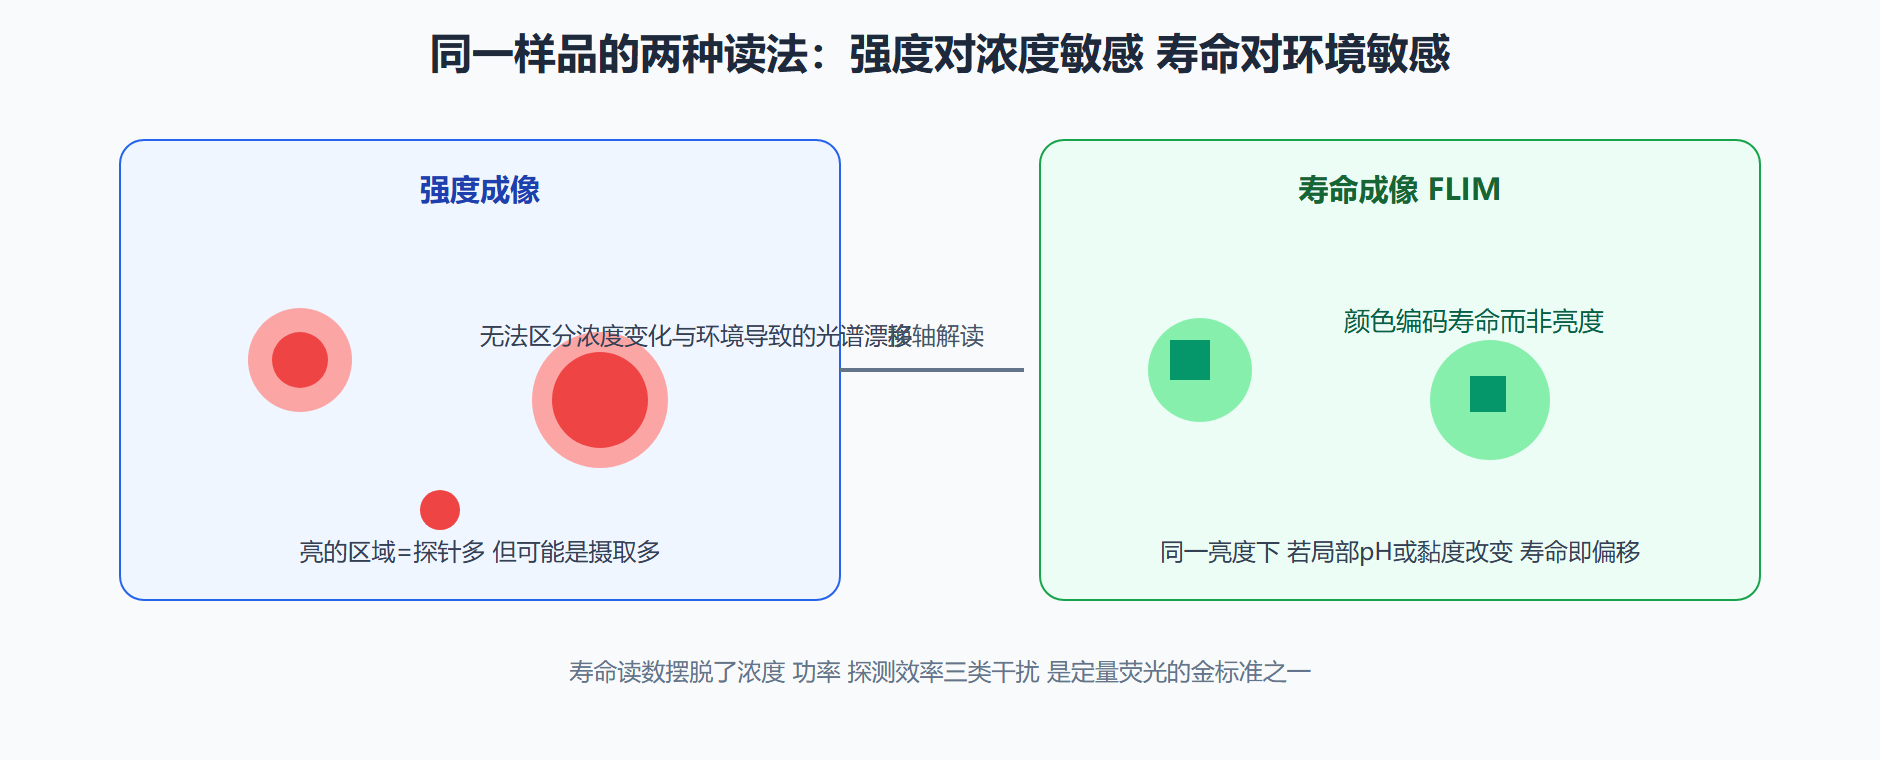
- 为什么寿命测量抗干扰:强度信号受浓度、照明功率、探测效率污染,而寿命是分子固有参数,只要脉冲与响应的时间标定可靠,浑浊组织里照样测得准;
- 为什么氧气既是敌人也是传感器:基态氧是最常见的猝灭剂,专偷三重态电子的能量——磷光在缺氧处反而增强,这正是商业化的组织氧探针的工作原理;
- 为什么会漂白:激发态偶尔走上不可逆的光化学岔路,分子报废不再发光。漂白不是全坏处,FRAP 技术恰是靠定点毁掉一片荧光再观察恢复速度来测分子扩散。
图 2-2 强度像与寿命像看见的是不同的世界
完整案例:判读一组让人困惑的钙成像数据
背景:某团队用一种红色钙指示剂记录神经元活动,发现刺激时段信号忽大忽小且基线逐分钟爬升,一度怀疑仪器出了问题。操作端他们补做了两组对照:其一用相位法测指示剂的荧光寿命,其二监控同一视野内的参比通道(不响应钙的染料)。结果发现强度通道的基线爬升被参比通道同比例复现——那是焦平面缓慢漂移带来的照明不均,而非生物事件;而真正对应刺激响应的部分,在寿命域同样出现明显缩短,幅度约百分之五。解读由此清晰:寿命测量把浓度无关的环境变化单独拎了出来,强度测量则把两类效应拧在一起。变式方案是把寿命作为定量主轴、强度只用于配准与形态分割,这条"双通道分层读取"思路如今已是活体钙成像的标准功课之一。
再补充一点量的直觉:典型有机染料的寿命是一至六纳秒、量子产额零点一到零点九;水母绿色荧光蛋白类约两到四纳秒;三重态主导的钌配合物磷光寿命数百纳秒到微秒级,正因足够长,才能与自体荧光的短寿命干净地分离——这也是为什么深部组织磷光测温测氧方案偏爱贵金属配合物而不是有机染料。
工程实践要点
- 滤光片组的设计顺序:先按目标探针定激发带宽与二向色镜截止沿,再留出探测器端抑制串扰的余量,反着来会浪费一半信号;
- 曝光功率的账要算到每帧每个像素:漂白速率正比于激发强度,同等光剂量下延长积分比提高功率划算;
- 氧敏感场景慎用长寿命探针:缺氧组织的三重态堆积既放大磷光也可能加剧光动力损伤,详见第 5 章治疗一节;
- 选频计数优于峰值采样:时域寿命测量中早光子的统计权重更高,噪声环境下这是稳定性的最后一道防线。
⚠️ 常见坑:把淬灭当成漂白。前者可逆(氧分压回升信号复原),后者永久——区分办法是关灯半小时再看信号是否回来。
💡 关键直觉:荧光是一场精确计时的接力赛,你调的不是光的强弱,而是激发态那几纳秒里发生了什么。
寿命测量的两种实现路线
时域与频域是荧光寿命成像的两条主线,各有清晰的适用画像。时域法用脉冲激光逐次激发,记录衰减曲线后拟合,直观且兼容任意衰减形状;代价是需要时间相关单光子计数这类相对昂贵的采集链,累积足够光子的耗时也长。频域法用调制光激励,测量发射相对于激励的相位延迟与调制度退化,换算寿命的速度快、硬件门槛低,适合大视场快速筛查,但多组分混合时解析力弱于全曲线拟合。
| 维度 | 时域计数法 | 频域相位法 |
|---|---|---|
| 原理 | 直接记录衰减 | 相位与调制度反演 |
| 速度 | 慢 分钟级视野 | 快 秒级可行 |
| 多组分分辨 | 强 | 中 |
| 设备门槛 | 计数电路昂贵 | 调制光源加锁相即可 |
选择的分水岭问题是:**你要的是几个已知寿命成分的相对占比,还是一条待剖析的完整衰减?**前者频域足够,后者请上时域。另外无论哪条路,仪器响应函数的日检都是底线——把它卷积进拟合模型还是通过预宽化扣除,各实验室规范不同,混用会把系统宽度误读成寿命变短,这是新手送修设备最多的假故障之一。
自体荧光这位隐形室友
讨论外源荧光时必须给自体荧光留一个正式席位。组织的内源性发光体包括还原型辅酶(激发四百纳米附近,发射蓝区)、黄素类辅酶(激发四百五十纳米附近,发射绿区)、胶原与弹性蛋白的交联荧光以及脂褐素。它们是内生代谢的无创窗口——自动体成像正是利用两族群比值来估测氧化还原状态;但同时它也是短波长通道的背景税。设计实验时记一条简单的避让原则:尽量让探针的发射落在六百纳米以上,或在分析端用寿命差异把纳秒级自体荧光从更长的探针信号里分离出去。
本节要点回顾
- 雅布隆斯基图统一解释红移、寿命、淬灭与漂白四大现象;
- 寿命是分子身份证,强度是市场行情——定量结论优先采信前者;
- 磷光的长寿命源于三重态禁阻,既是弱点也是被利用的传感窗口;
- 所有现象都能落到能级图的分支概率上去解释,别背结论,背分支。
理解了单分子的改造术,下一节我们把舞台交给极端条件:当激光强到一纳秒内一平方微米承受相当于十亿盏台灯的能量密度时,组织里的光学故事会如何改写?