2.1 微生物与细胞生理学
2.1 微生物与细胞生理学
本节摘要:SOURCE 2.1:限氧下大肠杆菌切换混合酸发酵;CHO 高密度培养氨积累抑制生长;需理解代谢流与环境响应。
动手:观察生理切换
实验情境:E. coli 批培养,DO 降至 0 后取样测乙酸/乳酸。
| 条件 | 预期代谢 | 操作要点 |
|---|---|---|
| 充足 DO | 呼吸代谢 | 维持 kLa > OUR |
| 限氧 | 混合酸发酵 | 记录 OD 平台 |
| 高密度 CHO | 氨积累 | 监测 Glc/Gln |
代谢网络:碳流如何被分流
细胞生理的工程价值,在于它把"环境信号"翻译成"代谢状态",进而决定产物速率。理解这一翻译过程,要从中心代谢的三个模块看起:
- 糖酵解(EMP):葡萄糖经磷酸化、裂解生成丙酮酸,每摩尔葡萄糖净得 2 ATP 与 2 NADH。这是几乎所有工业微生物的碳流主干道。
- TCA 循环:好氧条件下丙酮酸进入 TCA,氧化为 CO₂,产生大量 NADH/FADH₂,供呼吸链合成 ATP。
- 磷酸戊糖途径(PPP):提供 NADPH(还原力)与核糖(核酸合成前体)。NADPH 是许多产物合成(如脂肪酸、氨基酸)的关键还原力,常成为通量瓶颈。
分流比例不是固定的,而是由酶活、效应物浓度与氧化还原状态共同决定。工程上常见的做法是通过基因改造或培养条件,把碳流导向目标通路——但前提是先能测量这些分流,这就要靠代谢通量分析。
限氧切换:混合酸发酵的机制
大肠杆菌在氧充足时走呼吸代谢,1 mol 葡萄糖约产生 32 mol ATP;一旦溶氧(DO)趋零,呼吸链无法氧化 NADH,细胞被迫启用发酵途径再生 NAD⁺。此时产生的主要副产物是乙酸、乳酸、甲酸与乙醇——统称混合酸发酵。每摩尔葡萄糖仅得 2 mol ATP,能量效率骤降,表现为比生长速率下降、OD 进入平台期。
这一切换的工艺后果非常直接:搅拌或通气不足导致局部限氧,可能在不察觉间把"呼吸培养"变成"混合酸发酵",乙酸积累又反过来抑制生长与产物合成。因此对高密度需氧培养,维持 kLa 显著高于 OUR 不是"选项"而是"底线";而对某些产物(如用大肠杆菌生产丁二酸),工程师反而主动制造限氧条件——说明"代谢切换"是双刃剑,关键在于知道自己在利用哪一面。
哺乳动物细胞的特殊生理
CHO 等哺乳动物细胞与微生物有本质差异:
- 能量代谢:有氧条件下也倾向糖酵解产乳酸(Warburg 样效应),乳酸积累使 pH 下降,需要碱液中和或切换碳源。
- 谷氨酰胺代谢:谷氨酰胺既是氮源又是能量源,代谢后释放氨(NH₃)。高密度培养中氨积累超过一定阈值(通常 3–5 mM)会抑制生长、改变糖型甚至诱导凋亡。应对策略包括降低谷氨酰胺浓度、改用谷氨酰胺二肽、在补料中切换 Gln-free 配方。
- 无生长产物解耦:抗体等重组蛋白常在细胞停滞期分泌,因此工艺要区分"生长阶段"与"生产阶段",用温度、营养或渗透压控制切换。
异质性与表型漂移
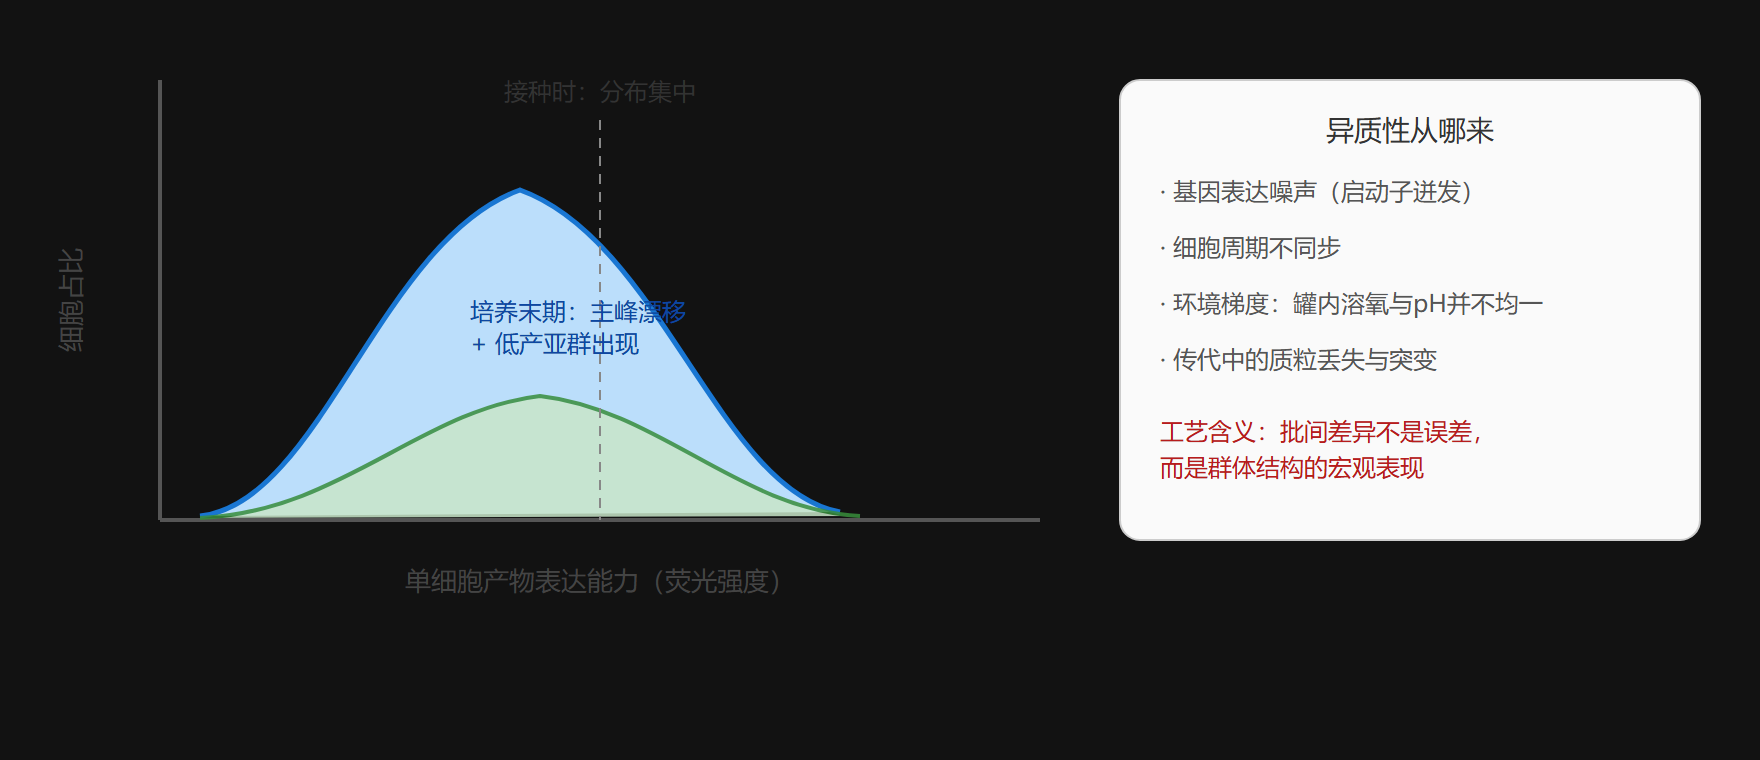
同一反应器里的细胞并不完全相同:不同细胞处于不同细胞周期、不同代谢状态、甚至不同拷贝数表达水平。这种群体异质性在放大后会被加剧——传质梯度导致不同区域的细胞经历不同环境,进而产生表型漂移。这也是"摇瓶结论不可直接移植到反应器"的根本原因之一。
同一批培养中的表型异质性分布
用通量测量验证假设
单细胞测序与 13C-MFA 代谢通量分析使「黑箱」转向动态功能——动手设计标记实验可验证通量假设。其基本思路是:在培养基中加入 13C 标记的葡萄糖,培养至稳定后测定代谢物的同位素异构体分布,再用模型反推各通路通量:
# flux_demo.py —— 13C 标记实验的简化通量逻辑 # 假设:葡萄糖经糖酵解(EMP)与磷酸戊糖途径(PPP)分流 # 目标:根据标记数据估计分流比例 alpha alpha = 0.0 # PPP 分流比例,待拟合 emp_flux = 1.0 - alpha # 归一化碳流 ppp_flux = alpha # 模拟检测到的 M+1 标记物比例(简化示意) m1_measured = 0.35 # 实测 13C 单标记物比例 m1_predicted = 0.10 + 0.25 * ppp_flux # 简化模型 alpha_estimate = (m1_measured - 0.10) / 0.25 print(f"估计的 PPP 分流比例 = {alpha_estimate:.2f}") # 输出: 估计的 PPP 分流比例 = 1.00(示意)
注意:真实 13C-MFA 需要同位素异构体矩阵与代谢网络模型,这里只展示"标记数据→通量反推"的思维骨架。动手实践时建议使用成熟工具(如 OpenFLUX2、INCA)。
再给一个可立即上手的生理核算:用氨与乳酸的积累速率反推工艺还剩多少"生理余量",在高密度 CHO 培养中比单看活率更早预警。
# cho_inhibitor_budget.py —— 抑制物积累余量核算 def inhibitor_budget(nh3_mM_now, lactate_mM_now, rate_mM_per_h, nh3_limit=4.0, lactate_limit=40.0, hours_left=72): nh3_final = nh3_mM_now + rate_mM_per_h["nh3"] * hours_left lac_final = lactate_mM_now + rate_mM_per_h["lactate"] * hours_left return { "氨预测终浓度(mM)": round(nh3_final, 1), "乳酸预测终浓度(mM)": round(lac_final, 1), "氨超限?": nh3_final > nh3_limit, "乳酸超限?": lac_final > lactate_limit, } print(inhibitor_budget(1.2, 12.0, {"nh3": 0.05, "lactate": 0.4})) # 氨终浓度 4.8 mM 超过 4 mM 阈值 → 72 h 前必须降 Gln 补料或换二肽源
⚠️ 常见坑:假设摇瓶与反应器细胞行为一致——群体异质性导致表型漂移。
💡 关键直觉:未来反应器要管理细胞的「决策」,不只温度 pH。
重点提炼
- 生理状态决定产物合成窗口
- 中心代谢分流是工程干预的抓手
- 限氧/营养限制触发代谢切换
- 哺乳动物细胞氨积累是主要抑制源
- 异质性是稳健性敌人
- 13C-MFA 把代谢假设变成可测通量