2.2 生物反应动力学
2.2 生物反应动力学
本节摘要:SOURCE 2.2:Monod 方程描述比生长速率;次级代谢产物常不在最大 μ 点合成;需多尺度耦合模型。
动手:Monod 参数拟合
经典式:μ = μmax · S / (Ks + S)
其中 μ 为比生长速率(h⁻¹),S 为限制性底物浓度(g/L),μmax 为最大比生长速率,Ks 为半饱和常数(μ 达到 μmax/2 时的底物浓度)。Monod 是经验方程,但能很好地捕捉大多数工业培养中"底物充足时接近指数生长、底物耗尽时趋于停滞"的行为。
从批培养数据拟合参数
批培养中每个时间点的比生长速率可从生物量对数差分近似得到:μ = d(ln X)/dt。然后对 (S, μ) 数据做非线性最小二乘拟合:
# fit_monod.py —— 用 scipy 拟合 Monod 参数 import numpy as np from scipy.optimize import curve_fit def monod(s, mu_max, ks): return mu_max * s / (ks + s) # 离线数据:残糖 S(g/L) 与对应比生长速率 mu(h^-1) s_data = np.array([0.1, 0.3, 0.8, 2.0, 5.0]) mu_data = np.array([0.04, 0.10, 0.16, 0.22, 0.26]) popt, pcov = curve_fit(monod, s_data, mu_data, p0=[0.3, 0.2]) mu_max, ks = popt perr = np.sqrt(np.diag(pcov)) print(f"mu_max = {mu_max:.3f} ± {perr[0]:.3f} h^-1") print(f"Ks = {ks:.3f} ± {perr[1]:.3f} g/L") # 检查拟合质量 pred = monod(s_data, *popt) r2 = 1 - np.sum((mu_data - pred)**2) / np.sum((mu_data - mu_data.mean())**2) print(f"R² = {r2:.3f}")
拟合完成后务必检查两点:一是 R² 与残差分布是否显示系统偏差(若残差呈"弯月形",说明真实动力学偏离 Monod,可能受抑制项影响);二是参数的置信区间是否过大(数据点太少或底物范围太窄都会导致参数不可辨识)。这是把"数据"变成"参数"的最后一步,也是后续所有仿真的基础。
产物形成动力学:三类经典模型
产物是否与生长同步,决定了补料与诱导策略。工程上常把产物形成分为三类:
| 现象 | 动力学含义 | 工艺策略 |
|---|---|---|
| 青霉素 | 生长偶联后合成 | 两阶段培养 |
| 抗体 | 应激与折叠 | 温和条件 |
| 底物抑制 | 高 S 降 μ | fed-batch |
- 生长偶联型:产物生成速率与比生长速率成正比,如乳酸、乙醇、初级代谢产物。对策是让细胞尽快生长到高密度。
- 非偶联型(次级代谢):产物在生长减缓或停止后才大量合成,如青霉素、多数抗生素。对策是"两阶段培养":第一阶段快速生长,第二阶段限制营养触发产物合成。
- 混合型:部分与生长偶联,部分独立。比如许多氨基酸发酵,生长与生产部分重叠,需精确设计补料曲线。
青霉素就是教科书级案例:菌体先在对数期快速生长,当葡萄糖限制或环境变化时转入次级代谢,青霉素合成速率反而升高。若一味用最大 μ 作为补料唯一依据,就等于让细胞永远停在生长模式,青霉素永远产不出来。
抑制效应:动力学方程的现实修正
真实系统里还常见两类抑制:
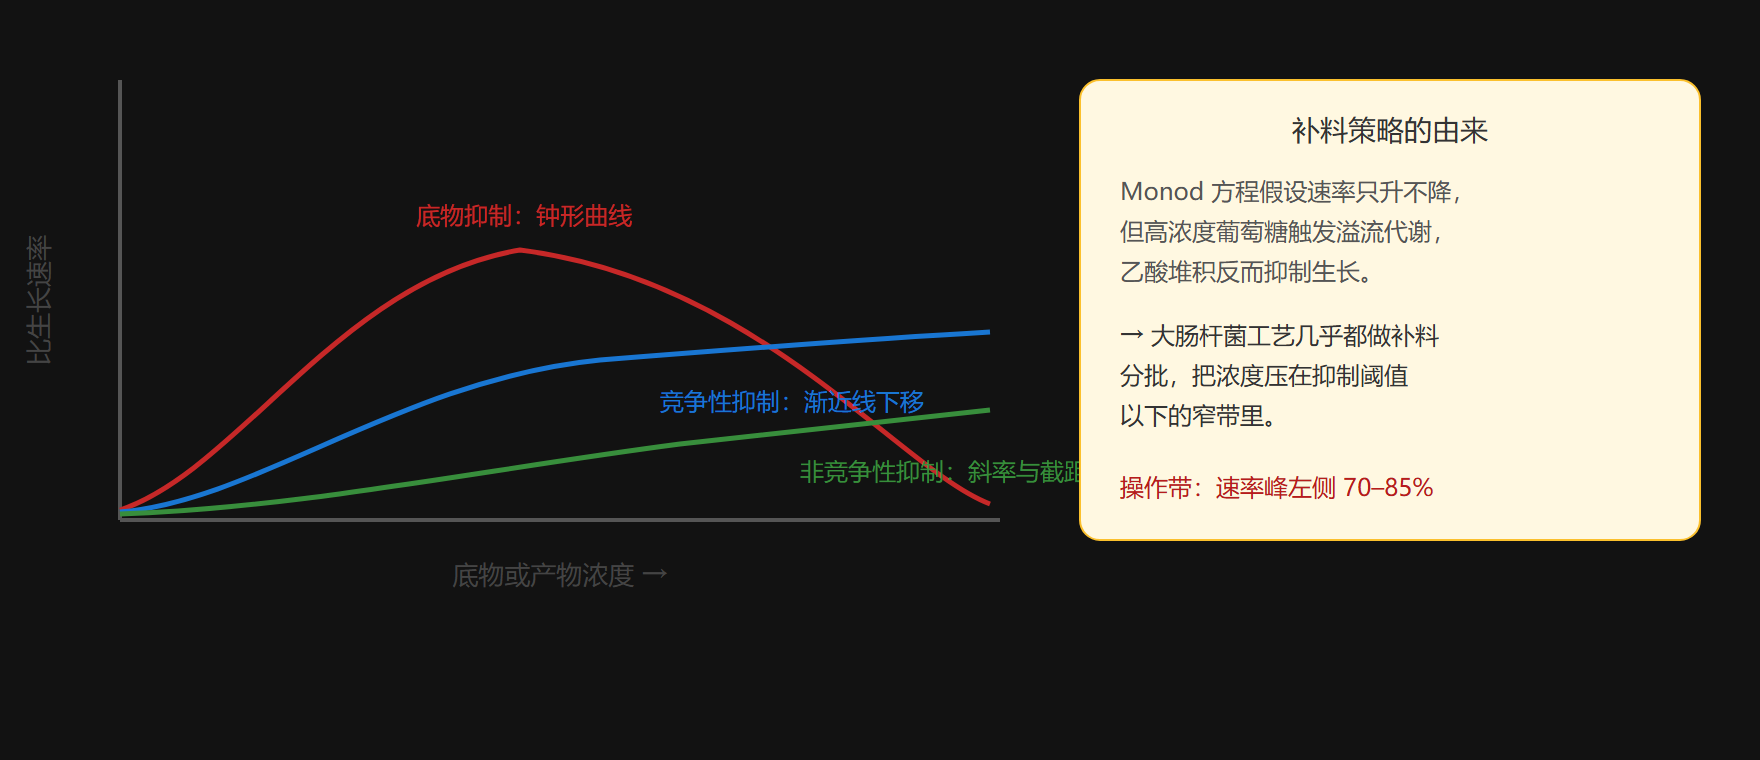
- 底物抑制:高浓度底物反而降低比生长速率,可用 Andrews 方程修正:μ = μmax·S/(Ks + S + S²/Ki)。底物抑制是补料工艺(fed-batch)存在的根本理由——通过持续小剂量补糖,把反应器内底物浓度维持在不抑制的水平。
- 产物抑制:产物积累反过来抑制生产,如乙醇抑制酵母、乳酸抑制乳酸菌。对策包括连续移除产物(透析培养)、选育耐产物菌株、或转向连续工艺。
维持代谢同样不可忽略:细胞即使不生长也要消耗底物维持生命,用维持系数 ms(g 底物/g 生物量/h)描述。在低比生长速率下,维持消耗占比上升,导致表观得率下降——这是补料后期滴度增长变缓的原因之一。
三种抑制效应的速率曲线对比
传质与动力学的耦合
好氧培养中,动力学方程必须在氧传递的约束下求解。细胞耗氧速率 OUR = qO2·X,而反应器供氧上限 OTR = kLa·(C* − CL)。当 OUR 接近 OTR 时,溶氧 CL 趋零,实际比生长速率被氧限制——此时"Monod 预测的 μ"与"实际 μ"严重背离。因此动力学模型与传质方程必须耦合求解,这正是 3.3 节反应器工程与 4.2 节数字孪生的共同基础。
某企业 DOE 提滴度 30% 却无法解释机制,直到代谢通量模型发现缓解了 NADPH 瓶颈——机理透明才稳健。这个案例说明:统计显著性只告诉你"改了有用",机理模型才告诉你"为什么有用"。只有机理清晰,优化结果才能在不同规模、不同批次间迁移;否则换个菌株、换个规模,经验就作废。
把传质耦合也做成动手题:给定 kLa 与目标细胞浓度,反推允许的最大补糖速率,这是把动力学从"描述工具"升级为"设计工具"的关键一步。
# our_budget.py —— 由供氧上限反推最大细胞浓度与补糖上限 kLa, C_star, qO2 = 400.0, 0.21, 5e-3 # 1/h, mmol/L, mmol/(g·h) OTR = kLa * C_star # mmol/L/h X_max = OTR / qO2 # g/L qs_max = OTR * (1/0.39) / X_max * 0.1 # 粗略按 Yxs≈0.39 g/mmol 折算 print(f"供氧上限 OTR={OTR:.0f} mmol/L/h → X_max≈{X_max:.0f} g/L") # 补糖速率一旦使 OUR 越过 OTR,μ 即被氧掐住,糖只变成乙酸
⚠️ 常见坑:用最大 μ 作为补料唯一依据——次级代谢最优常在亚稳态。
💡 关键直觉:动力学回答「多快、多少、如何引导」。
本章回顾
- Monod 是起点非终点
- 产物形成三类模型决定工艺策略
- 抑制效应推动 fed-batch 与连续工艺
- 产物合成常与生长解耦
- OUR 一旦越过 OTR 上限,μ 即被传质掐住,补料速率须按 kLa 反推设定
- 机理模型优于纯黑箱 DOE