1.1 生命系统中的动物界定位
1.1 生命系统中的动物界定位
本节摘要:给动物界(Animalia)划界,凭的不是"会动"这类日常印象,而是一整套演化中定型的约束:胚层分化与原肠作用、靠吞食他者的内消化、细胞不设壁、按既定程序完成的发育。本节逐条剖析这四项"底层协议",并给出动物在生命系统里的独特分量——地球生态状况最早的"心电图纸"。
学习目标
阅读完本节,你应当能够:
- 论证"能够移动"为何不能拿来定义动物界;
- 阐明胚层与原肠作用为何是只有动物才拥有的发育装置;
- 由异养营养推导出移动、供氧、排废三项硬性配套;
- 说明失去细胞壁如何换来细胞迁徙与精细的细胞间连接;
- 对比动物的定额发育与植物的终生生长;
- 列举动物推动地球物质循环的三个数字证据。
一、先破后立:动物不等于"会动的生物"
不妨从反例切入。栖息在深海热泉的巨型管虫(Riftia pachyptila)成体没有肠子,能量全由体内共生的细菌供应,"吃与消化"这套流程在它身上整体缺席;眼虫白天进行光合作用,转头又能吞食颗粒、划水游动;黏菌一度被归入真菌,分子证据却把它放到变形虫一边。倘若定义停留在"能动"或"进食",这些镶边的案例立刻让定义千疮百孔。
反方向的推论同样成立:许多细菌装备鞭毛、运动能力不俗,而植物并未配备肌球蛋白 II 与电压门控离子通道协同的收缩单元。可见运动不过是功能的外显,划界必须落回系统发生的根基。在现代系统发生学中,动物界这个"界"(Kingdom)早已不是按外貌相似度归堆的抽屉,而是一个拥有共同祖先、共享核心发育遗传模块的单系分支。它的根扎在真核域内部一次无法回头的分岔——后生动物亚界(Metazoa)的出现,意味着真核细胞从单打独斗的生活方式,切换到了多细胞协作的全新模式。
这次切换绝非量变的堆积,而是质的涌现,需要一整套全新的"协作章程"作为前提:细胞之间要备好可遗传的黏附装置(钙黏蛋白/连锁蛋白复合体),要留出可控的程序性死亡通路(半胱天冬酶级联),要搭起能同步响应的信号网络,而其中最要紧的,是发育时间轴上不容错乱的时序管理。于是有了动物界的第一层定位:一类以原肠胚为发育起点、以胚层为解剖底稿的生命体系。
二、原理之一:胚层与原肠——动物专属的发育装置
在已知生物中,只有动物演化出了胚层分化加原肠作用的普适发育机制。水母只有内外两胚层,脊椎动物再添中胚层凑成三层;原肠作用的价值不止于改变胚胎外形,它还是空间信息的第一次大规模编译——把基因表达的线性序列,译成覆盖三维身体的坐标矢量场。Wnt、BMP、Nodal 这几套高度保守的信号梯度在幕后驱动全程,其数学骨架可以看成形态发生素在胚胎范围内的扩散-反应过程:某个信号分子在某时某处的浓度,由扩散系数、局部合成与降解速率以及细胞的响应阈值联立决定。动物界的全部形态多样性,归根结底是同一套动力学在不同边界条件下的生物学解。
这套装置的排他程度如何?植物有多细胞体制,却没有原肠;真菌的菌丝网络再复杂,也不见胚层;原生生物里纵然有眼虫那般灵巧的趋光行为,终究被单细胞的物理尺寸锁死。
基干门类把这套协议展示得最直白。海绵的领细胞(choanocyte)几乎就是定居下来的领鞭毛虫:纤毛打转推动水流,微绒毛圈拦下细菌,单个细胞就包办了滤食、获氧与排废——它是通向动物起源的一扇敞开的活窗。海绵骨针的生物矿化另有看点:硅蛋白、碳酸酐酶等专职分泌蛋白按部就班地调度硅质沉积,说明早在神经与肌肉登场之前,动物就已练成组织层面的生化分工。刺胞动物则交出了另一份奠基之作——网状神经与刺细胞联动的系统:刺丝囊相当于纳米尺度的弹射机构,发射依赖膜电位翻转与钙离子瞬变。既无中枢,也无极化突触,刺胞动物却已让基于电化学信号的行为回路运转了六亿多年,水母的节律游泳便是明证。刺胞动物则交出了另一份奠基之作——网状神经与刺细胞联动的系统:刺丝囊相当于纳米尺度的弹射机构,发射依赖膜电位翻转与钙离子瞬变。既无中枢,也无极化突触,刺胞动物却已让基于电化学信号的行为回路运转了六亿多年,水母的节律游泳便是明证。
三、原理之二:异养——能量路线对身体的整体改写
"动物是异养生物"这句话,常被压缩成"它们吃别的东西",恰好漏掉了重心。放进动物的语境,异养意味着获取能量的方式对细胞器布局、代谢路线乃至体型上限的整版重写。
植物为光合服务细胞:大液泡撑起膨压,纤维素壁负责加固。真菌走的是另一路——分泌胞外酶,在体外把底物拆解后再吸收。动物则挑了第三条路:内消化,即打造一条封闭、带定向流体的管状处理线,从刺胞动物的袋状消化腔,到环节动物贯通的头尾消化道,再到哺乳动物肝、胆、胰与十二指肠的协同编队。这条管道称得上动物体内资历最老、保守性最强的基础设施。
内消化附带着三项硬性配套。其一,位移能力:食物散布、会跑或带刺,动物必须主动出击,肌动蛋白-肌球蛋白收缩体系与神经传导因此携手进化。其二,供氧体系:代谢率攀高就要更高的输氧效率,从扁形动物靠体表扩散,到昆虫的气管网络,再到脊椎动物的肺与循环耦合,氧的输送效率直接封顶了体型的天花板。其三,排废管理:蛋白质代谢放出氨、尿素、尿酸等含氮废物,它们的毒性与溶解度共同决定了排泄器官从原肾管、后肾管到肾脏的形态接力,也左右着水盐平衡的整体方案。
动物内部同样存在讲究的异养梯度:海绵靠领细胞滤食,以胞内消化为主;刺胞动物胞内、胞外两套并用;绝大多数两侧对称动物则完全倚仗分区作业的胞外消化。例外恰好把规则映得更亮——珊瑚虫与虫黄藻的搭档表面上像"自养",实际是宿主供给无机盐与二氧化碳,藻类固定的碳再由宿主细胞主动摄取,异养的本质分毫未改,只是能量来源挪了个生态位。
四、原理之三:没有细胞壁的"坦诚相见"
植物和真菌的细胞壁既是物理围栏,也是信息围栏:信号要么靠激素慢慢弥散,要么走胞间连丝这类专线。动物细胞则裸露在细胞外基质(ECM)里——ECM 绝非惰性填料,而是由胶原蛋白、纤连蛋白、层粘连蛋白与糖胺聚糖织成的动态信息干道。整合素受体把 ECM 的力学属性(刚度、形貌)实时换算成胞内指令,进而指挥细胞骨架的重排、迁徙的去向甚至基因的开合,这便是机械转导。
"裸露"换来两项深远的变革。第一,细胞迁徙成为常规操作:胚胎里的神经嵴细胞能跋涉数毫米远征,成体的免疫细胞可以挤过血管内皮围堵病原——对带壁的生物而言近乎天方夜谭。第二,细胞连接走向精密分工:紧密连接封死上皮缝隙,桥粒扛住剪切拉力,间隙连接让电信号与小分子直达邻里,化学突触更把细胞间通讯推到毫秒级的时序分辨率——学习与记忆的生物学地基,正是突触强度的可调。回头看植物:胞间连丝受胼胝质看管,撑不起高频电脉冲;真菌的菌丝孔虽容细胞器穿行,却谈不上方向调度。动物细胞舍弃了壁,不是暴露弱点,而是把一道物理限制兑换成了信息带宽。
五、原理之四:定额发育——从"边长边活"到"按程序施工"
原生生物谈不上严格意义的发育,分裂即生活。植物采取无限生长策略:分生组织到老都在分裂,最终的形态是基因与环境持续谈判的开放结局。两侧对称动物则执行定额发育:自受精卵至性成熟,按序通过一串不可逆的阶段,成年后的体长与器官数目基本封账。
这种定额感写在基因组里的发育时钟上:Hox 基因簇的共线性表达负责头尾分区的精确落位;Notch-Delta 信号的振荡节拍给体节定时;端粒酶活性的整体下调则给体细胞规定了复制额度。"按程序施工"也让动物成为对环境最敏感的类群——母体营养、温度、光周期都能借表观遗传机制改写发育路线,蝗虫在群居型与散居型之间的切换即是典型。但也正是这份可塑性,让同一套基因组得以在不同生境中"编译"出迥异的生存方案。
| 维度 | 动物界 | 植物界 | 真菌界 |
|---|---|---|---|
| 获取能量 | 异养、体内消化 | 光合自养 | 吸收、体外分解 |
| 细胞外壁 | 无,以 ECM 替代 | 纤维素 | 几丁质 |
| 发育路线 | 定额、有终点 | 终生生长 | 无胚层程序 |
| 信号时效 | 毫秒级电化学 | 激素梯度扩散 | 菌丝内流动 |
| 细胞迁徙 | 常态(神经嵴、免疫细胞) | 极少 | 原生质流动 |
⚠️ 常见坑:拿"高等/低等"当分类学术语使用。现代分类学只认"基干"与"冠群"这类描述系统发生位置的措辞——海绵并非"没画完的草稿",而是把多细胞生活的最小可行配置稳稳运行了六亿年的成熟解。
六、功能的分量:动物是生命之网的运输干线
定位的最后一层落在功能上。动物是地球表层物质循环里的"活体阀门":海洋浮游动物昼伏夜出的垂直洄游撑起全球规模最大的生物泵,每年把约十的十五次方克碳押送进深海;蚯蚓与土壤节肢动物的钻掘让全球土壤通气性平均抬升约 300%,陆地初级生产力随之受惠;授粉动物则托住 75% 以上被子植物的繁殖命脉。2023 年《Science》的全球传粉网络研究测算:传粉者多样性砍半,作物产量的波动幅度放大 2.3 倍——动物的功能从来不是个体简单的相加,而是网络节点之间涌现出的协同。同年的另一份评估指出,动物类群的种群起落平均比植物早 3.7 年、比土壤微生物早 8.2 年对环境压力作出响应:动物,就是地球生态健康最早的那份心电图。
要点速记
- 要点一:动物界的划界依据是后生动物亚界的四项约束——胚层与原肠、异养内消化、无细胞壁、定额发育,而非运动这类表型;
- 要点二:原肠作用是空间信息的首次大规模编译,幕后推手是 Wnt、BMP、Nodal 信号梯度,为动物独享;
- 要点三:异养等于整版重写,倒逼位移、供氧、排废三套系统同步升级;
- 要点四:舍弃细胞壁换回细胞迁徙与毫秒级通讯,是一场信息带宽的战略交换;
- 要点五:海绵与刺胞动物保存的是"未被覆盖的底层协议",不是演化的边角料;
- 要点六:生物泵、土壤通气与传粉网络都有动物的份额,其种群波动是环境压力的先行指标。
下一节转去看人类如何替这个纷繁的王国立规矩——由林奈的抽屉到基因组的概率云,分类学的范式更替本身就是一部认知革命史。
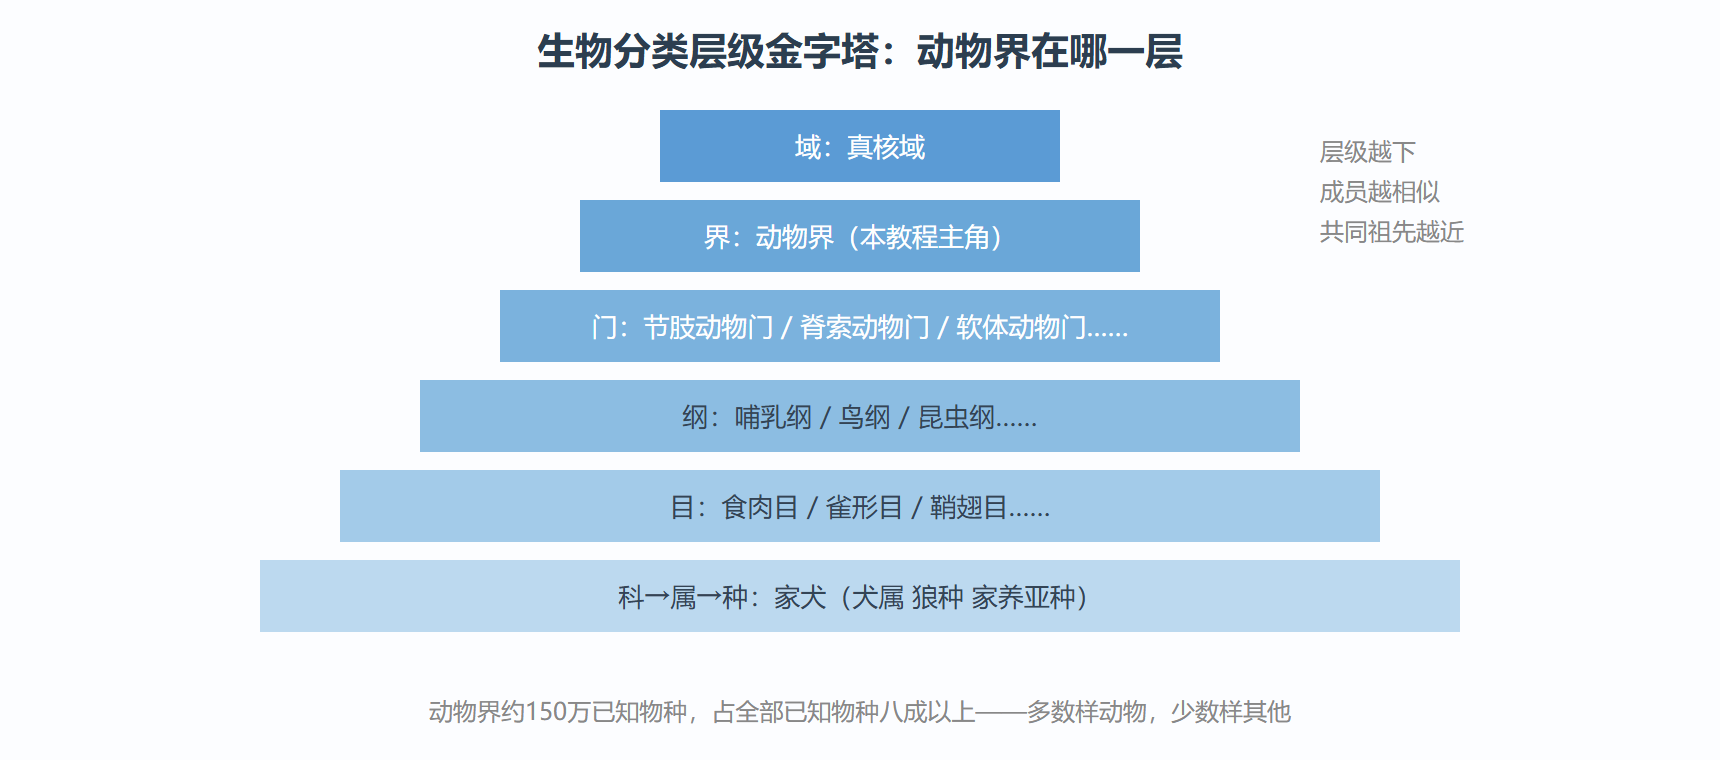
分类层级金字塔
图:从域到物种的层级结构与动物界位置
六、数据档案与估算实例:动物界在生命树上的坐标
把前文的定性判断落到数字上,动物的"定位"才可被检验。下表给出主要类群的物种数与体制关键特征,来源口径为近年分类学综述的合并估计。
类群,已描述物种数(约),营养方式,细胞壁,发育体制,代表物种 细菌域,5000+描述/估百万级,自养或异养,有(肽聚糖),无胚层,大肠杆菌 Escherichia coli 古菌域,描述数百/估万级,化能自养或异养,有(假肽聚糖),无胚层,嗜热硫化叶菌 Sulfolobus acidocaldarius 真菌界,约148000,吸收式异养,有(几丁质),无胚层,酿酒酵母 Saccharomyces cerevisiae 植物界,约391000,光合自养,有(纤维素),无胚层(有分生组织),拟南芥 Arabidopsis thaliana 动物界,约1531000(已描述),吞食式内异养,无,原肠胚+胚层,人 Homo sapiens 原生动物(并系),约数万,混合,无(多数),无胚层,草履虫 Paramecium caudatum
一个常被追问的估算:动物界占真核生物物种数的比例到底是多少?可以用已描述物种数直接做一版粗算。
described = { "动物界": 1_531_000, # Zhang (2013) 等合并估计,含所有门 "植物界": 391_000, # RBG Kew 状态报告口径 "真菌界": 148_000, # Species Fungorum 已描述数 "其他真核(原生生物等)": 200_000, # 量级估计 } total = sum(described.values()) for k, v in described.items(): print(f"{k}: {v:>9,} 占 {v/total:.1%}") # 动物界约占比 67%;若按昆虫约100万种计,节肢动物一门即占动物界约 65% insects = 1_000_000 print(f"昆虫占动物界: {insects/described['动物界']:.1%}") # 注意:未描述物种的推算(约870万真核)会稀释该比例,动物占比降至约三分之一强, # 但"已描述"口径下动物的主导地位无可争议——分类学采样偏差本身就是一章的题材。
这套数字还揭示一个结构性事实:动物的形态跨度(从 0.02 mm 的缓步动物到 30 m 的蓝鲸,跨 9 个数量级)远超植物,而其物种数却高度集中于节肢动物一支——多样性与体型在动物界内部并非同向分布。