1.2 分类学范式演进
1.2 分类学范式演进
本节摘要:从 1758 年林奈的双名法,到 1966 年亨尼希的支序系统学,再到今天的分子系统学与整合分类学,分类学经历了三次范式跃迁。本节沿这条历史主线,讲清每次跃迁解决了什么、又暴露了什么,最终落在"概率化物种观"——物种边界正从"是/否"的二元判断,演变为基于基因流、分化时间与生态位重叠的多维概率云。
本节目标
阅读完本节,你应当能够:
- 说明双名法与七级阶元的贡献与内在局限;
- 定义单系群、共衍征、并系群,并解释"爬行动物纲"为何解体;
- 描述 COI 条形码的工作原理与 2%/10% 的种内外变异规律;
- 解释分子钟、松弛钟与化石校准的关系;
- 说出整合分类学对新物种描述的证据要求;
- 讨论"暗物质物种"与分类学知识主权两大当代挑战。
一、奠基:林奈的柜子与秩序幻象
18 世纪的博物学是追求秩序、强调静态本质的时代。林奈在 1758 年《自然系统》第十版中写下 Felis catus、Canis lupus、Homo sapiens 这串拉丁双名时,他做的事本质上是一种符号压缩协议:把一个个体可被感官捕获的全部形态特征——毛色、齿式、肢节构造——浓缩为两个拉丁化字符串。双名法之上,是严格的层级嵌套:界、门、纲、目、科、属、种,七级分类阶元构成一座宏伟的分类圣殿。
这套体系的预测力惊人:仅凭一具鲸骨,林奈便将其归入哺乳纲而非鱼类,因为肺、温血、胎生等特征更接近牛羊。但它的局限同样深刻。逻辑起点是"相似即同源"的朴素假设,而趋同性状与同源性状混杂识别埋下了隐患:蝙蝠的翼与鸟类的翼功能惊人相似,却源于完全不同的发育路径——前者是特化的前肢皮膜,后者是前肢骨骼支撑的羽被。若凭"能飞"归类,蝙蝠将被错误拉入鸟纲。更麻烦的是层级结构隐含目的论预设:高阶阶元代表"更根本"的差异。演化并无预定阶梯,只有分支与灭绝——"纲"的界定可能只是某个古老祖先在特定地质时期辐射出的适应性形态,而非不可逾越的本质鸿沟。
| 范式 | 时代 | 判据 | 能回答 | 不能回答 |
|---|---|---|---|---|
| 林奈形态学 | 18 世纪 | 形态相似性 | 是什么、如何归档 | 为什么亲疏如此 |
| 支序分类学 | 1966 起 | 共衍征、单系群 | 演化分支顺序 | 分化时间 |
| 分子系统学 | 1990s 起 | DNA 序列差异 | 亲缘与时间标尺 | 形态如何实现 |
| 整合分类学 | 当下 | 多源证据交叉 | 概率化结论 | 仍受采样与模型限制 |
二、裂变:亨尼希与"必须反映演化历史"的宣言
1966 年,德国昆虫学家威利·亨尼希出版《系统发育系统学》,宣告分类学的唯一合法目标是使分类群成为单系群——一个共同祖先及其全部后代构成的集合。定义看似温和,力量却是颠覆性的:它把合法性基础从"看起来像"彻底转向"确实来自同一祖先"。
方法论上,这催生了支序分析。其核心不再是寻找任意相似点,而是甄别共衍征——在某个共同祖先身上首次出现并被所有后代继承的全新性状。哺乳动物"下颌仅由单一齿骨构成"就是共衍征,它区别于爬行类祖先的多骨下颌,且从鸭嘴兽到蓝鲸都被保留。相比之下,"有脊椎"是更古老祖先的遗产(共祖征),无法区分鱼类、鸟类与哺乳类。
支序原则的裁决立刻波及沿用百年的概念:若"爬行动物纲"包含鸟类,则它是单系群;若排除鸟类,则是割裂了恐龙向鸟类连续谱系的并系群——这个纲由此轰然解体。类似地,当分子证据显示传统"食肉目"中的鳍足类(海豹、海狮)与熊科的亲缘远超与犬科时,分类学家提出鳍足类应降入熊科之下——这不是对传统的背叛,而是对生命历史更忠实的誊录。构建系统树成为严谨的逻辑推演:收集性状矩阵,用最大简约法或最大似然法寻找能以最少演化步骤解释所有数据的树形拓扑。这棵树不再是人为设定的等级框架,而是一份可检验的演化假说。
三、分子革命:穿透表型迷雾的 X 光
形态性状是演化历史的"二次编码",极易受趋同、退化、发育约束干扰;DNA 序列则是"一次编码",近乎连续地记录变异档案。这场革命的核心是测量尺度与信息维度的根本拓展。
第一层应用是 DNA 条形码。细胞色素 c 氧化酶亚基 I(COI)基因因在线粒体基因组中普遍存在、变异速率适中、易于扩增,被确立为动物条形码的黄金标准:一段 648bp 的 COI 序列,种内变异通常小于 2%,种间变异普遍大于 10%。这使 COI 成为野外快速鉴定与发现隐存种的利器——那些形态上难以区分、分子层面已形成显著生殖隔离的群体由此浮出水面。
第二层是全基因组比对:不再局限于单基因快照,而是对数以万计同源位点做全景扫描,并为不同区域指定独立的演化模型,极大降低模型误设导致的系统误差。第三层是分子钟:中性演化下序列固定突变速率近似恒定,两个谱系的遗传距离约等于突变速率乘以分化时间的两倍。但"恒定"是相对的——不同谱系速率存在差异(松弛钟),必须用至少一个已知年代的化石节点校准,再以贝叶斯方法反推其他节点。2023 年《Nature》一项基于 230 个哺乳动物基因组的研究,正是通过整合数以千计的化石校准点,把胎盘哺乳动物的起源锁定在白垩纪-古近纪大灭绝之后的短暂窗口期,否定了此前"前灭绝起源"的假说。
💡 关键直觉:分子钟校准很像给一张没有刻度的地图补上比例尺——化石节点就是地图上少数几个已知距离的锚点,其余距离都是由此插值推算的。锚点错一个,全图的时间轴都会偏移。
四、范式融合:整合分类学与概率化物种
今日的前沿早已不是"形态派"与"分子派"的楚汉之争。一个新物种的规范描述,需要详尽的形态解剖与地理分布,提供 COI 条形码序列、若干核基因片段乃至全基因组草图,并同时呈现形态矩阵与分子系统树的一致性与分歧点。而每一次分歧都可能指向值得深究的演化谜题:形态的快速趋同?线粒体基因的水平转移?还是古老的不完全谱系分选?
更深层的变化是物种概念本身。经典生物学物种概念——"能够自然交配并产生可育后代的群体"——在环状种、频繁水平基因转移的无脊椎动物与杂交成种的类群中频频失效。基因组研究还揭示:许多"物种"内部存在深刻的亚群分化,不同"物种"间又存在广泛的古老基因渗入。物种更接近量子态:既是离散的粒子(可识别的演化分支),又是连续的波(基因流交织的谱系)。我们必须接受一种概率性、情境性的物种观:在保护实践中它是管理单元,在演化研究中它是历史分支事件,在生态建模中它是功能模块。拒绝单一定义,方能拥抱生命的真实复杂性。
演化认知范式的三级跃迁全景
五、两极撕扯:数据暴政与存在消逝
然而这座日益精妙的基石正承受两极撕扯。一极是数据的暴政:全球每天新增数万条 DNA 条形码序列,其中仅约 12% 能可靠链接至经权威鉴定的模式标本;博物馆里积压着数千万件未研究的昆虫标本,而懂鳞翅目触角分节、鞘翅目纹路的分类学家全球不足两千。IUCN 坦承:已评估物种中仅 7% 的无脊椎动物获得过全面评估,深海、雨林冠层、土壤微域的动物普查覆盖率低于 0.3%。我们正用超级计算机分析一个连地图都未曾画全的大陆。
另一极是存在的消逝:据《IPBES 全球评估报告》,当前物种灭绝速率是背景灭绝率的数十倍至数百倍。我们尚未为一种新发现的甲虫命名,它的唯一栖息地已被推土机铲平。且灭绝并非均匀发生——受威胁最重的恰是分类学上最难啃、缺乏明星效应的类群:小型哺乳动物、无脊椎动物、两栖类。
两股力量的交汇处还滋生出第三重挑战:知识主权的争夺。当巴西研究人员在亚马逊采集新蚁类、DNA 样本却被送往欧洲实验室测序,最终论文作者栏里本国学者排在末位——这门曾由殖民时代博物学家带着标本箱远征建立的学问,正面临深刻的伦理重构。未来的分类学必须嵌入"惠益分享"机制:遗传资源的获取与惠益分享(ABS)已写入《名古屋议定书》,一种箭毒蛙的毒素基因序列不再只是科学发现,而是具有主权属性的战略资产。
⚠️ 常见坑:把"未描述"等同于"不存在"。地球上现存动物约 870 万种,已描述不足 150 万——超过 80% 是暗物质物种。2022 年《Nature》一项海洋浮游动物研究显示,单个水滴的宏基因组测序可检出超过 2000 个未描述的操作分类单元,其中 92% 无法匹配任何已知序列。制定保护策略时必须接受 eDNA、声景分析、AI 影像识别等间接证据作为物种存在的合法凭证。
六、趋势:走向活态分类学
出路不在退回林奈的柜子,也不在沉溺基因组迷雾,而在一种活态分类学。技术正在民主化:智能手机的 AI 识图已能让村民拍下未知甲虫即时获得属级鉴定;便携式纳米孔测序仪让护林员在野外帐篷里两小时内完成蝙蝠粪便样本的病毒筛查与宿主溯源。概念正在功能化:当"种"在基因组层面模糊,分类学家开始与生态学家联手定义功能单元——一组在养分循环、种子传播、授粉服务中不可替代的近缘物种集合。时间维度正在深度整合:古 DNA 能从数万年前的冻土猛犸象粪便重建肠道微生物组,沉积物 DNA 让我们从湖芯岩层提取过去一万年间动物群落的连续快照。分类学的树,不再只指向过去的根系,更延伸出指向未来的预测枝桠。
一节小结
- 要点一:双名法是符号压缩协议,七级阶元是描述性坐标系——卓越于归档,无力回答历史发生学问题;
- 要点二:亨尼希的共衍征判据把分类合法性从"相似"转向"共同祖先",并系群(如传统爬行纲)随之解体;
- 要点三:COI 条形码(648bp、种内小于 2%、种间大于 10%)是种级鉴定与隐存种发现的黄金标准;
- 要点四:分子钟需化石校准,230 个哺乳动物基因组研究把胎盘类起源锁定在 K-Pg 大灭绝之后;
- 要点五:物种观正走向概率化与情境化——管理单元、演化分支、功能模块三种身份并存;
- 要点六:80% 的暗物质物种、不足两千人的分类学家队伍与 ABS 知识主权,是当代分类学的三大结构性挑战。
下一章我们进入身体内部:形态、功能与发育如何耦合,才铸就了从水母到蓝鲸的结构奇观。
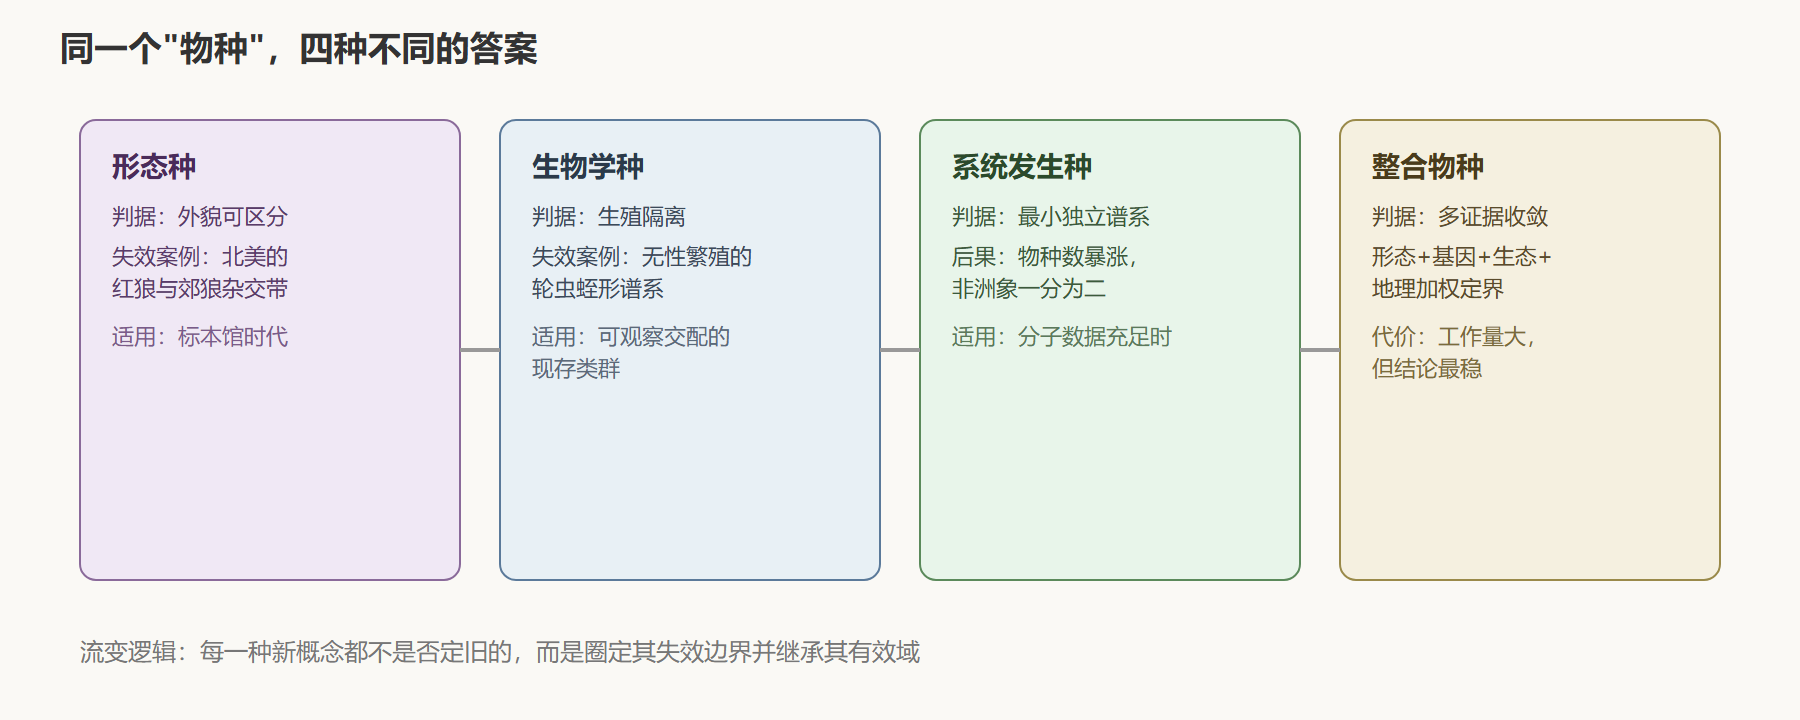
图:物种概念的四代流变对比
数据与实践:DNA 条形码怎样改写字种判定
四代物种概念并存,意味着同一个标本在不同范式下可能得到不同答案。DNA 条形码工作流给出了可复现的判定路径,以下为标准流程的命令序列。
# 1. 从 SRA 下载 COI 条形码扩增子数据并质控 fastq-dump --split-files SRR1234567 fastp -i SRR1234567_1.fastq -I SRR1234567_2.fastq -o clean_R1.fq -O clean_R2.fq -h fastp.html # 2. vsearch 按 97% 阈值聚类为 OTU(形态种近似) vsearch --fastq_mergepairs clean_R1.fq --reverse clean_R2.fq --fastq_minmergelen 300 --fastq_maxmergelen 700 --fastqout merged.fq vsearch --fastq_filter merged.fq --fastq_maxee 1.0 --fastaout filtered.fa vsearch --cluster_size filtered.fa --id 0.97 --centroids otus.fa # 3. 与 BOLD 参考库比对赋名 blastn -query otus.fa -db bold_coi_v2024 -outfmt "6 qseqid sseqid pident" -perc_identity 95 -out assignments.tsv
而两种范式对同一批标本的判定分歧,可以用一个真实量级的对照来体会:等足目等类群的研究中,条形码拆出的分子种常比形态种多出一成以上。
morpho_species = 187 # 形态学鉴定的物种数 molecular_species = 215 # ABGD/PTP 自动拆分的分子种 split_shared = molecular_species - morpho_species print(f"隐性种拆分率: {split_shared/morpho_species:.1%}") # 按整合分类学规范,这 28 个候选种需回到形态学复核, # 只有"分子+形态+地理"三重证据齐备才正式定名—— # 这正是 Mayr 式判断与 Hennig 式分支图在流程层面的和解方案。
流程之外还要牢记条形码的边界:线粒体仅是单亲遗传的标记,核基因渗入会让近缘种的 COI 边界模糊,故整合分类学要求至少一个核标记交叉验证。