2.1 身体构型演化主轴
2.1 身体构型演化主轴
本节摘要:回溯近六亿年的动物躯体设计史,真正持续发挥作用的只有两条彼此垂直的标尺——身体对称格局的升级(由辐射式走向左右镜像式)与体腔构造的深化(由实心组织经假体腔抵达真体腔)。两条标尺互相咬合,共同框定了形态、功能与发育三者之间的硬连接。本节的任务,是说明这条主轴为何既不喧哗、又难以绕开:它划定了自然选择能够书写的区间,也标出了永远无法企达的空白。
阅读收获
阅读完本节,你应当能够:
- 辨析辐射对称在固着生活中的得与失;
- 还原爬行觅食压力如何催生两侧对称的身体蓝图;
- 指出前后、背腹、左右三条体轴分别由哪套基因通路奠定;
- 对照无体腔、假体腔、真体腔三类构造在力学支撑与发育潜力上的分野;
- 论证真体腔何以构成"发育单元化的物质前提";
- 借主轴耦合的视角重新解读寒武纪大爆发。
一、从一个反直觉出发:演化选项其实极少
教科书常给人留下一种印象,仿佛自然选择面前摊开着无穷无尽的备选方案。真实的图景要拘束得多:演化更接近在一张预先刻好沟槽的版画上继续下刀,而那些沟槽,便是身体构型主轴。刺胞动物被锁定在辐射对称的环形秩序里,扁形动物被困于无体腔的薄片形躯体内,环节动物握有真体腔这副"内置支撑架",节肢动物借外骨骼掀起运动方式的革新,脊索动物则把背侧神经管、脊索与分节肌节打磨成一套联动装置。
主轴的刚性体现为牵一发而动全身。举两组对照:比目鱼成体时能让一只眼球跨过颅骨迁往另一侧,却无论如何长不出第三只眼;线虫一辈子依靠假体腔过活,却始终没能演化出分节的附肢。原因在于,跨越构型层级需要发育调控网络中多个核心模块同时改动,零星的点突变根本凑不齐这份"改装清单"。
二、对称格局:从全向应答到定向行动
辐射对称常被贴上"原始"标签,这低估了它的工程含量。水螅、海葵与珊瑚虫固着于海底或悬浮于水体,食物颗粒与水流方向随时改变;圆形身体把触手、刺细胞与口道按等角度铺满一周,等于把感知与捕食的响应时间压缩到与来向无关——猎物出现在任何方位,都有一组触手处在最近的出击位置。这套方案的短板同样清楚:没有前后端与背腹面,便无从集中神经元、无从配置定向的运动结构、也无从把摄食与排泄排成流水线。这样的身体是一张撒开的渔网,而不是一支离弦的箭。
打破圆环的推手,是海底爬行这种生活方式的登场。当早期后生动物开始在泥沙表面挪动,"正前方"第一次成了信息最密集的方向。均匀铺排的感官与运动组件迅速变得低效——左边探路、右边进食的布局注定顾此失彼。那些碰巧把感光细胞、纤毛带与肌肉束聚在移动前端的个体获得了回报,这一初始不对称又被发育网络层层放大,最终沉淀为一套立体坐标系:Hox 基因簇沿头尾方向按共线性次序开启,BMP 与 Chordin 以相互拮抗的浓度坡度划分背面和腹面,Nodal 与 Pitx 通路则制造出左和右的差异。自此,动物的身体不再只是占据一块空间,而是携带着方向感去面对空间。
两侧对称也远非演化谱系的终点站,它更像一套可再次编程的底层协议。比目鱼提供了漂亮的双重例证:幼鱼左右镜像的标准体型,在转入海底匍匐生活后,下侧眼的视觉价值归零,上侧则需要双眼共同监视水面来敌。在甲状腺激素与视黄酸的接力调控下,一侧眼球穿过颅骨,借助软骨改建与神经延展抵达另一侧,与对侧眼并排而立。这不是对称性的崩坏,而是对坐标系的二次映射——左右镜像划定的框架,本就不是刻板的几何律令,而是一套允许发育机制重新分配的弹性资源。业内流传的一句评语颇为传神:演化改动的不是建筑图纸,而是编译图纸的编译器。
三、体腔:体内空间的三次确权
如果说对称格局回答了动物"以何种姿态面向外界",体腔则回答了它"如何在自己的体内安排秩序"。无体腔、假体腔、真体腔的递进,可以读成一部体内空间权限逐级放宽的立法史。
涡虫这类扁形动物是无体腔方案的样本:中胚层以实心的实质组织塞满内外胚层之间的缝隙,器官全部埋在致密组织里。体形小、代谢率低的种类勉强够用;一旦体型放大或运动加剧,结构性短板即刻显形——没有液体充当静力骨架,肌肉收缩难以换算成躯体形变;器官彼此直接贴附,稍有牵拉便互受损伤;也腾不出容纳独立循环系统的余地,气体与养分全凭扩散缓行。
线虫的假体腔迈出了折中的第一步。这处腔隙并非中胚层重新围出,而是胚胎期囊胚腔的保留与扩大,四周仅有部分区域覆有中胚层。可就是这个"权宜之计"已能顶上要害:腔内液体构成静力骨骼,撑起线虫在土粒间隙里的 S 形摆动;肠道与生殖腺也获得了起码的容身之处。上限同样一目了然——腔壁缺少中胚层来源的体腔上皮,悬吊器官的系膜无从谈起,调节腔压的平滑肌层也无从分化。它像一间租来的工棚:挡得住风雨,挂不上承重墙。
真体腔则是一次彻底的产权重置。它经由中胚层开裂或肠体腔囊 outward 囊形成的方式建立,内表面整体覆盖体腔上皮。这层看似单薄的膜,实质是器官发育的自主权凭证:消化道靠新生的系膜悬吊在腔中,蠕动时不再殃及邻近脏器;血管内皮、心肌与平滑肌皆可自体腔上皮周围的中胚层分化而来,封闭式循环由此启航;更关键的是,运动装备与内脏之间实现了动力隔离——环节动物的体壁肌肉与刚毛可以在体腔液的缓冲下奋力收缩,无须顾虑震荡伤及内部。
| 体腔构造 | 典型代表 | 起源方式 | 力学性能 | 演化上限 |
|---|---|---|---|---|
| 无体腔 | 涡虫 | 实质组织充填 | 缺少静力骨架 | 器官位置固定难移 |
| 假体腔 | 线虫 | 囊胚腔遗留 | 液压支撑、摆动运动 | 无系膜与平滑肌 |
| 真体腔 | 环节动物及以上 | 中胚层开裂/肠体腔囊 | 器官悬吊、循环起源、动力隔离 | 为分节与附肢特化铺路 |
有一层耦合关系常被略过:体腔类型与对称轴系互为条件。两侧对称确立的头尾轴,给中胚层的分区分化提供了定位参照;真体腔的分隔方式又反哺体节的单元化。Hox 基因不仅沿头尾轴宣告"何处生出附肢",还通过约束体腔相关基因的时空表达,决定"哪个体节配得上完整的隔膜"。照此看来,真体腔不只是储物的空腔,更是把躯体切分为可独立演化、可差异放大的功能单元的物理基座——没有它,脊椎动物那套由三十余块椎骨、成对肋骨与分节神经根组成的脊柱工程便无从谈起。
四、两条轴的合流:约束之下的创造
把对称与体腔放回同一幅演化地图,规律便浮出水面:躯体构型的每次关键升级,都是两条轴线上同时完成的合击。
寒武纪大爆发就是这道谜题的最佳切口:为何短短两千万年间,今日动物门类的身体蓝图几乎同台亮相?氧浓度抬升、Hox 基因簇扩增都是常见答案,但更贴题的解释落在两轴的临界交汇处。分子钟与化石层位共同表明,两侧对称的建成远早于寒武纪,而真体腔的普及恰好赶上寒武纪的生态竞赛。换句话说,两侧对称交出了一份"可延展的图纸",真体腔则备齐了"可扩容的厂房":缺了前者,器官没有排列的坐标;缺了后者,有了坐标的器官也撑不起放大的体型。寒武纪那场形态盛宴,本质上是图纸与厂房第一次完成整线联调的时刻。
发育生物学给这层耦合留下了直接证据:管理头尾轴的 Hox 基因与管理体腔的基因,共用 Wnt 与 FGF 这两条上游通路。它们不是各管一摊的科室,而是同一届发育内阁——Wnt 信号在胚胎后端增强时,既推高后部 Hox 基因的表达(确认尾部身份),又推动体腔开裂。通路复用显著调低了新构型的遗传门槛,同时埋下硬约束:重创 Hox 基因几乎必然拖累体腔工程,反向亦然。门类间构型差异之所以历经亿年而不动摇,原因正在于此——主轴耦合已把形态、功能与发育一并锁进高位势阱,翻越出去需要一次性凑齐多点协同突变,概率微乎其微。
体腔演化的制度史:三级空间权限对照
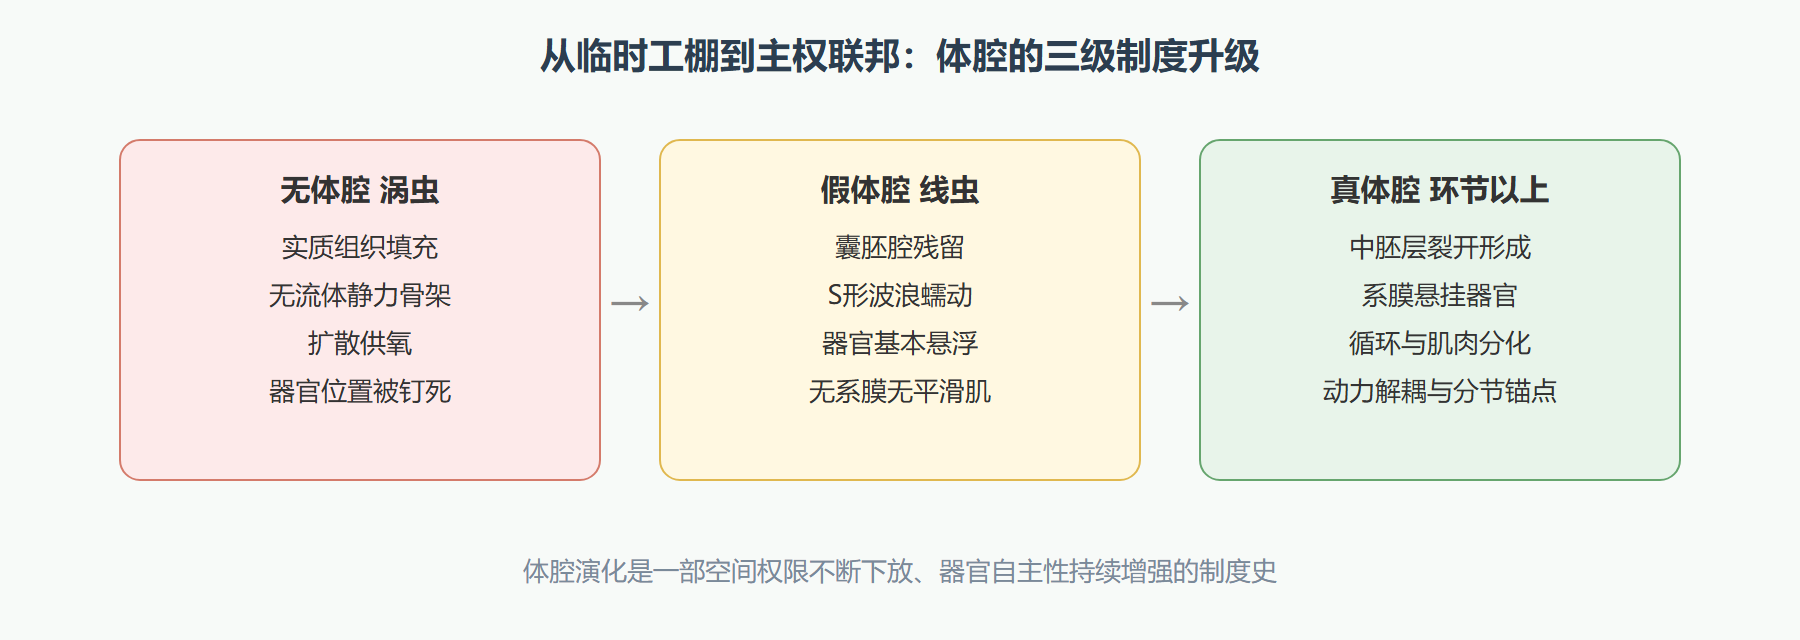
⚠️ 常见坑:把体型大小当作门类高低的渐变阶梯。门级构型是彼此分立的稳定解——好比水流在岩层裂隙间各自冲出固定的河槽,而非百川争赴同一个出海口。现存各门不是"半成品的底稿",而是不同谱系在各自的历史机遇期,把某种发育可塑性边界成功固化的结果。
💡 关键直觉:主轴视角会更换提问的句式。旧问法是"某器官如何运转",新问法是"该器官的构造,怎样被它所处的对称轴系与体腔类型所限定?它的功能革新又怎样回过头去微调主轴参数?"——鸟类的飞行能力由此不再只被归功于羽毛或龙骨突,而被拆解为:在左右镜像框架内加固头尾轴的刚度,又在真体腔的地基上演化出气囊系统、重塑体腔液压,最终让呼吸与振翅合拍。
本节速览
- 要点一:躯体构型主轴 = 对称格局升级与体腔深化两条正交标尺的咬合;
- 要点二:海底爬行是把动物推向两侧对称的关键压力,三条体轴分别交由 Hox、BMP/Chordin、Nodal/Pitx 落成;
- 要点三:比目鱼的眼球迁移表明,对称框架是一套允许二次编程的弹性坐标系;
- 要点四:体腔演化即体内空间的"三级确权",体腔上皮是器官自主权的凭证;
- 要点五:Hox 与体腔基因共享 Wnt/FGF 上游通路,耦合既放低了创新门槛、又锁死了门级构型;
- 要点六:寒武纪大爆发是"可延展图纸"与"可扩容厂房"首次完成整线联调的时间峰。
下一节钻进器官层面,考察神经、循环与呼吸系统如何在这副构型骨架里被一次次翻修扩建。
量化档案:三条主轴上的实测数据
身体构型的三条主轴(对称性、体腔、分节)各自都有可测的代表性数据。先看门级分布。
门(代表),体长范围,对称类型,体腔类型,分节情况 刺胞动物门(水螅/珊瑚),1 mm-2 m,辐射对称,无(胶状中胚层),不分节 扁形动物门(涡虫/绦虫),0.5 mm-25 m,两侧对称,无(实质组织),不分节 环节动物门(蚯蚓/沙蚕),0.5 mm-3 m,两侧对称,真体腔(裂体腔),同律分节 节肢动物门(昆虫/虾蟹),0.1 mm-3.8 m(蟹背甲),两侧对称,退化为血腔,异律分节 软体动物门(蜗牛/章鱼),0.5 mm-13 m(大王乌贼腕展),两侧对称(腹足扭曲),假体腔退化为血窦,不分节(原始痕迹) 脊索动物门(文昌鱼/蓝鲸),3 cm-30 m,两侧对称,真体腔(肠体腔),不分节(脊椎串)
体腔的流体骨架效应可以用帕斯卡原理直接算出来:蚯蚓的真体腔是封闭液体腔,环肌收缩时体液把局部压强无损传向全长。
# 蚯蚓挖掘模型:体腔内压 p 推动头部楔入土壤 p_kpa = 4.5 # 实测虹蚓 Lumbricus terrestris 体腔压峰值 head_area_cm2 = 0.15 # 头端有效截面积 force_n = p_kpa * 1000 * head_area_cm2 * 1e-4 print(f"楔入推力 = {force_n:.2f} N") weight_n = 0.005 * 9.81 print(f"推力/体重 = {force_n/weight_n:.0f} 倍") # 对比:其体重约 5 g,推力达自重的约 14 倍—— # 真体腔作为液压驱动的功率放大器,解释了环节动物在沉积物中的穿行能力。 # 骨骼刚度标度:实心圆柱抗弯刚度正比于 E·r^4,空心管保留 90% 刚度只省约 30% 材料, # 这也是为何"管中管"构型在大型蠕虫中被反复独立演化。
这些数字共同说明:构型主轴不是分类学的摆设,而是直接决定推力、刚度与体型上限的工程参数。