2.2 关键器官系统演化逻辑
2.2 关键器官系统演化逻辑
本节摘要:器官系统的演进史,不是零件各自排队升级的历史,而是旧模块在新限制下被重新拼装、改换用途、放大尺寸或挪动位置的历史。本节给出的核心等式是:演化创新 = 同源结构 × 功能改换 × 发育时序挪移;托住每次跨越的,是能量流、物质流、信息流在物理定律划定的边界内彼此配合的优化过程,外加发育可塑性提供的减震与提速。
先说结论
阅读完本节,你应当能够:
- 借"嵌套翻新"梳理神经、循环、呼吸三大系统的接力过程;
- 讲清肺怎样由肉鳍鱼类的鳔掉头改行而来;
- 依据扩散定律说明鳃与肺各自的构造道理;
- 对比气管系统与肺所代表的两条截然不同的登陆方案;
- 复述心脏四腔分隔的发育调控及可塑性证据;
- 说明 Hox 调控网络的模块化,为何让蛇类能舍后肢而留前肢。
一、先破一个错觉:器官演化不是"升级打怪"
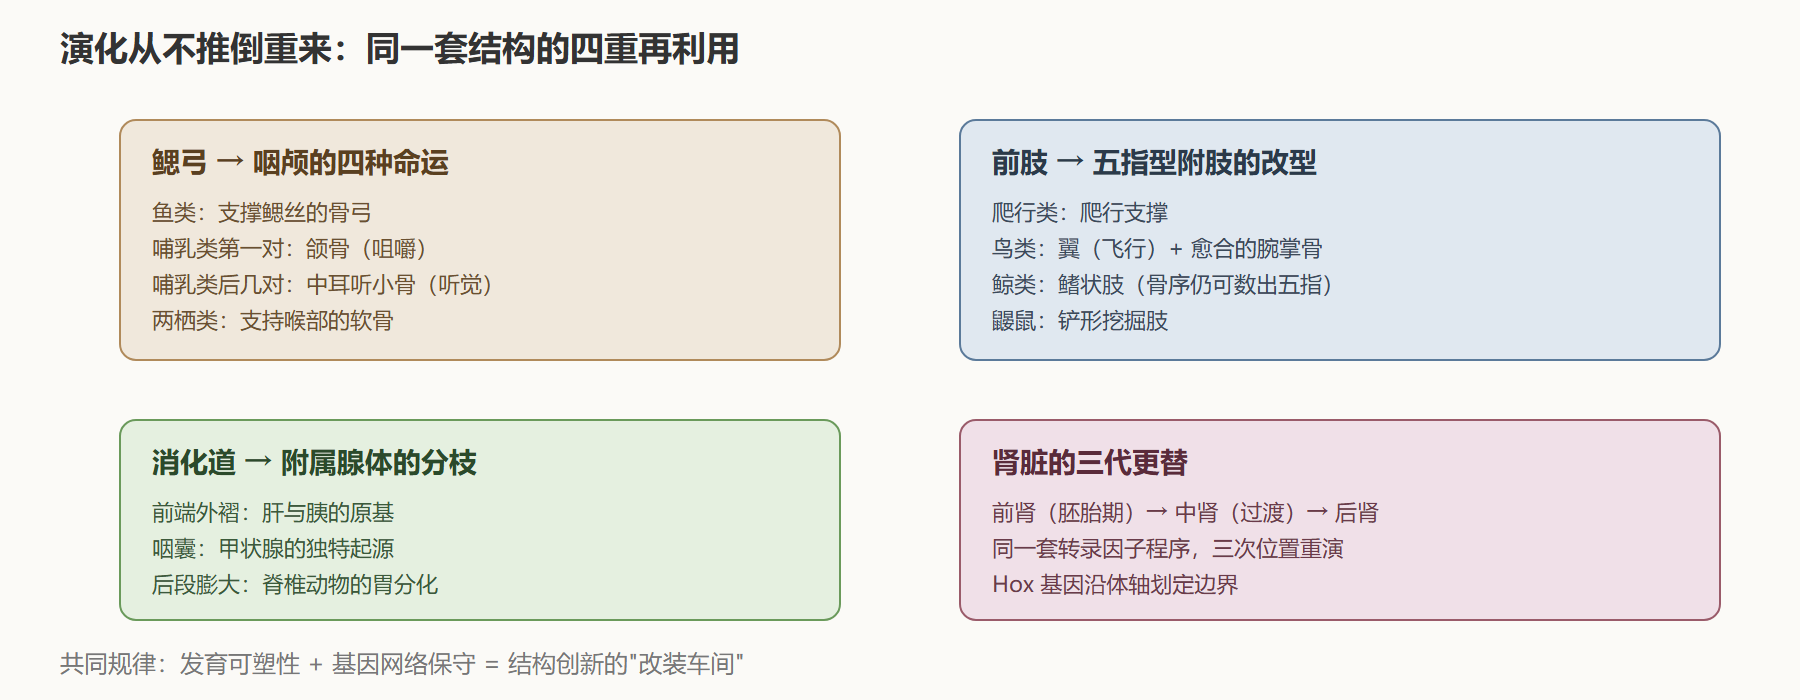
不少人默认器官演进是一条直线:神经网代表落后,链状神经代表先进;开管循环效率差,闭管循环效率高;皮表换气简陋,肺呼吸高级。直线叙事遮住了更根本的事实——今天活着的每一套器官系统,都是旧模块在新限制下反复拼装的产物。不妨称之为嵌套翻新:不推倒平地起高楼,而是在原有骨架上加层、改线、换接口。
拿神经系统作证。刺胞动物的神经网并非一团未分化的乱麻,而是足以闭环完成趋光、捕食、收缩等行为的分布式传感-执行体系。扁形动物立起前后轴之后,神经网并未被废弃,而是沿腹侧中线局部增厚加密,形成两条纵神经索并向前端聚拢成"脑样"神经节——中枢不是白手起家,而是把旧网络压缩收拢、划片分区的结果。环节动物再把神经节按体节串成链;脊椎动物更进一步,把前端若干体节的神经节急剧扩充、折叠分层,端脑、间脑、中脑、后脑、延髓五部俱全的脑脊髓系统就此成型。整个历程像旧城改造:城墙不动,核心区里却一茬茬添起宫殿、钟楼与地下排水道——旧墙体仍在负重,新楼宇已换了用途。
二、原理所在:演化创新的三元等式
由上可归纳出器官系统演化的通式:演化创新 = 同源结构 × 功能改换 × 发育时序挪移。同源结构给出载体与遗传模板,功能改换带来选择收益,而发育时序挪移(某基因提前或推迟启动)是把两者接通的扳机。
循环与呼吸两大系统提供了最干净的注脚。昆虫开管式循环里的背血管,与软体动物的心室本是一脉同源;脊椎动物的心脏,则源自环节动物腹血管在体腔内的卷绕、分隔与成腔。鳃的家谱可以上溯到环节动物疣足上的表皮褶,先在软体动物那里长成靠纤毛驱动水流的滤食器官,又在鱼类手里改造成薄壁、高表面积的逆流换气装置。气管系统乍看是无中生有,其实出身于节肢动物体壁向内凹陷形成的外胚层管道,它的分支样式与神经索的分节节律共用同一套 Hox 调控逻辑。
肺的来历最具戏剧色彩——它不是凭空冒出的新发明,而是肉鳍鱼类消化道前端一个囊状外凸(即"肺鱼的鳔")就地转岗的成果:当鳔卸下调节浮力的差事、接过气体交换的班,上皮细胞加速增殖,毛细血管网层层裹上,一枚货真价实的肺就此诞生。幕后推手不过是 Foxp1、Nkx2.1 等转录因子表达域的些许挪动,却撬开了整场登陆大幕。
三、三流合拍:功能跨越的物理底盘
如果说嵌套翻新是演化的句法,那么托起每次大跨越的,就是能量流、物质流、信息流这三大生命流在物理定律边界内的协同寻优。三者结成一张密不透风的反馈网:信息流调度能量配给与物质运送,物质流捎带能量底物和信号分子,能量流则给前两者供压。任何一处卡壳,整机的性能上限就被按住。
呼吸与代谢的咬合最能说明。小型水生无脊椎动物靠体表扩散即可糊口,可体型一大麻烦就到:体积按立方膨胀、表面积只按平方扩张,扩散路径被拉长,氧通量断崖式下滑。鳃正是冲着这道物理墙来的:薄层上皮折成无数细丝与薄片,把有效换气面积堆到极大,同时把扩散距离压进微米量级;配合定向水流(鱼类靠口咽泵、甲壳类靠胸肢划水)不断刷新浓度差,氧通量能抬升两个数量级以上。
登陆把考题又加难了一档:空气里氧分压虽高,却没有天然的对流帮忙,干燥还会威胁上皮的水润。两条路线各自交卷。昆虫的气管系统采取"硬管直通细胞"的打法,把扩散距离压到几微米,几乎注销了扩散限制;脊椎动物则靠潮式呼吸、支气管树的逐级分支和肺泡表面活性物质,织出一张高比表面积(人类肺泡合计约 70 平方米)、低流阻、抗塌陷的三维换气网。循环系统此时必须同步改版:鳃循环属单程低压,肺循环却要把血推过致密的毛细血管床,压力高出一截——心脏于是必须分出左右两半形成双循环,右半专管低压的肺循环,左半专管高压的体循环。这无关审美偏好,而是能量流与物质流两面施压下唯一可行的解。
神经系统也逃不出这张网。神经网靠局部电化学扩散传讯,速度慢、带宽窄;链状神经引入轴突髓鞘与跳跃传导,冲动速度从约每秒 0.5 米跃至 120 米;脑脊髓的中枢化,则是为接纳多路感官输入、驱动精细运动输出而必备的并行运算架构。哺乳动物新皮层的扩张,意义更不止"神经元变多"——它搭起了层级化的特征提取通路,让动物从流变的环境里蒸馏出稳定的表征,进而支撑预判、规划与社会性学习。信息流至此完成从"应答式"到"前瞻式"的质变。
| 系统 | 同源起点 | 核心改造 | 跨越扳机 |
|---|---|---|---|
| 神经 | 刺胞动物神经网 | 压缩收拢、髓鞘化、中枢化 | 轴极性与体节重复 |
| 循环 | 背血管/腹血管 | 卷绕、分隔、成腔 | 体腔内压与代谢负荷 |
| 呼吸 | 疣足表皮褶 | 逆流换气、气管、肺泡 | 平方立方定律 |
四、发育可塑性:减震器兼涡轮
把演化比作设计师,发育就是施工队——图纸再壮观,施工队执行不到位也只能是纸面文章。发育可塑性便是施工队的临场功夫:同一套基因组遇上不同的环境线索或轻度遗传扰动,产出形态功能略有出入的个体。它一边当安全阀(免得突变直接酿成致命畸形),一边当涡轮(给自然选择即时输送可用的变异库存)。
心脏的四腔分隔是好例子。所有羊膜动物胚胎的心脏都从一条朴素的内皮管起步,心管折叠出原始心房与心室,关键的分隔工程由一组保守转录因子(Tbx5、Nkx2-5、Gata4)与细胞外基质重塑酶联手把关。耐人寻味的是,某些蜥蜴胚胎在低温下会短暂出现室间隔缺损,出生后却又迅速补好——分隔流程自带冗余与纠错。神经系统的可塑性更甚:哺乳动物皮层神经元数目在出生后数周内经突触修剪可削去近 40%,而环境丰富度(玩具、同伴互动)会明显左右修剪的力度与样式,最终连接图谱由此定型。站在演化角度看,这相当于把一部分选择压力从漫长的种群遗传层面,挪到了快捷的个体发育层面。
也因此,现代演化发育生物学早已绕开基因决定论,转而考察基因调控网络的拓扑结构如何圈定可塑性的疆域。鲁棒性强的调控网络通常有三件标配:模块化、冗余备份、反馈回路。支配肢体发育的 Hox 网络即是样板:管肩带的前端模块与管指骨的后端模块彼此独立,蛇类才能丢掉后肢模块而留住前肢,无须重写整套肢体程序。
神经系统层级跃迁的解剖对照
⚠️ 常见坑:见到"形态 A 伴随功能 B"就断言"A 导致 B"。实际情况里,A 与 B 可能同是上游基因 C 的两条下游支线,也可能 B 的功能需求反过来改写了 A 的发育路线(功能性形态发生)。要把双向因果理清,靠的是干预实验,不是相关系数。
💡 关键直觉:神经、循环、呼吸三大系统从无藩篱。它们共用发育起点(神经嵴细胞同时参与心脏流出道、肾上腺髓质与部分颅面骨骼)、共享信号通路(Notch 一并管血管生成与神经干细胞分化)、还面对联动的生理需求(运动时心率、呼吸频率与皮层兴奋性一同走高)——这是一个深度咬合的功能超系统。
五、承上启下:本节的两处接榫
本节向上衔接第 2.1 节的构型骨架——把繁杂的类群差别收拢成少数普适的演化逻辑;向下接通微观机制——任何宏观结构之变,最终都要落到具体基因调控网络的时空调整、具体细胞行为的重编、具体生物材料的理化改良上。当一只始祖鸟掠过侏罗纪的蕨林,它胸腔里四腔心脏的节律搏动、肺内气囊推动的单向气流、前脑中加速折叠的沟回,三者在毫秒尺度上严丝合缝地联动——那不是三套系统的简单相加,而是一场绵延数亿年、关于形态-功能-发育的长程合奏。
重点提炼
- 要点一:器官演化走的是嵌套翻新路线——神经网压成链、背血管卷成心、消化道囊转岗为肺;
- 要点二:演化创新三元等式:同源结构 × 功能改换 × 发育时序挪移,三者缺一即断;
- 要点三:鳃用"面积做大、距离做小"化解平方立方难题,气管与肺是两条并行的登陆答卷;
- 要点四:双循环心脏是能量流与物质流合谋的必然产物,不是设计偏好;
- 要点五:发育可塑性既是减震器也是涡轮,蜥蜴胚胎室间隔的自愈与皮层突触修剪是现成证据;
- 要点六:Hox 网络的模块化让蛇类舍后肢而不必重写肢体程序——模块隔离是局部翻新的前提。
下一章把时间轴拉长到亿年量级:这些器官与构型在生命之树上怎样分岔、辐射、湮灭——系统发育与宏演化动力学将交付时间维度的解答。
图:器官系统的嵌套再利用谱系
器官数据档案:三次"翻修"的定量截面
器官系统的翻修史在数据上留下清晰刻度。先看循环系统的多级台阶。
类群,循环类型,心脏腔数,收缩压(mmHg,量级),代谢率(ml O2/kg/h),备注 昆虫(蝗虫),开式+背血管,管状无腔室,<5,300-800,气管独立供氧,循环只运养分 鱼(鲤),单循环,2(窦房+心室),约30,60-100,鳃循环串联,出鳃后血流减压 两栖(蛙),不完全双循环,3,约35,40-90,皮肺混合呼吸,动静脉血部分混合 鸟(鸽),完全双循环,4,约180,1500-2500,体肺分流彻底,高压体循环 哺乳(人),完全双循环,4,120,700-1000(基础),左心室壁厚约 12 mm,Retia 结构罕见
哺乳动物血压与体型存在弱标度关系,可以亲手验证一次。
# 体型-血压标度:收缩压约正比于 体重^0.05(近水平线,但非恒定) species = [("鼩鼱 Sorex minutus", 0.004, 80), ("兔 Oryctolagus", 2, 110), ("人 Homo sapiens", 70, 120), ("马 Equus caballus", 500, 135), ("长颈鹿 Giraffa camelopardalis", 900, 280)] for name, mass_kg, obs in species: predicted = 100 * (mass_kg ** 0.05) # 简化标度式 print(f"{name:30s} 实测 {obs:3d} mmHg | 预测 {predicted:5.1f} | 偏差 {obs-predicted:+5.1f}") # 长颈鹿是显著离群点:头部高出心脏约 2 m,需克服约 150 mmHg 静水柱, # 其心脏质量达体重的 0.6%(哺乳动物典型 0.4-0.5%),皮肤紧绷与瓣膜协同防下垂性昏厥。 hydrostatic = 1000 * 9.81 * 2.0 / 133.3 print(f"2 m 血柱对应的静水压约 {hydrostatic:.0f} mmHg")
神经系统的翻修同样可量化:章鱼中央脑约 5 亿神经元、八条腕的神经节另有约 3 亿——分布式架构让六成神经元长在"手臂"里,这是与脊椎动物中枢化路线并行的另一种解。